

 39
 分享
引言Introduction
sQTL研究越来越重要,但很多人只盯着线性基因组位置,忽略了染色质在三维空间中的折叠。真正影响剪接的变异,未必离剪接位点最近,却可能在空间上直接接触调控元件。 这也是sQTL与三维基因组结合后,能解释更多机制的原因。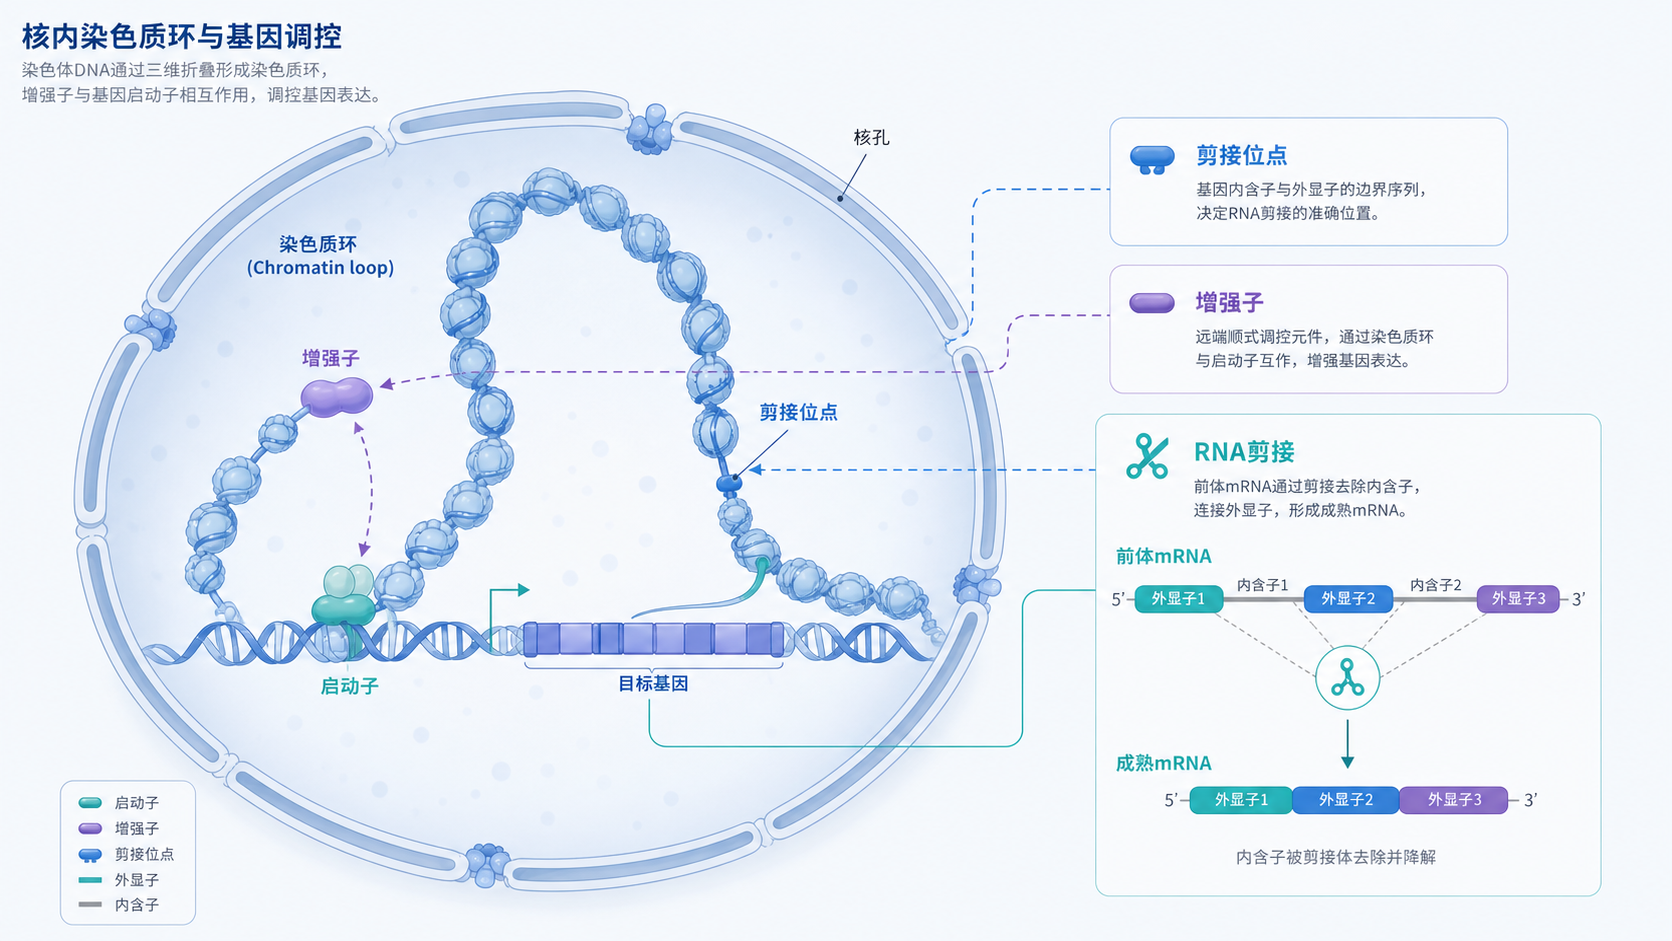
1. sQTL为什么不能只看线性距离
1.1 sQTL的核心不是“表达量”,而是“剪接选择”
sQTL,splicing QTL,关注的是遗传变异如何影响外显子连接方式、内含子保留、可变剪接位点选择等过程。它研究的不是基因总表达量,而是转录本结构的改变。因此,sQTL的功能后果往往比eQTL更贴近蛋白结构和生物学功能。
在实际研究中,同一个基因可能出现多个剪接异构体。某个SNP如果改变剪接因子结合位点,或影响顺式调控元件,就可能让某个外显子跳跃率升高,或改变5’、3’剪接位点使用。这样的效应不一定发生在线性邻近区域。很多信号之所以被漏掉,就是因为只按“最近基因”解释。
1.2 三维基因组提供了“远距离相遇”的物理基础
染色质在细胞核内并不是一条直线,而是不断折叠成环、TAD和更高阶结构。增强子、启动子、剪接调控元件可以在空间上靠近,即使在线性序列上相距很远。
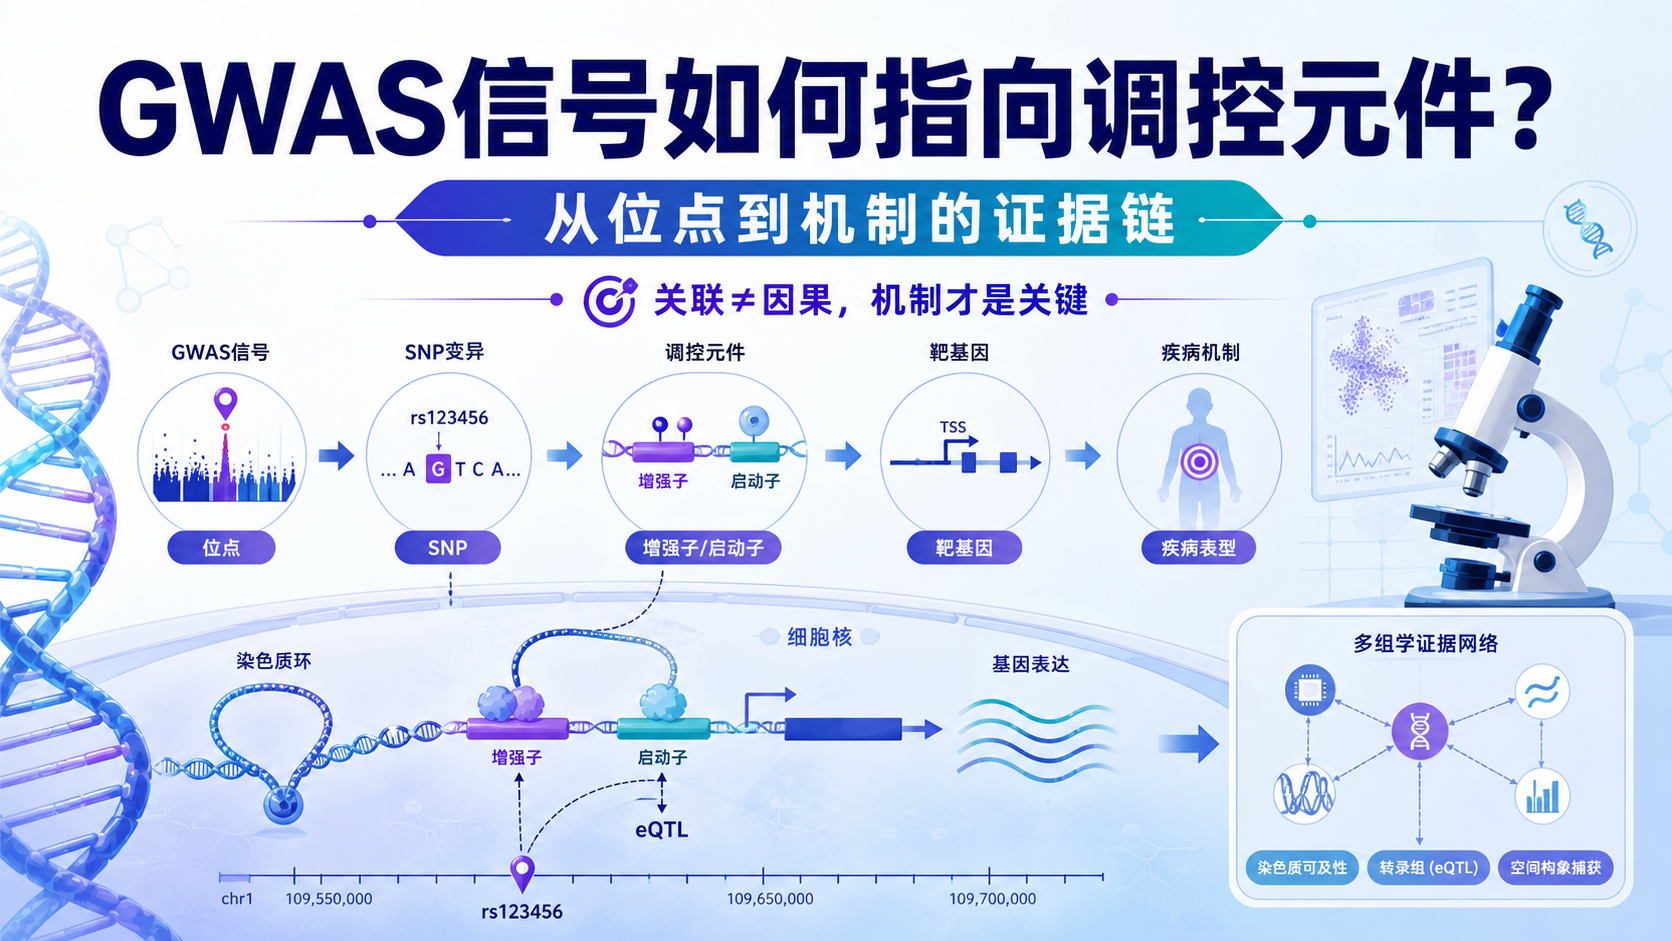
这意味着,某个非编码变异可能通过以下路径影响sQTL:
- 变异位于远端增强子。
- 该增强子通过染色质环接触目标基因区域。
- 接触区域内的RNA结合蛋白位点或剪接相关元件被改变。
- 最终导致剪接模式改变。
这类机制在神经系统、免疫系统和肿瘤中尤为常见。因为这些组织的染色质状态高度动态,空间重塑也更明显。
2. 三维基因组如何参与sQTL调控
2.1 染色质环把远端变异带到剪接调控现场
三维基因组中最直观的结构是染色质环。环的形成通常依赖CTCF、cohesin等蛋白。它们可以把增强子和目标区域拉近。当变异位于环锚点或环内功能区时,可能改变剪接相关调控元件的可及性。
例如,一个变异如果影响局部染色质开放程度,就可能改变U1、U2相关识别,或者影响SR蛋白、hnRNP蛋白的结合。结果就是外显子纳入率变化。对研究者而言,这类变异常常表现为“远端信号”,但功能上却很直接。
2.2 TAD限定了调控作用的“工作范围”
拓扑关联结构域,TAD,是三维基因组研究中的关键概念。TAD内部的增强子-靶基因作用更稳定,跨TAD调控通常较少。
对于sQTL来说,这很重要。因为如果一个变异落在某个TAD内,它更可能通过该TAD中的调控网络影响剪接,而不是随机作用于邻近基因。
这也解释了为什么很多sQTL信号与最近基因不一致。线性上最近,不代表三维上最接近。研究时如果能加入TAD边界信息,往往能显著提高机制解释力。
2.3 细胞类型特异性决定了sQTL是否真正“发生”
三维结构不是静态的。不同细胞类型、不同分化阶段、不同刺激状态下,染色质构象都可能变化。sQTL本质上是强细胞类型特异性的。
这也是为什么同一个变异,在血液中是显著sQTL,在脑组织中可能没有效应。因为三维接触图谱不同,剪接因子表达也不同。
对科研设计而言,这提示我们不能只看泛组织数据。要尽量匹配疾病相关组织,或者至少匹配相近细胞状态。否则空间接触关系和剪接调控网络都可能失真。
3. 研究sQTL与三维基因组的常用数据来源
3.1 sQTL数据从哪里来
常见sQTL来源包括GTEx、eQTL Catalogue、GEUVADIS以及一些特定组织队列。GTEx尤其常用,因为它覆盖多组织,适合做组织特异性分析。
sQTL分析通常依赖以下信息:
- 基因型数据。
- RNA-seq剪接定量数据。
- 剪接事件指标,如PSI,百分比剪接插入。
- 协变量,如性别、年龄、测序批次、群体结构。
如果剪接表型定义不清,后续所有关联分析都会偏差。 这是sQTL分析最基础也最容易出错的一步。
3.2 三维基因组数据从哪里来
三维基因组常用数据包括Hi-C、Capture-C、ChIA-PET、PLAC-seq、HiChIP等。它们提供不同分辨率的染色质接触信息。
其中:
- Hi-C适合全局结构。
- Capture-C更适合高分辨率靶向区域。
- ChIA-PET、HiChIP更适合蛋白介导接触。
在sQTL研究中,常见做法是用这些数据去验证某个变异是否位于空间接触区域,或是否与目标基因启动子、剪接区形成物理连接。这样能把统计关联转化为机制证据。
4. sQTL与三维基因组的分析方法
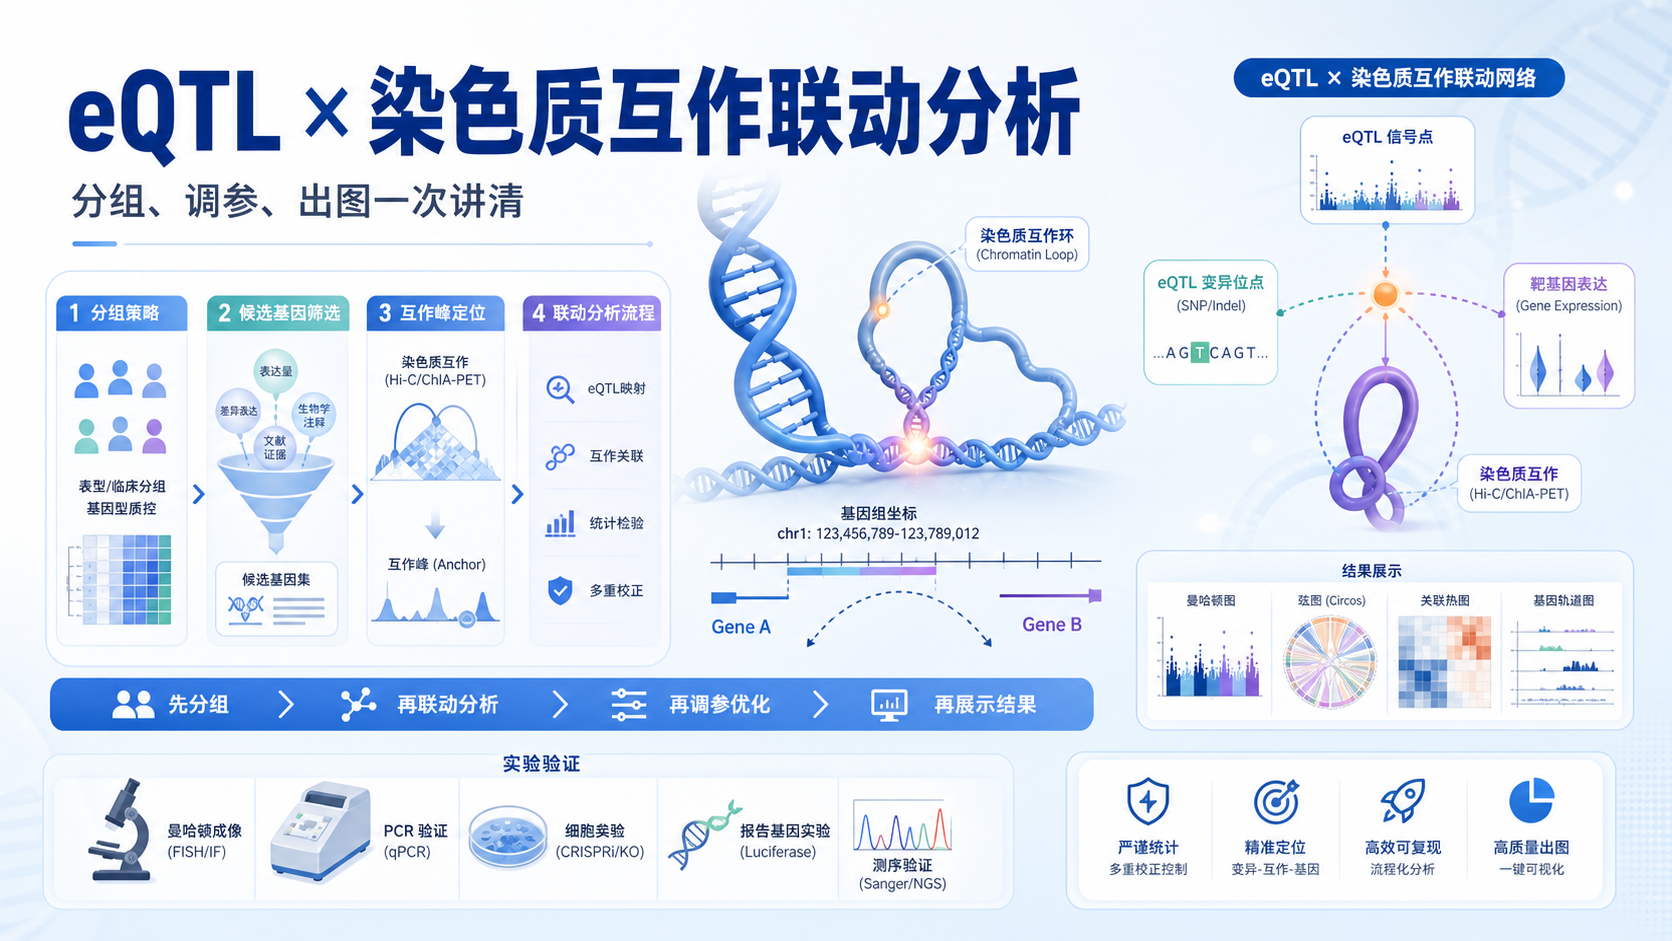
4.1 先做统计关联,再做空间注释
最基础的分析流程是:
- 识别显著sQTL。
- 注释变异的基因组位置。
- 叠加三维染色质接触图谱。
- 判断变异是否落在环锚点、TAD内部或接触区。
- 结合剪接事件和表达调控信息解释机制。
这个顺序很重要。 先有稳健的sQTL,再谈三维解释。否则容易把偶然接触误判为因果机制。
4.2 共定位与精细定位能提高可信度
如果要把sQTL和疾病关联起来,常常需要共定位分析。也就是判断同一遗传区域内,sQTL信号和GWAS信号是否共享因果变异。
常用思路包括:
- fine-mapping缩小候选因果位点。
- colocalization判断共享信号。
- 再结合3D接触图谱找物理机制。
三维基因组的价值,不只是“看起来更高级”,而是帮助缩小候选范围。
当一个变异同时满足共定位、空间接触、剪接改变三项证据时,机制链条会强很多。
4.3 可视化工具有助于快速发现模式
常见可视化包括:
- locus plot,展示遗传关联峰。
- 浏览器轨道图,如IGV、WashU Epigenome Browser。
- 接触热图,展示TAD和loop。
- 剪接瀑布图或sashimi plot,展示外显子连接变化。
对医学生和科研人员来说,可视化的目标不是“好看”,而是验证假说。
一个好的图,应该同时回答三个问题:变异在哪里,空间上接触谁,最终改变了什么剪接事件。
5. 研究设计中最容易忽略的几个问题
5.1 组织不匹配会直接稀释信号
sQTL和三维结构都强依赖组织。用外周血解释脑疾病,往往会低估效应。
如果研究的是神经退行性疾病,优先考虑脑组织数据。如果是免疫疾病,优先考虑免疫细胞或血液亚群。组织错配会让空间结构和剪接结果同时失真。
5.2 批次效应和测序深度会影响剪接定量
剪接事件对RNA-seq深度很敏感。低覆盖会导致低丰度异构体难以检出。
因此在建模时,必须控制测序批次、RNA质量、群体结构、隐变量等。否则你看到的“sQTL”,可能只是技术偏差。
5.3 三维接触不等于功能作用
这是最重要的提醒。空间接触只是必要条件,不是充分条件。
即使Hi-C显示两个区域接触,也不代表该接触一定影响剪接。真正的功能证据还需要:
- sQTL统计显著。
- 剪接事件改变稳定。
- 共定位支持共享变异。
- 最好再有实验验证,如CRISPR扰动、minigene assay或RBP结合实验。
6. 从机制到应用:为什么这类分析值得做
6.1 能解释非编码变异
大多数GWAS信号位于非编码区。单看序列,很难知道它们做了什么。
sQTL与三维基因组结合后,可以把“非编码关联”解释成“空间调控剪接”。这对疾病机制研究非常关键。
6.2 能帮助筛选药物靶点
如果某个剪接事件被遗传证据、三维接触和疾病信号共同支持,它就可能是更优先的干预点。相比只看差异表达,剪接层面的靶点往往更接近功能本质。
6.3 能提升文章的机制深度
对于想发表更高质量文章的研究者来说,单纯关联分析往往不够。
把sQTL、三维基因组、共定位和功能验证串起来,才更接近完整机制链条。这也是“相关性”走向“因果解释”的关键一步。
总结Conclusion
三维基因组改变了我们理解sQTL的方式。它说明,影响剪接的变异不一定最近,但可能在空间上最接近调控核心。研究时应优先结合组织匹配的sQTL数据、Hi-C或相关接触图谱、共定位和精细定位分析。只有把统计信号和三维结构证据结合起来,才能更可靠地解释剪接调控机制。
如果你希望进一步把这类分析做成可发表的研究,建议使用解螺旋 提供的专业生信支持与文章复现服务,帮助你从数据整理到机制验证,系统推进。
- 引言Introduction
- 1. sQTL为什么不能只看线性距离
- 2. 三维基因组如何参与sQTL调控
- 3. 研究sQTL与三维基因组的常用数据来源
- 4. sQTL与三维基因组的分析方法
- 5. 研究设计中最容易忽略的几个问题
- 6. 从机制到应用:为什么这类分析值得做
- 总结Conclusion