

 18
 分享
引言Introduction
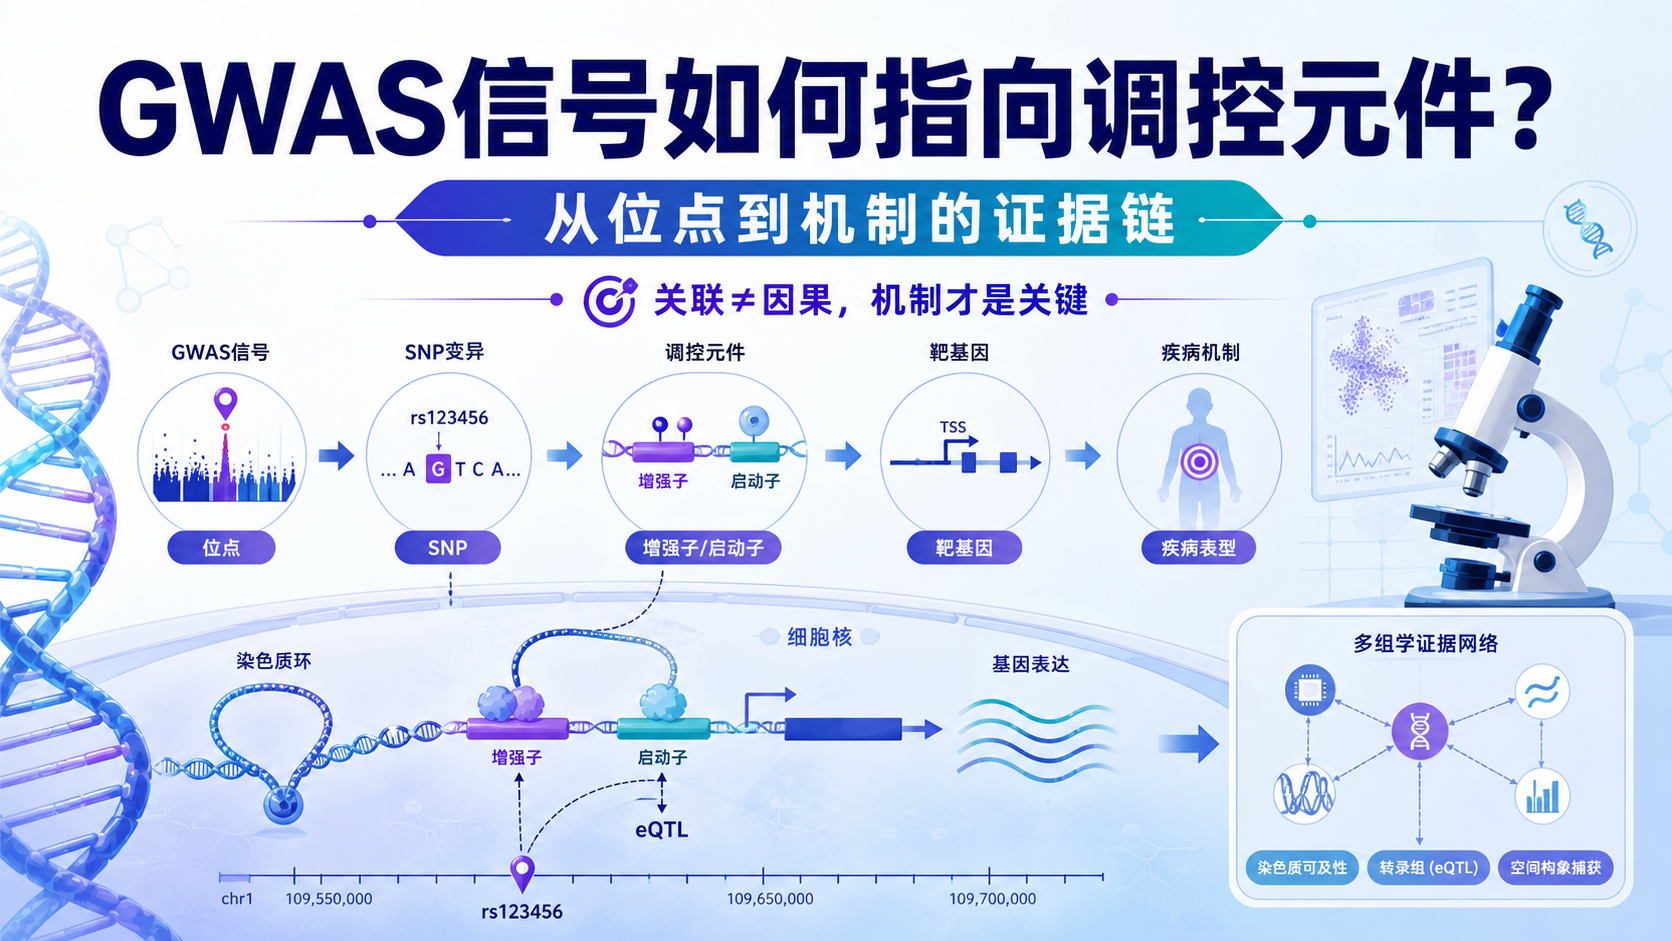
GWAS常能找到疾病相关位点,却很难直接告诉我们,真正起作用的是哪个调控元件、哪种细胞状态、哪条机制链 。对医学生、医生和科研人员来说,难点不在“有没有信号”,而在“如何把信号变成机制”。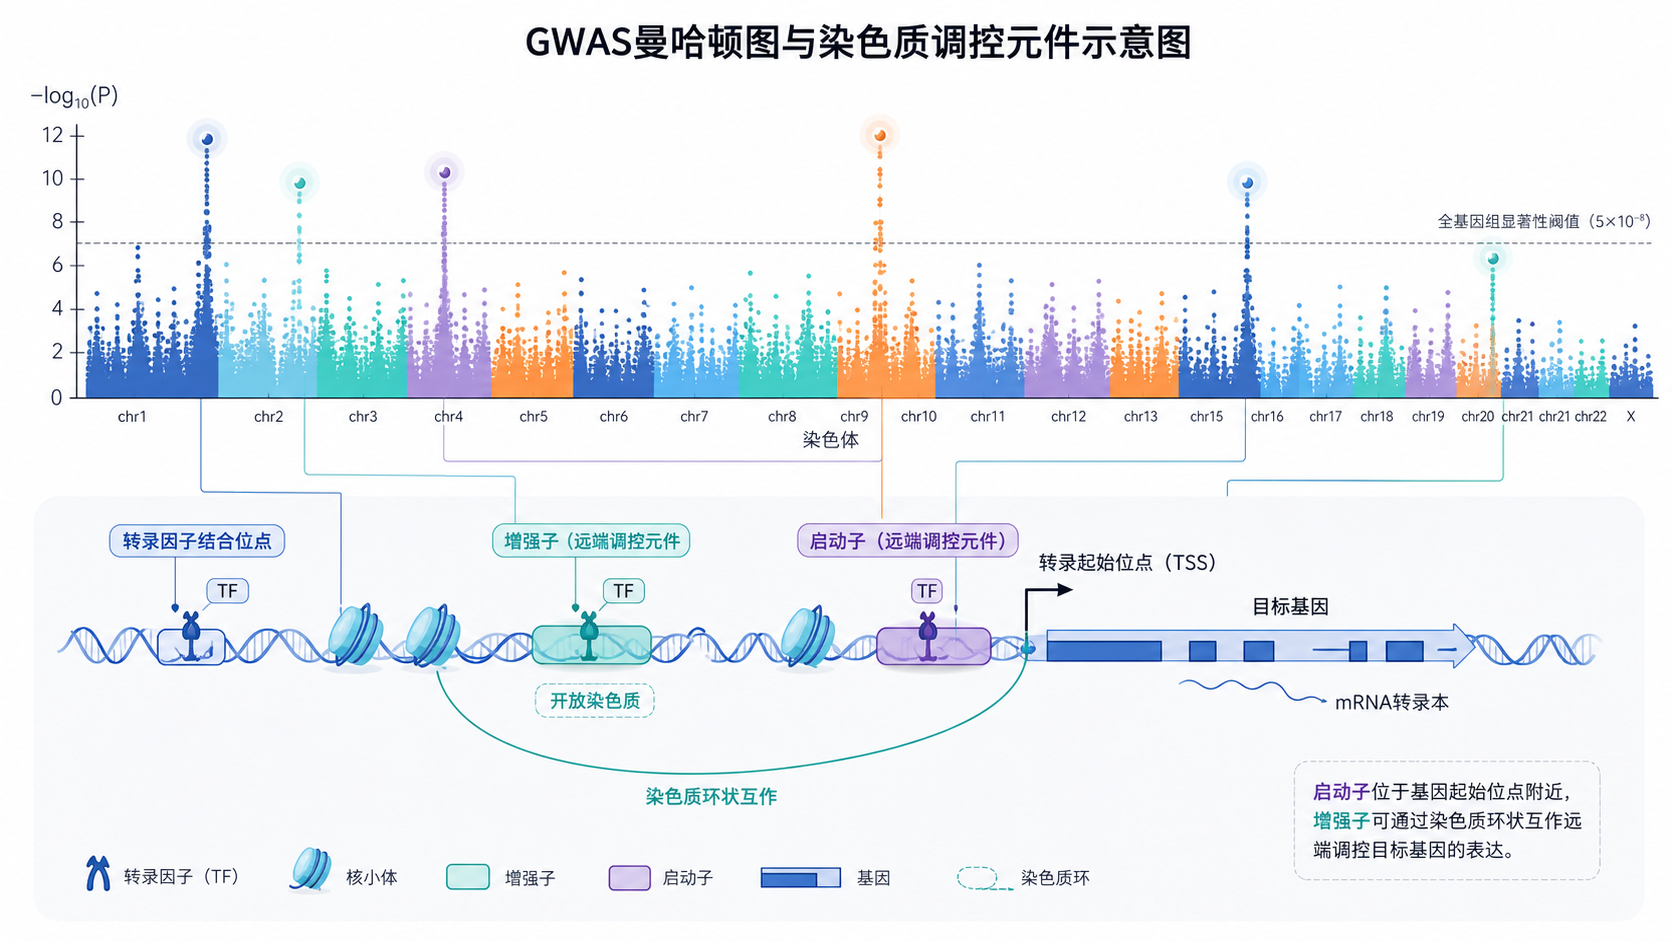
1.GWAS信号为什么常常“只看到位点,看不到机制”
1.1 关联位点不等于致病基因
GWAS的核心输出是统计关联。它提示某个SNP附近与表型有关,但不直接等于因果基因 。在真实研究中,很多显著位点落在非编码区,距离最近的基因未必是功能基因。
这也是GWAS与调控元件研究的关键交叉点。非编码变异可能通过影响增强子、启动子、绝缘子,改变染色质状态和转录水平,而不是改变蛋白序列。
1.2 统计信号与生物学信号之间有一层“解释鸿沟”
GWAS通常需要处理连锁不平衡。一个显著峰值背后,可能包含多个相关SNP。真正的因果变异往往只是“峰”中的一个点。
因此,单靠P值不足以回答机制问题。必须结合LD结构、功能注释、染色质开放性和表达证据,逐层缩小范围。
对科研人员而言,这一步决定了项目能否从“相关”走向“可验证”。
2.调控元件如何把GWAS位点转化为功能假说
2.1 常见调控元件及其作用方式
调控元件不是一个笼统概念,而是具体的功能模块,主要包括:
- 启动子,决定转录起始。
- 增强子,提高特定时空条件下的转录效率。
- 沉默子,抑制转录。
- 绝缘子,限制增强子作用范围。
- 转录因子结合位点,作为调控网络的接入口。
GWAS信号若落在这些区域,就更可能通过调控表达而影响表型。
尤其在疾病研究中,增强子变异往往与组织特异性强相关,因为它们更依赖细胞类型和刺激状态。
2.2 从“一个SNP”到“一个调控网络”
功能研究的思路通常不是直接证明“这个SNP致病”,而是构建路径:
- 先定位显著位点和候选因果变异。
- 再判断其是否位于开放染色质或活性组蛋白标记区域。
- 进一步预测是否影响转录因子结合。
- 最后连接到下游靶基因和生物学通路。
这条链条的价值在于,它把统计关联转成可实验验证的机制假说。
3.把GWAS信号指向调控元件,需要哪些关键证据
3.1 精细定位是第一步
GWAS峰值区域往往不小,且存在LD干扰。精细定位的目标,是从几十个相关变异中筛到少数高可信候选。常见策略包括:
- 条件分析,判断是否存在独立信号。
- 可信集合构建,列出高概率因果SNP。
- 与人群LD结构结合,减少假阳性解释。
没有精细定位,后续所有功能实验都可能建立在错误候选上。
3.2 功能注释决定“这个位点有没有调控可能”
候选SNP进入功能层面后,重点看三类证据:
- 是否位于ATAC-seq或DNase-seq开放区域。
- 是否重叠H3K27ac、H3K4me1等活性增强子标记。
- 是否破坏或增强特定转录因子motif。
如果一个GWAS位点同时满足这些条件,其“调控元件”身份就更可信。
统计显著性加上表观遗传证据,才接近功能证据。
3.3 组织和细胞类型特异性不能忽略
同一个位点,在不同组织中的意义可能完全不同。
比如免疫相关GWAS信号,常需优先查看单核细胞、T细胞、B细胞中的染色质状态;代谢性状则更关注肝脏、脂肪、胰岛β细胞。
真正有解释力的不是“这个位点在全基因组上显著”,而是“它在目标细胞里是活的”。
4.从调控元件到靶基因,再到疾病机制
4.1 最近基因原则不够
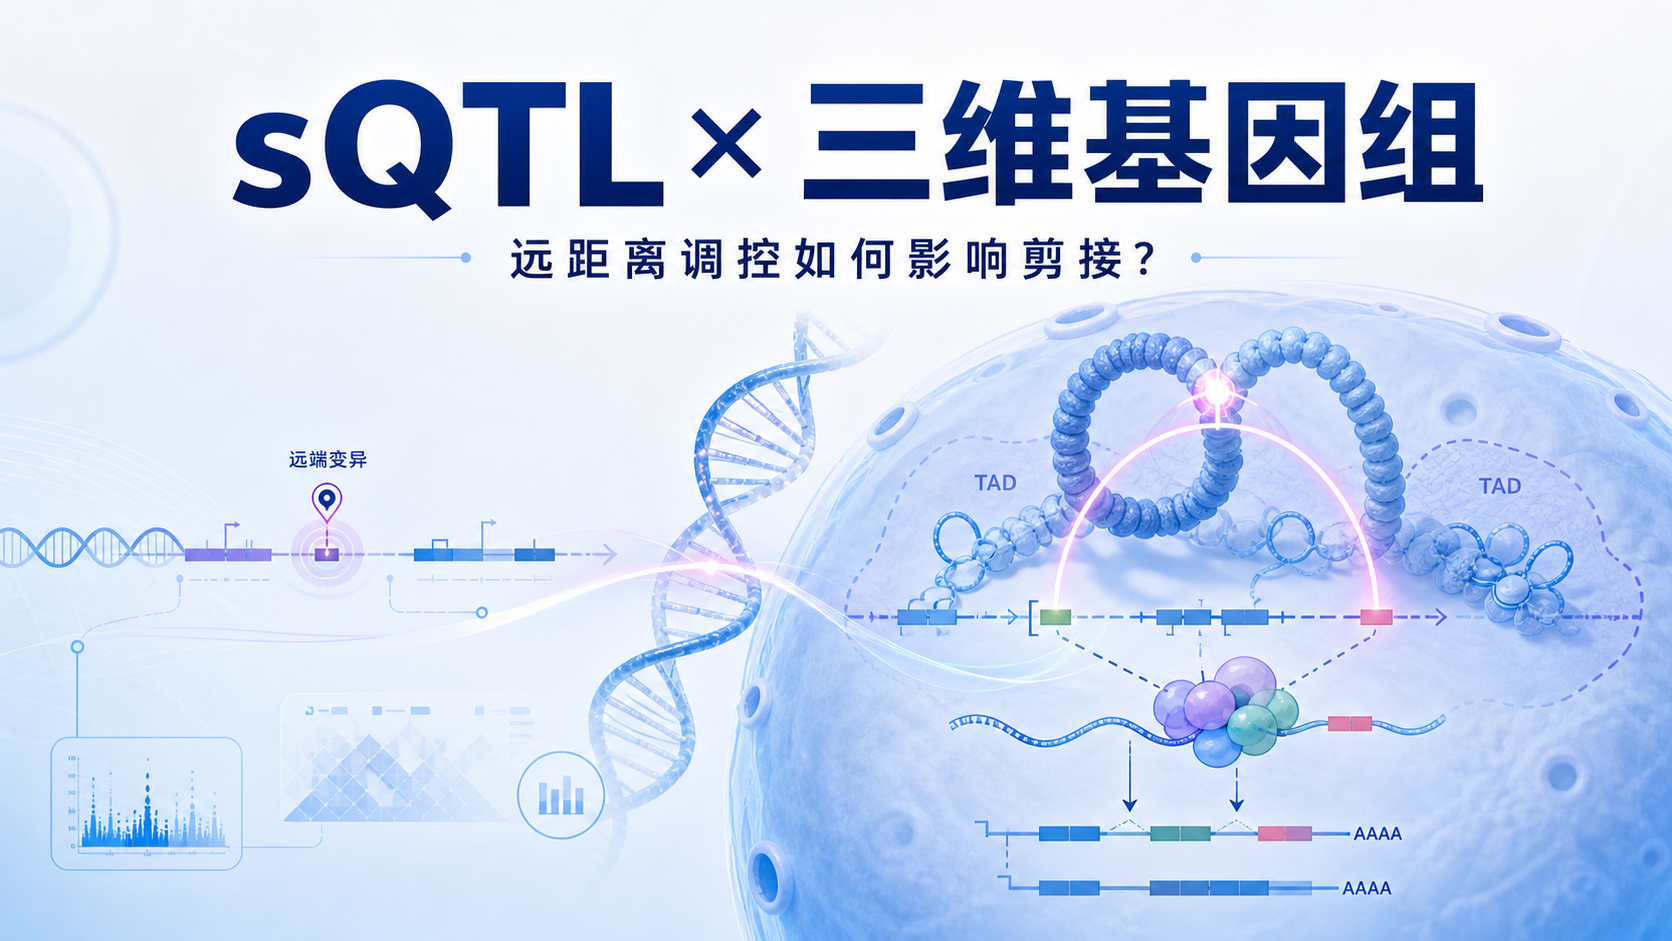
很多研究会先看最近的蛋白编码基因,但这只是起点,不是结论。增强子可以跨越几十kb甚至更远距离作用于远端基因。
因此,GWAS与调控元件分析中,必须结合3D基因组证据,例如:
- Hi-C。
- promoter capture Hi-C。
- eQTL和sQTL。
- 共表达网络分析。
远端调控是非编码GWAS解释中的常见规律。
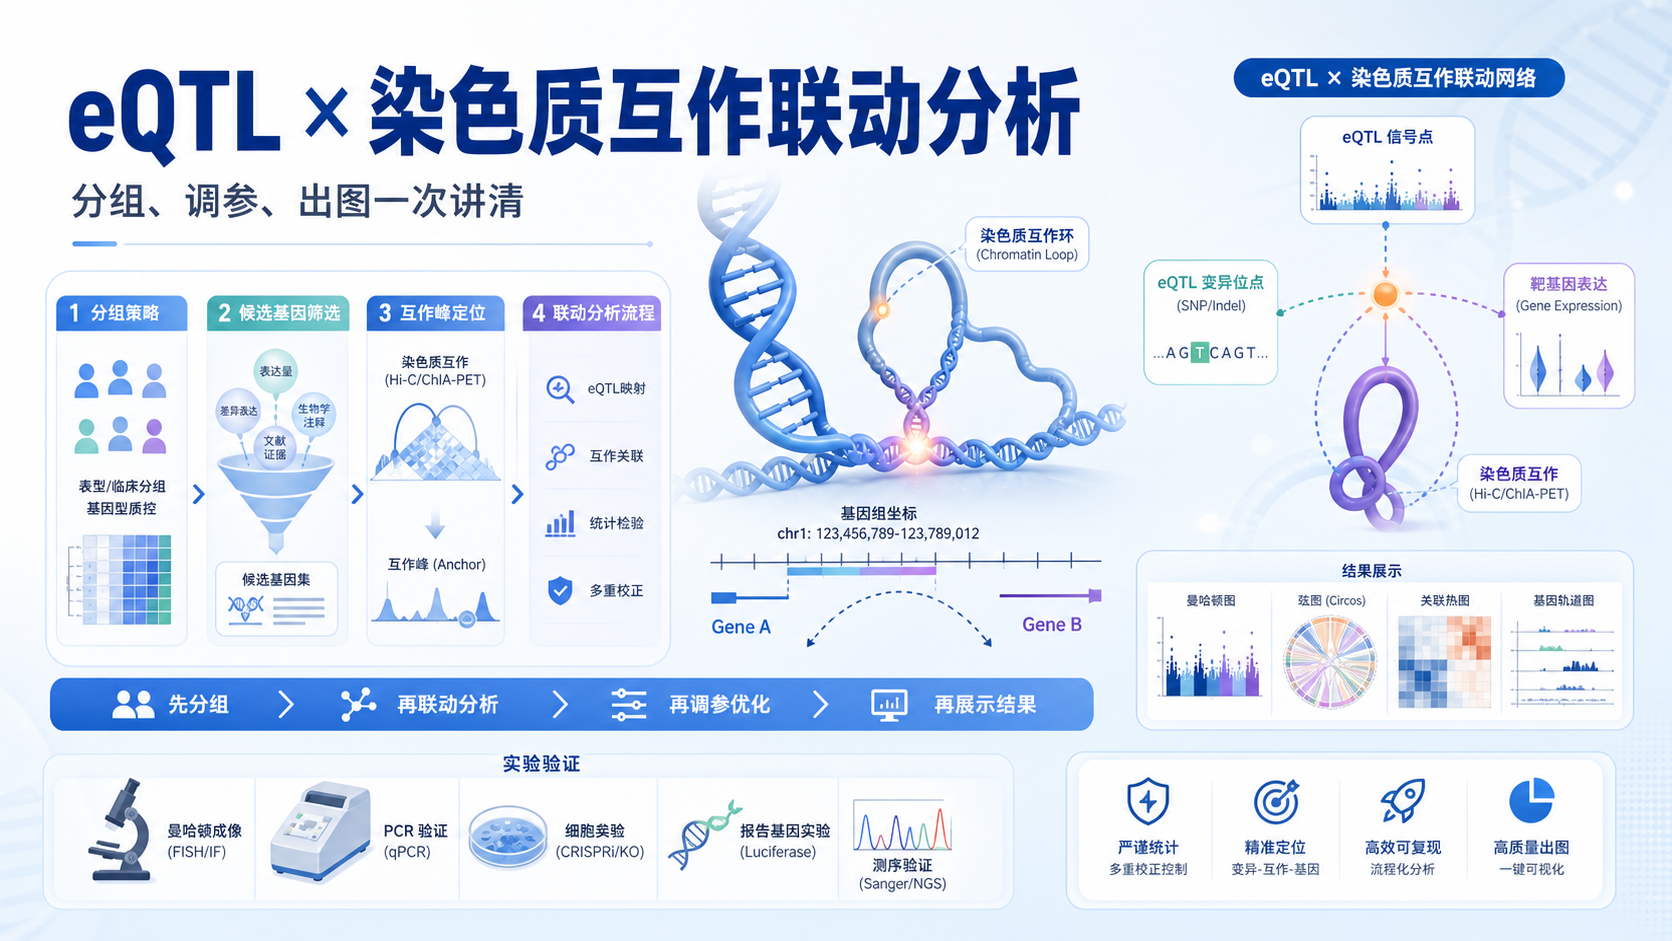
4.2 eQTL把“变异”和“表达”接上了
eQTL是非常关键的桥梁。它回答的是:某个遗传变异是否与某个基因表达量相关。
如果GWAS位点同时也是eQTL位点,并且两者共定位,那么该基因就更可能是因果靶基因。
这类证据在论文中权重很高,因为它把统计相关、调控元件和表达变化串联起来。
4.3 机制验证离不开实验
计算分析只能提出假说,真正的机制还需要实验确认。常见方法包括:
- Luciferase报告基因实验,验证增强子活性。
- EMSA,验证蛋白与DNA结合变化。
- ChIP-qPCR,验证转录因子占位。
- CRISPRi/CRISPRa,验证元件功能。
- 基因编辑,验证因果SNP效应。
只有当位点改变了元件活性,并进一步改变靶基因表达,机制链条才算完整。
5.常见分析误区与提升研究可信度的方法
5.1 误区一,把相关峰直接等同于因果元件
GWAS峰不是结论,只是入口。
如果不做LD拆分和功能注释,容易把旁观SNP误判为致病位点。
5.2 误区二,只看注释,不看细胞背景
同一SNP在不同细胞中的染色质状态可能完全不同。
脱离组织背景的功能解释,可信度会明显下降。
5.3 误区三,只做生信不做验证
高质量论文通常遵循“统计发现,功能注释,机制实验”三步走。
可复现性更强的研究,往往会整合以下证据:
- GWAS显著性。
- 精细定位。
- 表观组学重叠。
- eQTL共定位。
- 分子实验验证。
这套组合拳比单一分析更能支撑论文结论,也更符合E-E-A-T中的专业性与可信度要求。
6.写作和汇报时,如何让GWAS与调控元件结果更有说服力
6.1 结果呈现要从“位点”升级到“证据链”
汇报时不要只写“发现一个显著SNP”。更好的写法是:
- GWAS鉴定显著关联位点。
- 精细定位筛出高可信候选变异。
- 候选变异落在活性增强子或启动子区域。
- 该变异影响转录因子结合。
- 进一步改变目标基因表达。
- 最终影响疾病表型。
这样的表达方式,更符合机制研究的逻辑。
6.2 图表要突出“因果推断路径”
推荐用一张整合图同时展示:
- GWAS峰值。
- 染色质状态。
- 候选调控元件。
- 转录因子。
- 靶基因。
- 下游通路。
这类图能够显著提高读者理解效率,也更适合论文答辩、基金申请和综述写作。
如果需要快速整理文献中的GWAS信号、调控元件和机制链条,解螺旋可以帮助你把复杂结果结构化,减少重复整理时间,让你更快完成高质量图文输出。
总结Conclusion
GWAS与调控元件的结合,本质上是在回答一个问题,遗传关联如何通过非编码调控转化为疾病机制。
真正有价值的研究,不会停留在“发现位点”,而是会进一步完成精细定位、功能注释、靶基因连接和实验验证。
对于医学生、医生和科研人员来说,掌握这套逻辑,才能把GWAS结果从统计现象推进到可解释、可验证、可转化的机制证据。若你希望更高效地整理这类文献和机制图谱,建议结合解螺旋进行系统化分析与表达优化。
- 引言Introduction
- 1.GWAS信号为什么常常“只看到位点,看不到机制”
- 2.调控元件如何把GWAS位点转化为功能假说
- 3.把GWAS信号指向调控元件,需要哪些关键证据
- 4.从调控元件到靶基因,再到疾病机制
- 5.常见分析误区与提升研究可信度的方法
- 6.写作和汇报时,如何让GWAS与调控元件结果更有说服力
- 总结Conclusion