

 10
 分享
引言Introduction
三维基因组不只是“染色质折叠”的概念。它正在重新定义代谢调控和表观遗传调控如何协同发生。对医学生、医生和科研人员来说,真正的难点不是名词,而是如何把空间结构、代谢状态和基因表达连成一条可验证的研究链 。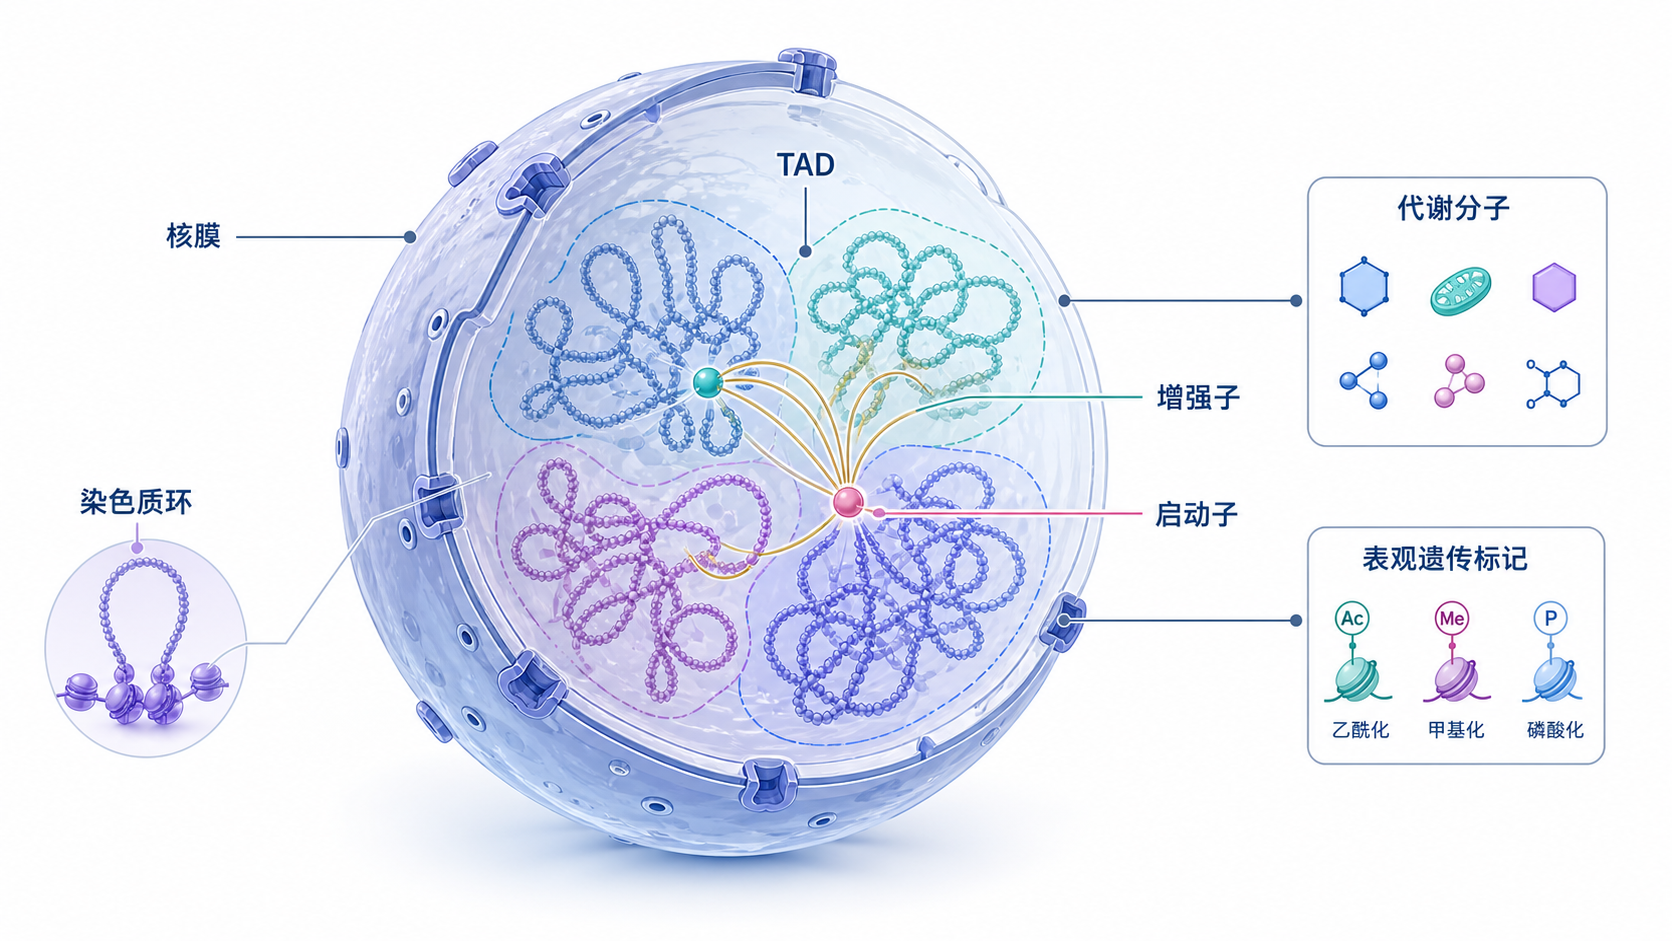
1. 三维基因组到底在调控什么
1.1 从线性DNA到空间基因组
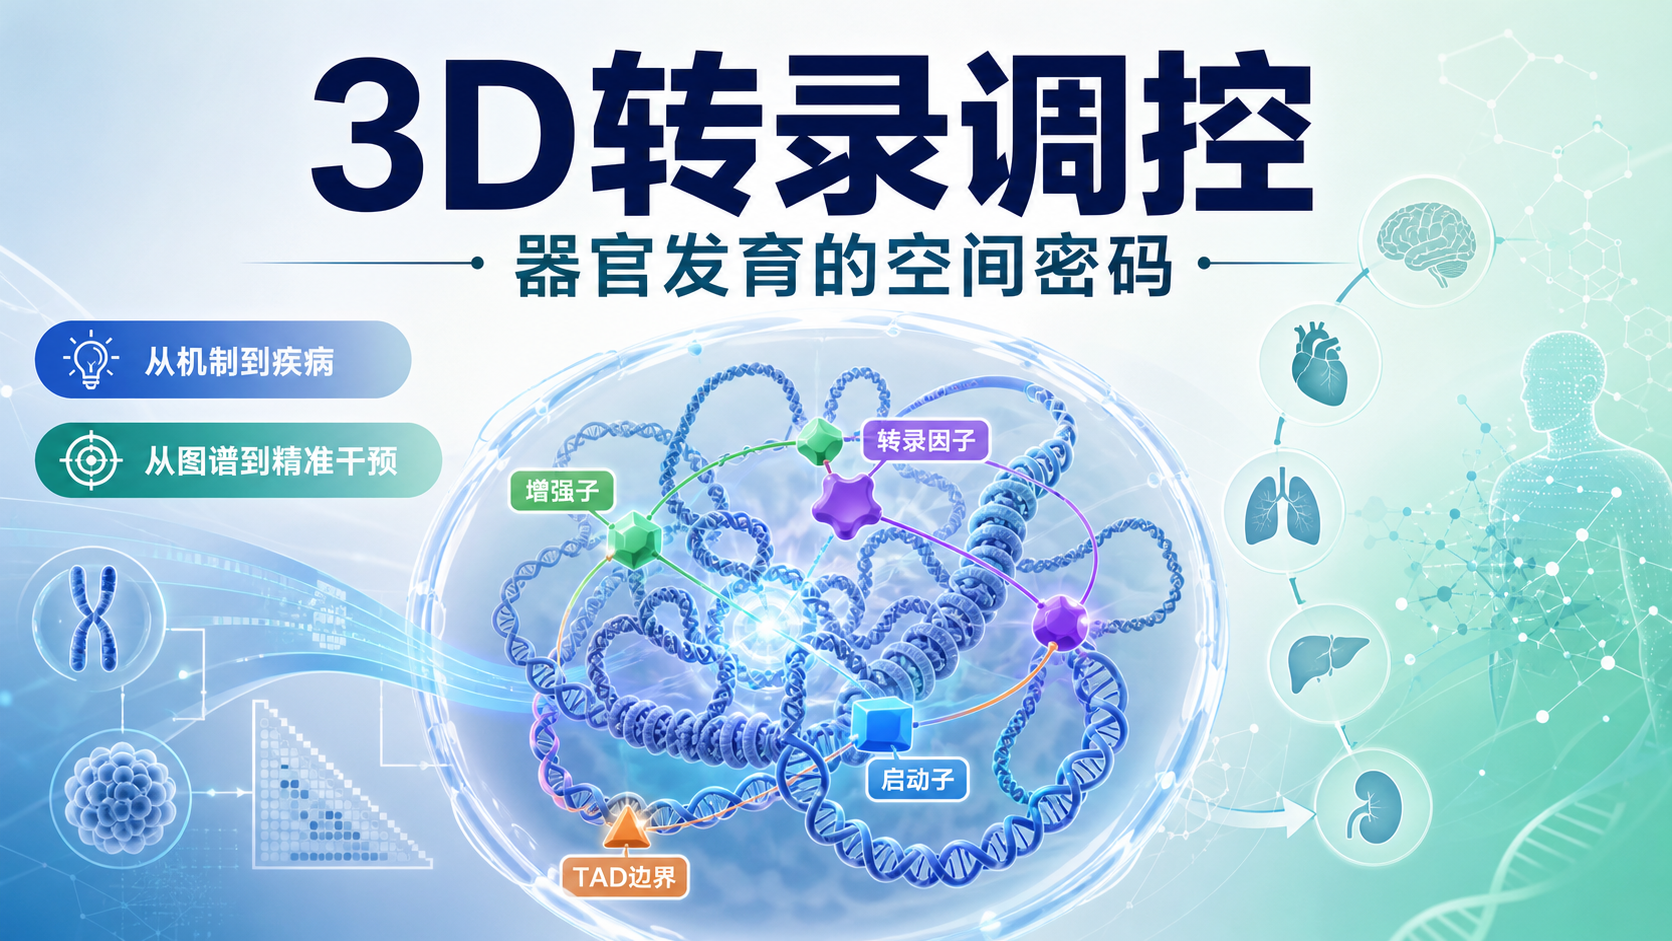
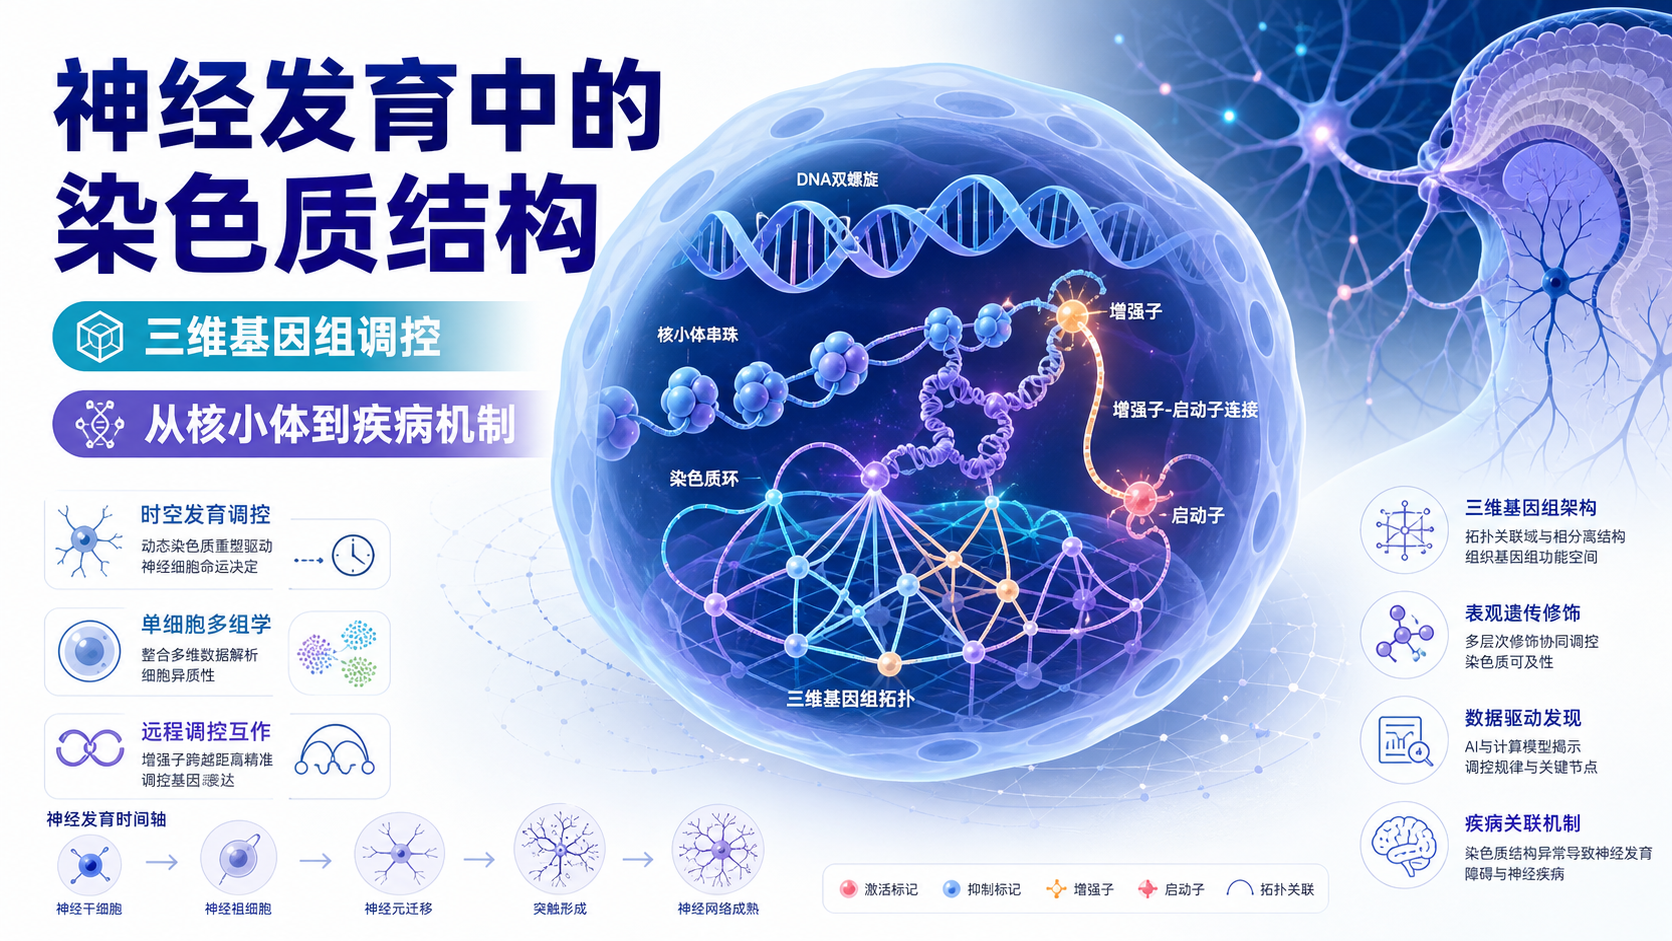
传统观点看基因组,关注的是序列本身。三维基因组研究则强调,DNA在细胞核内并不是平铺展开,而是通过折叠形成染色质环、拓扑关联结构域(TAD)和核内隔室,从而决定哪些增强子可以接触启动子。
这意味着,基因表达不只取决于“有没有这个基因”,更取决于“它是否处在正确的空间位置”。
同一段DNA,在不同细胞类型、不同代谢状态下,可能呈现完全不同的转录活性。
1.2 结构层级决定调控效率
三维基因组常见的调控层级包括:
-
染色质环(chromatin loop)
连接远距离增强子和启动子,直接影响转录起始。 -
TAD
形成相对稳定的调控单元,限制增强子“越界”作用。 -
A/B隔室
A区通常转录活跃,B区更偏抑制状态,反映大尺度染色质环境。 -
核周与核内定位
某些基因靠近核纤层时更易被抑制,进入核内部后更易被激活。
这些结构不是静态背景,而是动态调控平台。 它们会随着发育、应激、炎症和肿瘤代谢重编程而变化。
2. 代谢如何反过来塑造三维基因组
2.1 代谢物是表观遗传酶的“底物”和“信号”
代谢与表观遗传之间的联系,核心在于代谢物直接参与染色质修饰。常见例子包括:
- 乙酰辅酶A :为组蛋白乙酰化提供乙酰基来源。
- S-腺苷甲硫氨酸(SAM) :DNA甲基化和组蛋白甲基化的重要甲基供体。
- α-酮戊二酸 :参与TET和JmjC家族去甲基化酶反应。
- NAD+ :影响Sirtuin去乙酰化酶活性。
- 乳酸、琥珀酸、延胡索酸 :可改变多种表观遗传酶活性,进而影响染色质状态。
代谢状态改变后,首先变的往往不是单个基因,而是整套染色质可及性和空间互作格局。
2.2 能量代谢重编程如何改变染色质状态
在肿瘤、缺氧、炎症或增殖活跃细胞中,糖酵解增强、TCA循环重塑、脂代谢改变,都会影响核内代谢物供给。结果包括:
- 组蛋白乙酰化水平变化
- DNA甲基化模式漂移
- 染色质开放程度改变
- 增强子活性发生重编程
例如,糖酵解增强可提高局部乙酰辅酶A可用性,促进特定位点乙酰化增强。相反,缺氧可能通过影响TET酶活性,改变DNA去甲基化过程。代谢不是“背景噪音”,而是染色质调控的上游变量。
2.3 代谢物还能改变三维结构本身
越来越多研究提示,代谢变化不仅影响单点修饰,还会影响染色质压缩程度、环形成概率和TAD边界稳定性。其机制可能涉及:
- CTCF和cohesin介导的结构维持
- 组蛋白修饰改变导致染色质亲和力变化
- 转录工厂形成与解体
- 核内液-液相分离状态变化
换句话说,代谢可通过“修饰”影响“结构”,再通过“结构”影响“转录”。
3. 表观遗传如何嵌入三维基因组调控
3.1 组蛋白修饰决定染色质可及性
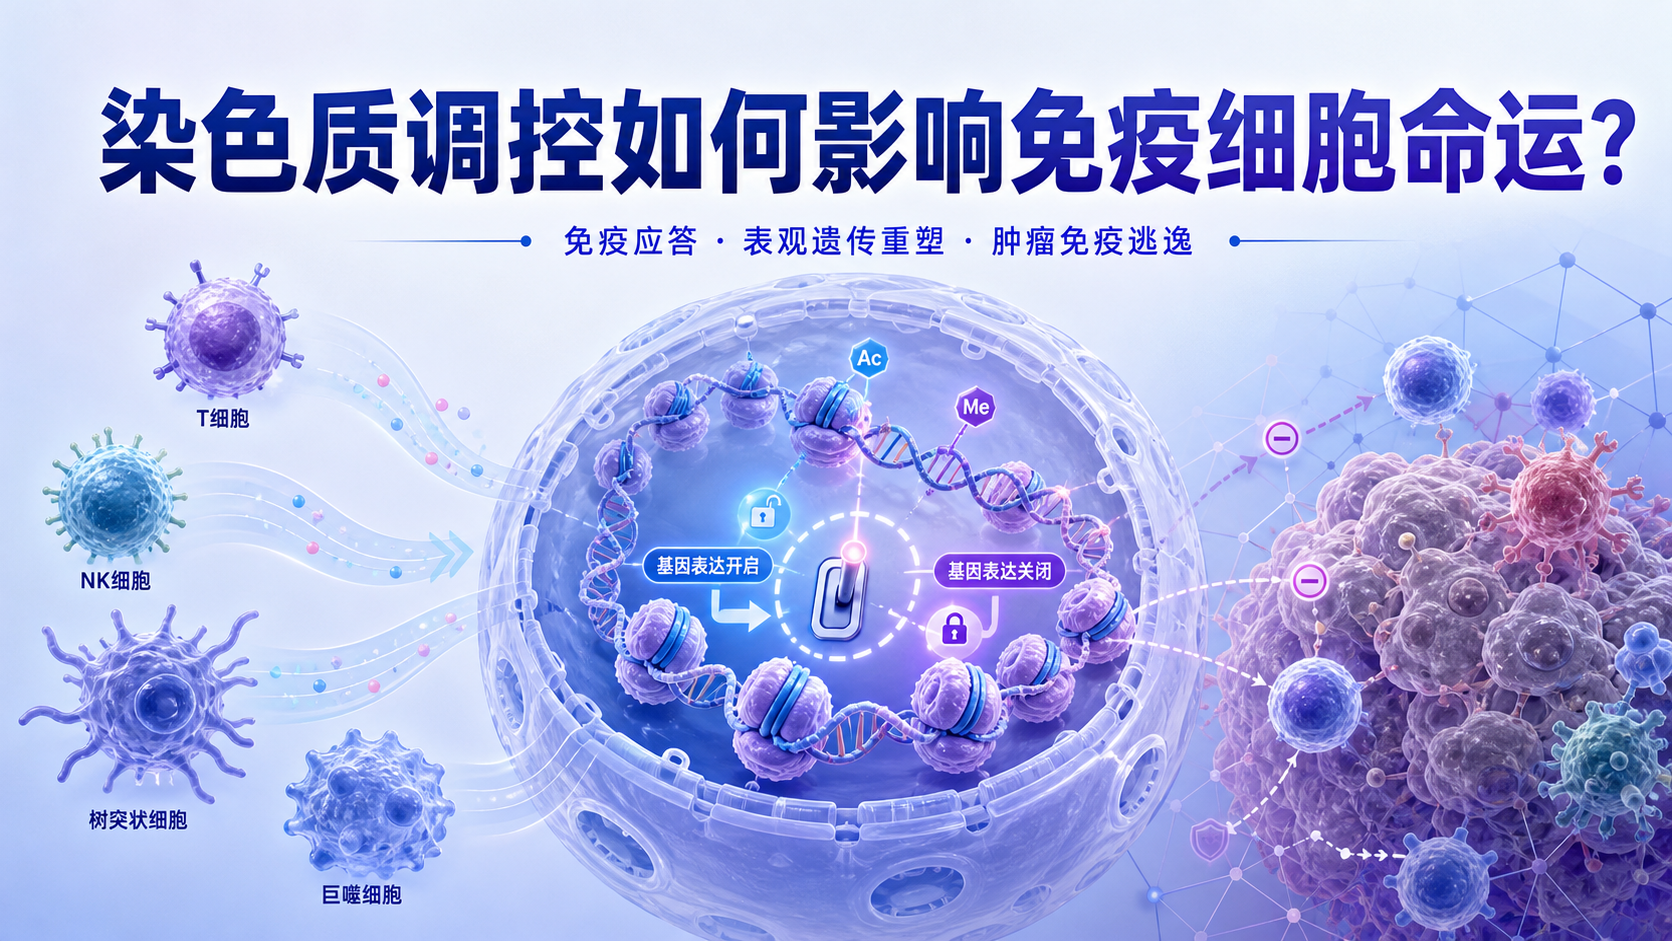
表观遗传标记并非孤立存在。组蛋白乙酰化、甲基化、磷酸化、泛素化等修饰,会直接改变核小体稳定性和染色质开放度。
常见规律是:
- H3K27ac 常与活跃增强子相关
- H3K4me1 常提示增强子准备状态
- H3K27me3 常与抑制性染色质相关
- H3K9me3 常与异染色质压缩相关
这些修饰会影响增强子与启动子的接触效率。
也就是说,表观遗传不是仅仅“标记基因开关”,而是在空间层面参与基因组折叠。
3.2 DNA甲基化与边界元件稳定性
DNA甲基化可影响转录因子结合,也可影响边界元件功能。某些情况下,甲基化异常会削弱CTCF结合,导致TAD边界变弱,进而出现异常增强子劫持现象。
这在肿瘤中尤其重要。
一旦边界失稳,原本被隔离的增强子可能错误激活致癌基因。
3.3 非编码RNA参与空间调控
lncRNA、circRNA和部分miRNA相关网络,也可参与三维基因组重塑。它们可通过以下方式发挥作用:
- 招募染色质修饰复合物
- 促进或阻断蛋白复合体组装
- 影响核内定位
- 调节转录凝聚体形成
这说明,表观遗传调控并不局限于“修饰酶”,而是一个多层级网络。
4. 三维基因组、代谢和表观遗传如何形成闭环
4.1 正反馈回路最容易在疾病中放大
三者之间不是单向关系,而是形成闭环:
- 代谢改变影响修饰酶活性。
- 表观遗传修饰改变染色质开放性。
- 三维结构重塑改变基因表达。
- 基因表达变化进一步反过来重塑代谢通路。
这个闭环在肿瘤、免疫细胞激活、代谢综合征和发育异常中都非常常见。
4.2 典型病理场景:肿瘤细胞代谢重编程
肿瘤细胞常表现为糖酵解增强、谷氨酰胺依赖、脂代谢重塑。与此同时,染色质开放区域扩展,增强子活性增强,部分原癌基因更容易被激活。若再叠加DNA甲基化异常或组蛋白修饰失衡,三维结构重排会进一步稳定恶性转录程序。
所以,肿瘤不是单纯“突变疾病”,也是空间基因组疾病、代谢疾病和表观遗传疾病的叠加体。
4.3 免疫与炎症中的动态重塑
免疫细胞在激活后需要快速改变代谢模式。早期糖酵解增强,随后部分细胞向氧化代谢回调。这个过程中,染色质开放、增强子激活和三维互作变化会同步发生,决定炎症因子、分化标志物和效应功能的表达强度。
这也是为什么同样的刺激,在不同细胞状态下会得到不同转录响应。
5. 研究三维基因组与代谢表观遗传,常用哪些方法
5.1 空间结构研究方法
常用技术包括:
- Hi-C :分析全基因组染色质互作
- Capture-C / 4C / 5C :聚焦特定区域互作
- ChIA-PET :研究蛋白介导互作
- HiChIP / PLAC-seq :结合蛋白标记与互作信息
- FISH :验证特定位点空间距离
其中,Hi-C适合全局分析,FISH更适合验证具体位点。
5.2 表观遗传检测方法
常用方法包括:
- ChIP-seq :检测组蛋白修饰或转录因子结合
- ATAC-seq :检测染色质开放性
- WGBS / RRBS :检测DNA甲基化
- CUT&Tag / CUT&RUN :低起始量条件下的高效染色质标记检测
5.3 代谢层面的验证
若要建立“代谢-表观遗传-三维基因组”链条,代谢层面不能只看转录。还应结合:
- 代谢组学
- 同位素示踪
- 关键代谢酶活性检测
- 线粒体功能分析
- 糖酵解与氧化磷酸化指标
最理想的设计,是把结构、修饰和代谢三个层面放在同一实验框架中。
6. 课题设计时如何把问题问准确
6.1 先明确“哪个层级在变”
做课题时,建议先回答三个问题:
- 变化的是代谢物,还是代谢酶?
- 变化的是组蛋白/DNA修饰,还是染色质结构?
- 变化的是单个基因,还是整个调控域?
如果问题定义不清,后续所有实验都会发散。
6.2 推荐的验证路径
一个较稳妥的研究路径是:
- 通过组学筛选候选通路和关键基因。
- 用表达和代谢检测确认相关性。
- 用ATAC-seq、ChIP-seq或Hi-C寻找结构证据。
- 用药物、敲低或过表达做功能验证。
- 通过救援实验确认因果链条。
这类设计更容易形成完整故事线:代谢变化导致表观遗传重塑,进一步改变三维结构,最终影响疾病表型。
6.3 重点关注“边界”“增强子”和“互作”
如果研究对象是肿瘤或炎症,建议重点关注:
- TAD边界是否变化
- 关键增强子是否被激活
- 染色质环是否增强
- 目标基因是否发生异常高表达
这些指标往往比单个mRNA表达更接近机制本质。
7. 如何用高质量写作和检索工具提升综述与课题效率
7.1 文献检索要从“主题词”转向“机制链”
围绕三维基因组、代谢与表观遗传,检索时不要只搜单个关键词。更有效的方式是组合检索:
- 3D genome + metabolism
- chromatin architecture + epigenetics
- enhancer-promoter interaction + metabolic reprogramming
- TAD boundary + DNA methylation
- histone modification + gene regulation + metabolism
这样更容易找到高质量、机制完整的文献。
7.2 用结构化工具提高综述产出效率
如果你需要快速搭建综述框架、整理文献证据、形成研究提纲,解螺旋可以帮助你把零散文献转成结构化内容。它适合做:
- 文献快速归类
- 综述提纲生成
- 机制链梳理
- 参考文献索引整理
对于需要写课题设计、开题报告或综述初稿的人来说,这类工具能显著减少前期整理时间。
把时间留给真正关键的工作:判断机制是否成立,实验路径是否闭合。
总结Conclusion
三维基因组并不是孤立的空间概念,而是连接代谢状态、表观遗传修饰和基因表达程序 的核心枢纽。代谢物可以影响染色质修饰,表观遗传标记可以重塑空间结构,而三维结构又会反向决定哪些基因被激活或沉默。对医学生、医生和科研人员来说,理解这三者的闭环关系,才能真正看懂肿瘤、免疫和发育异常中的关键机制。若你正在准备相关课题或综述,建议借助解螺旋进行文献整理与框架搭建,把复杂机制快速转成可写、可做、可验证的研究方案。
- 引言Introduction
- 1. 三维基因组到底在调控什么
- 2. 代谢如何反过来塑造三维基因组
- 3. 表观遗传如何嵌入三维基因组调控
- 4. 三维基因组、代谢和表观遗传如何形成闭环
- 5. 研究三维基因组与代谢表观遗传,常用哪些方法
- 6. 课题设计时如何把问题问准确
- 7. 如何用高质量写作和检索工具提升综述与课题效率
- 总结Conclusion