

 6
 分享
引言Introduction
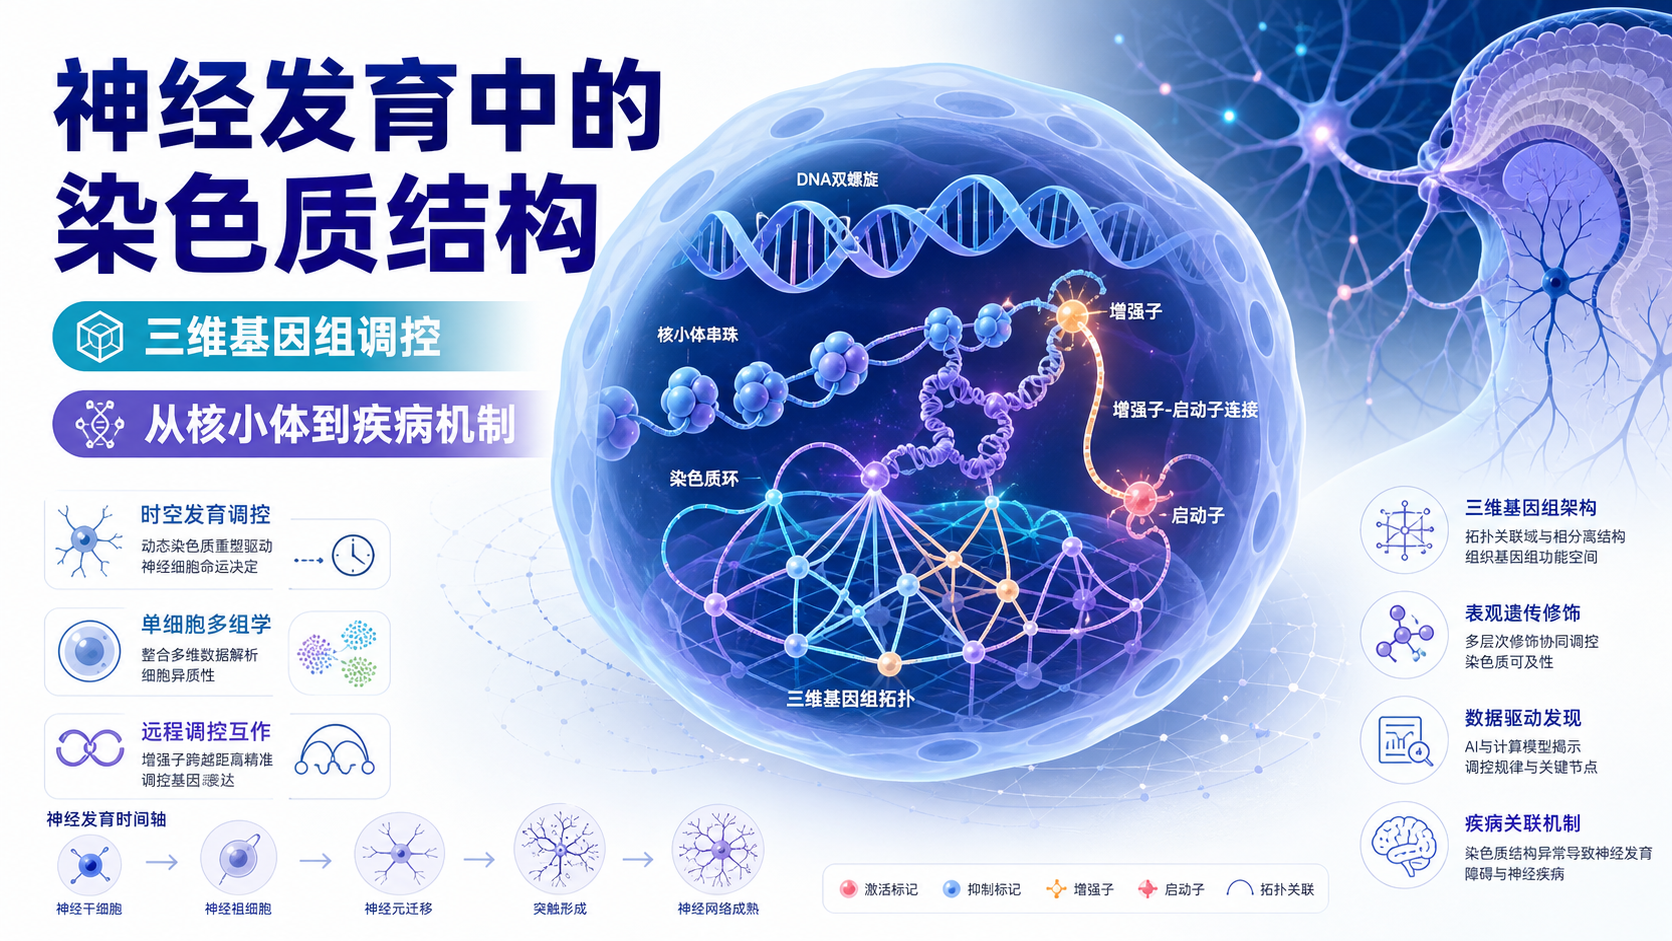
神经发育不是单纯的“基因开关”问题。染色质结构如何在不同阶段重塑,直接决定神经祖细胞增殖、分化和神经环路建立。 对做机制研究的人来说,难点在于,很多表型变化先发生在三维基因组层面,随后才体现在转录和细胞命运上。
1. 神经发育为什么高度依赖染色质结构
1.1 从线性DNA到三维基因组
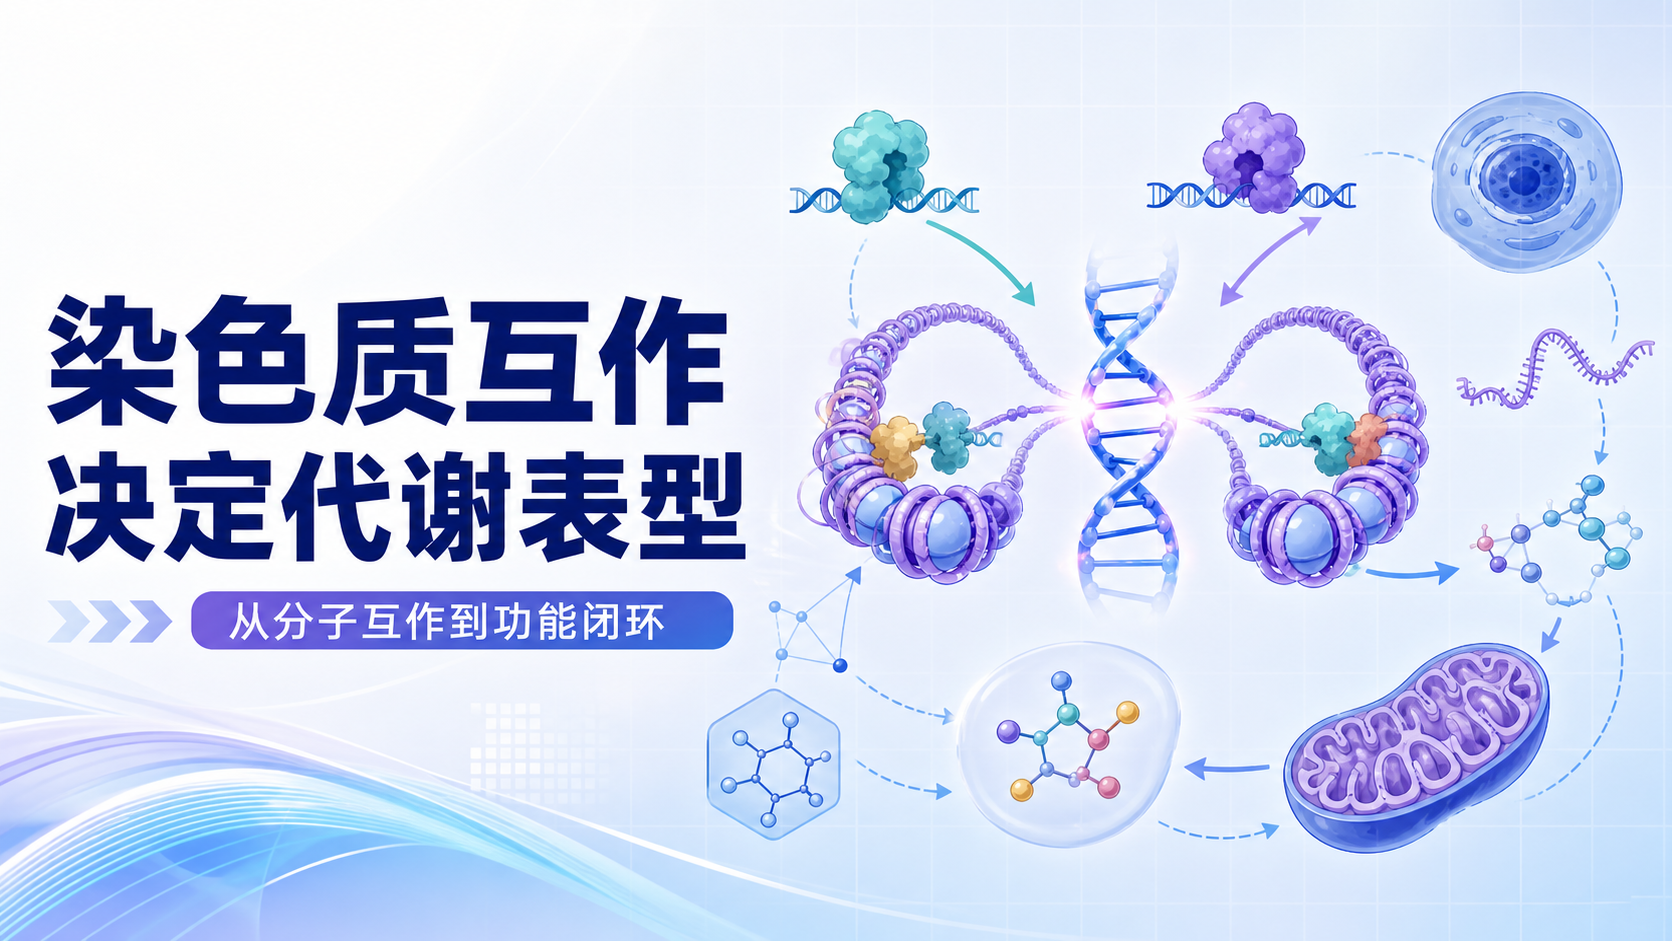
在真核细胞中,DNA并不是裸露存在。它与组蛋白、非组蛋白及少量RNA共同形成染色质。染色质不是静态包装,而是动态三维结构。
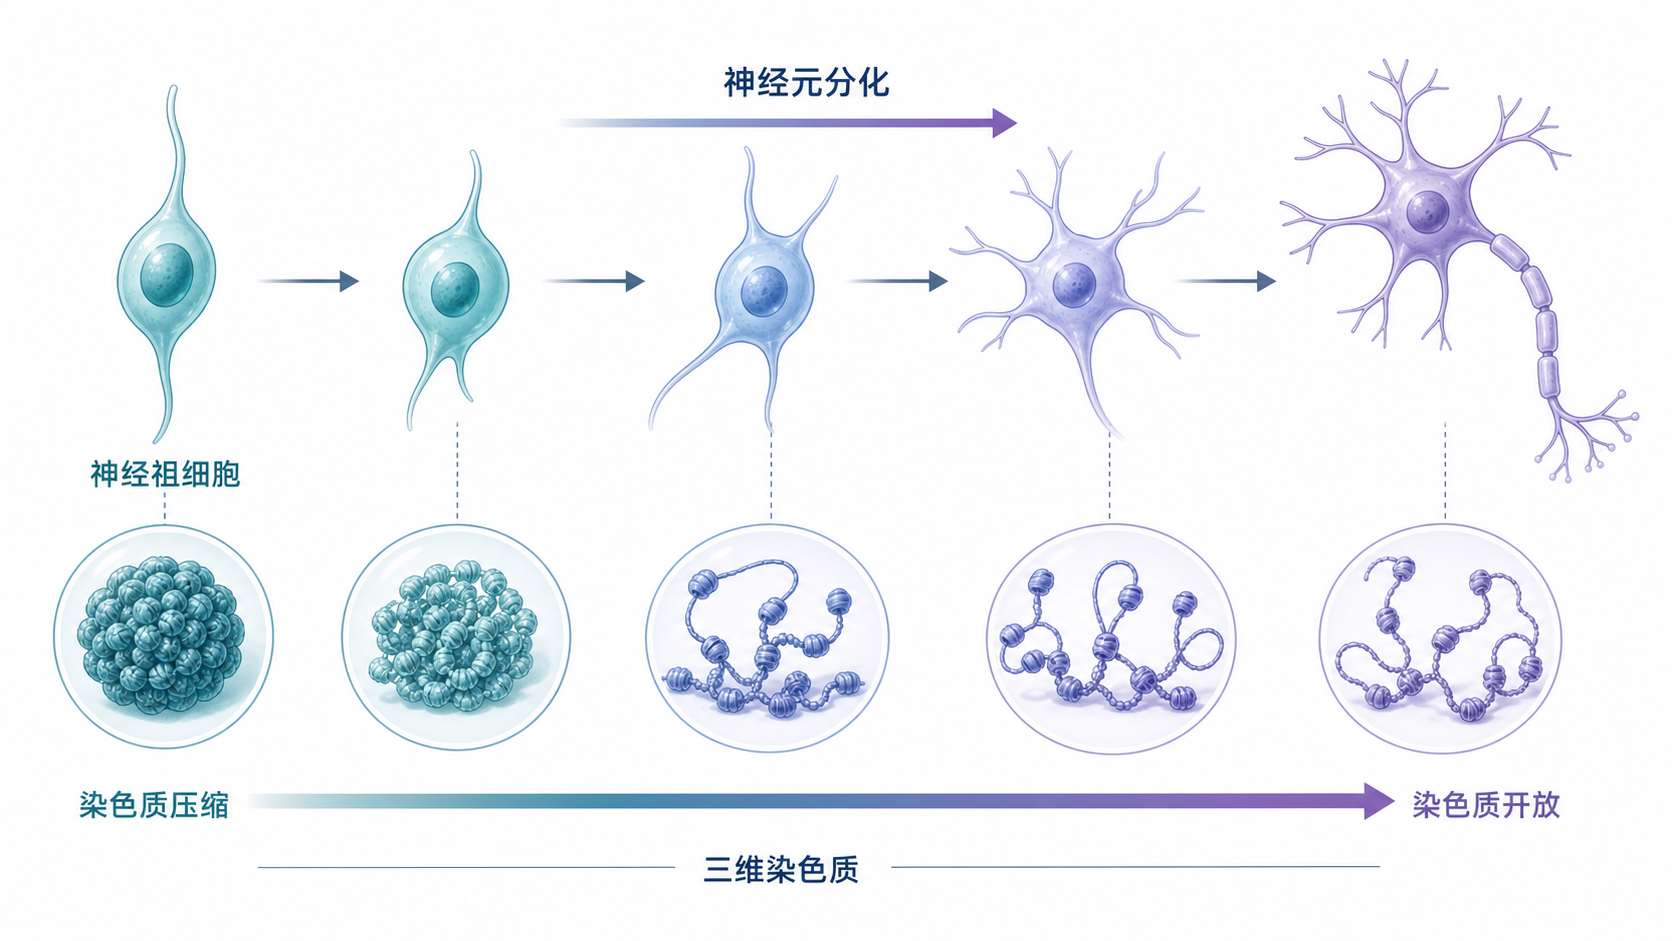
在神经发育过程中,这种结构变化尤其重要。因为神经系统发育涉及大量阶段性基因表达切换。神经祖细胞需要先维持增殖,再进入分化,最后形成特定神经元或胶质细胞谱系。这个过程依赖染色质在“开放”和“压缩”之间不断切换。
1.2 染色质状态决定转录可及性
核小体排列紧密时,转录因子和RNA聚合酶更难接近启动子和增强子。相反,常染色质更开放,通常更利于基因转录启动。
需要强调的是,常染色质并不等于“所有基因都高表达”,它只是表达活跃的必要条件之一。神经发育中,许多发育基因正是在特定时间窗口内,因局部染色质开放而被精确激活。
2. 神经发育染色质结构的核心机制
2.1 核小体重排与染色质重塑
染色质重塑指的是核小体位置、密度和构象的改变。这个过程通常依赖ATP。它的本质,是让DNA调控元件暴露或重新隐藏。
在神经发育中,重塑复合物可帮助神经谱系相关基因获得可及性,从而驱动细胞命运转换。很多研究提示,神经分化并不只是“表达上升”,而是先有结构松动,再有转录启动。
2.2 组蛋白修饰与DNA甲基化协同
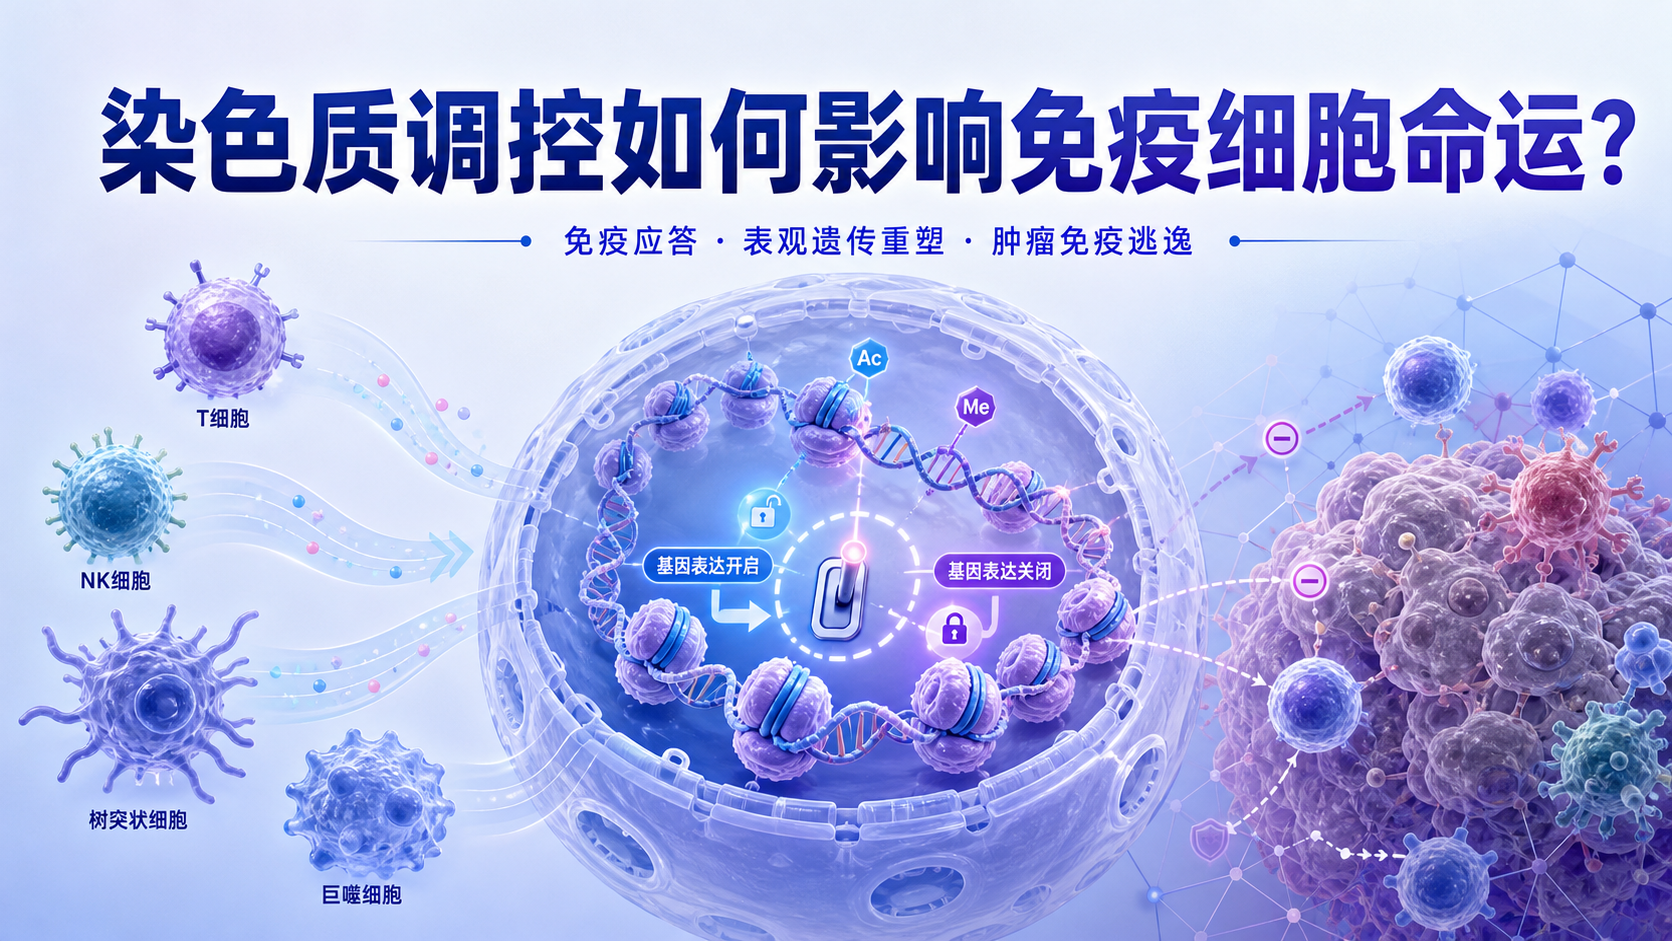
组蛋白乙酰化、甲基化、磷酸化等修饰,会改变DNA与蛋白之间的亲和力。这些修饰共同塑造神经发育染色质结构的开放程度。
DNA甲基化同样关键。它常与基因沉默相关,尤其在发育早期和细胞命运稳定阶段。对神经系统而言,某些发育程序需要被及时关闭,才能保证谱系分化的方向性。
2.3 非组蛋白与三维拓扑组织
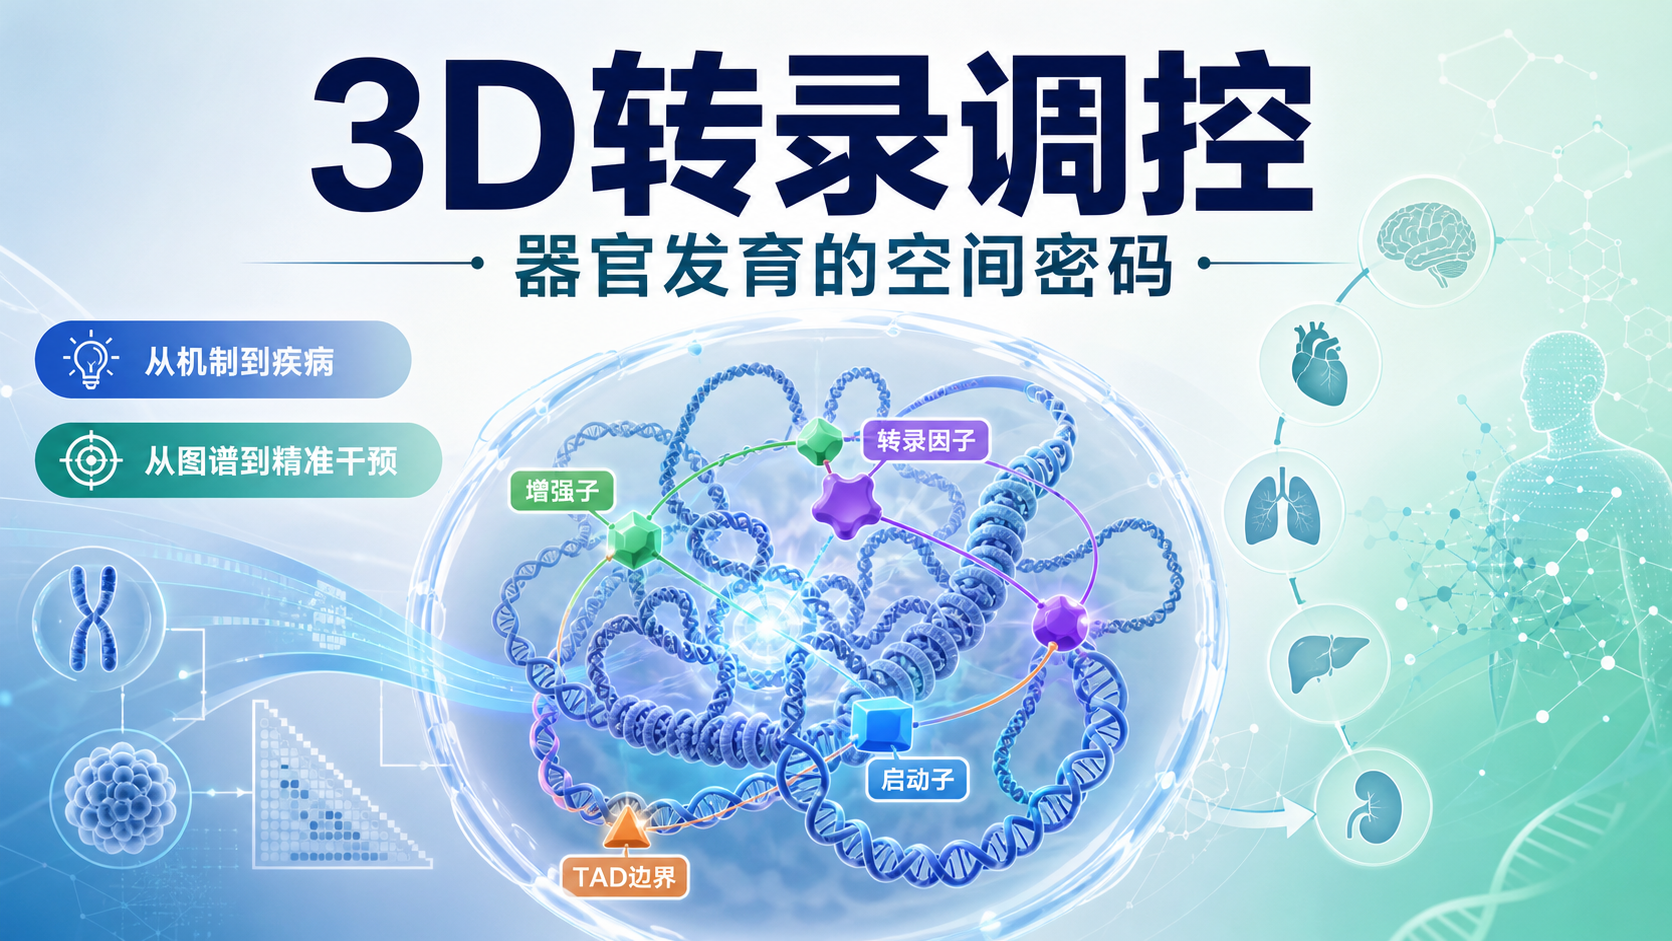
非组蛋白并不是“配角”。它们可帮助远距离调控元件接触,重塑染色质环和拓扑结构。
远端增强子和启动子的空间接触,是神经发育基因精确表达的重要基础。
在三维空间中,原本线性距离很远的序列,可能因为折叠而成为邻居。这种结构变化,会直接影响神经发育关键基因是否被激活。
3. 神经发育中的关键结构层级
3.1 常染色质与异染色质的动态平衡
电镜和高分辨率显微成像显示,细胞核内可见浅染的常染色质和深染的异染色质。神经发育并不是一味开放,而是需要局部开放、局部关闭的精细平衡。
结构异染色质通常更稳定,富含重复序列,转录活性低。间性异染色质则可由常染色质转变而来。对神经祖细胞来说,这种转换有助于锁定成熟细胞命运。
3.2 核小体排列与基因可及性
核小体间距变化,会影响启动子、增强子和绝缘子是否可被识别。
在神经分化研究中,核小体重排常被视为早期事件,因为它往往早于mRNA水平变化出现。也就是说,结构先变,表达随后才变。
这也是为什么单看转录组,有时无法完整解释神经发育表型。
3.3 染色质环和增强子选择性激活
神经发育需要高度特异的增强子活化。不同脑区、不同发育阶段,增强子的使用模式都不同。
当增强子与目标基因启动子形成稳定环状接触时,相关基因才可能进入高表达状态。这个过程对神经元亚型决定尤其关键。很多脑发育相关基因,并不是靠“近端启动子单独工作”,而是依赖远端调控元件共同驱动。
4. 机制研究的新进展
4.1 单细胞多组学让时空解析更精细
过去研究神经发育,常见问题是样本平均化严重。现在,单细胞测序结合染色质可及性分析,已经可以更细地拆分细胞状态。
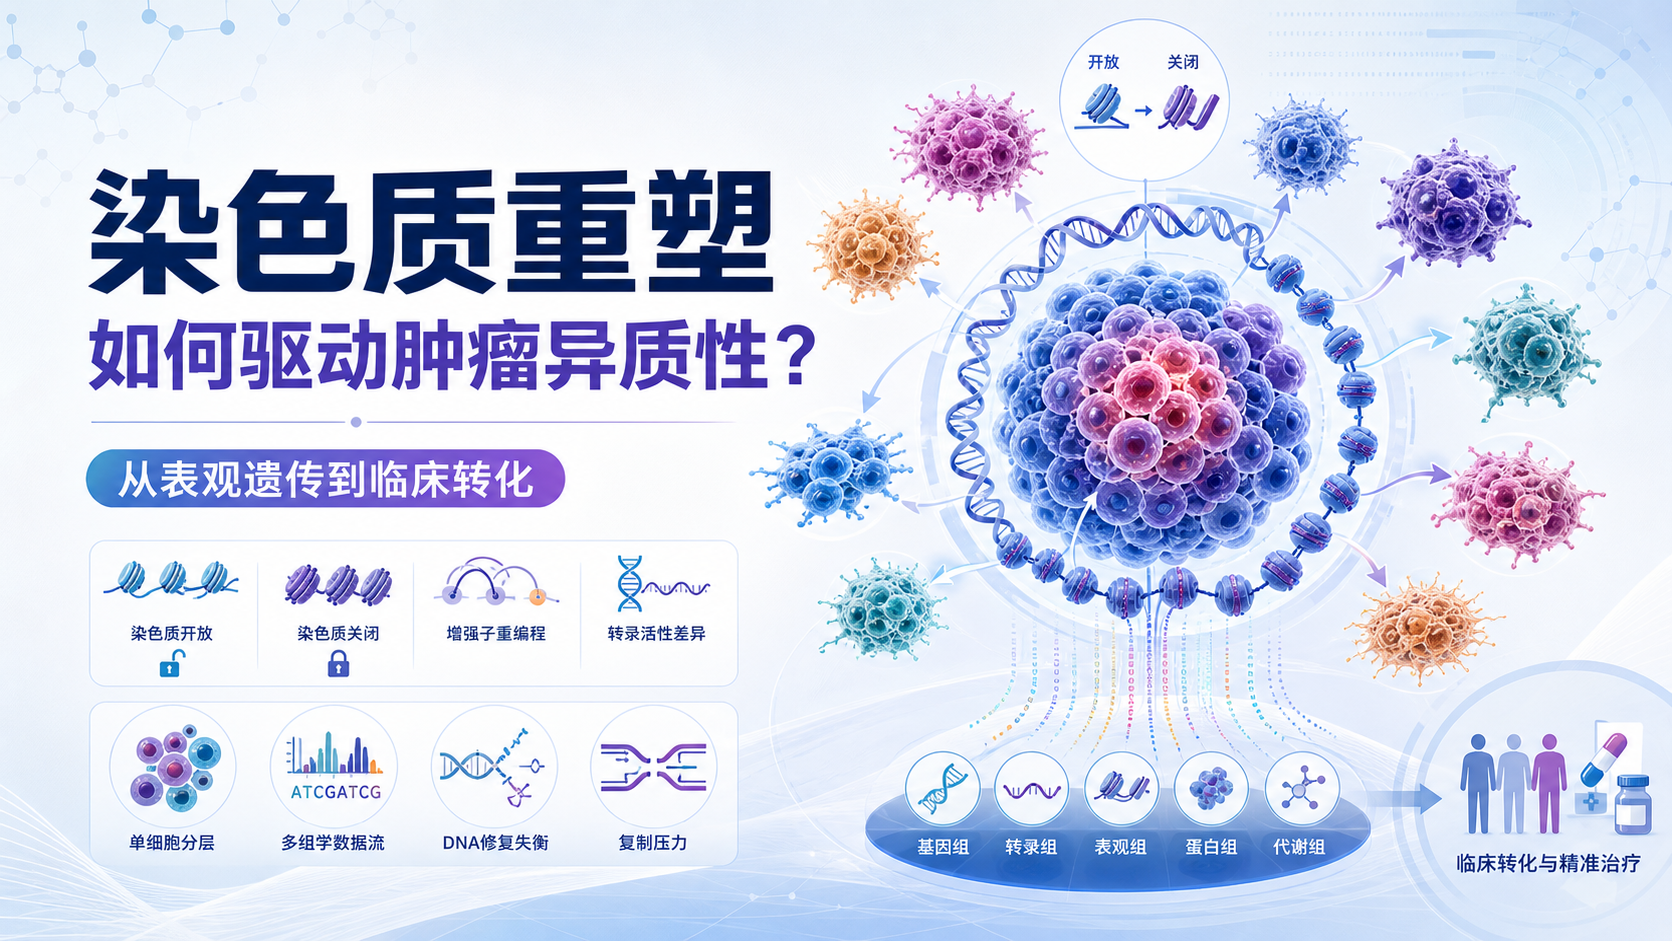
单细胞层面的染色质图谱,有助于识别过渡态细胞和命运分支点。
这对追踪神经祖细胞向不同神经谱系分化非常重要,也能帮助解释发育异常为何呈现细胞亚群特异性。
4.2 三维基因组技术推动远程调控研究
3C及其衍生技术,如Hi-C,可以检测染色质中远距离位点的相互作用。
对于神经发育研究,这类技术的价值在于,它能把“哪个增强子连到了哪个基因”这件事直接可视化。
相比只看线性基因组,三维基因组更适合解释神经发育中复杂的调控逻辑。
4.3 神经发育疾病研究带来新的结构视角
越来越多证据提示,神经发育异常并不只是编码基因突变,也可能来自染色质结构调控失衡。
例如,若某些调控元件接触模式异常,便可能导致神经发育相关基因表达时序紊乱。因此,染色质结构已从“背景变量”变成“病理机制变量”。
这也是当前神经发育研究中非常值得关注的方向。
5. 实验设计中需要注意的几个问题
5.1 结构变化不等于表达变化已完成
染色质开放只是可能性,不是最终结果。
在实验解读中,要区分结构变化、转录变化和蛋白功能变化。神经发育研究尤其如此,因为细胞状态转换具有阶段性,单一时间点可能会遗漏关键中间态。
5.2 不同技术回答的问题不同
如果关注染色质密度和细胞核形态,可考虑电镜或高分辨率成像。
如果关注核小体排列,可选微球菌核酸酶相关实验。
如果关注远距离位点互作,可用3C或Hi-C。
如果关注蛋白与DNA结合,可结合ChIP类方法。技术选择必须与科学问题一一对应。
5.3 结果解释要结合细胞类型和发育时相
神经系统的异质性很强。同一标记在神经祖细胞、成熟神经元、胶质细胞中,意义可能完全不同。
因此,分析神经发育染色质结构时,必须明确样本来源、发育阶段和细胞亚群,否则很容易得到“看似显著、实则不可比”的结果。
总结Conclusion
神经发育的本质,不只是基因表达变化,更是神经发育染色质结构在时间和空间上的精细重塑。 从核小体重排、组蛋白修饰,到三维基因组环路和增强子接触,这些变化共同决定了细胞命运的走向。对医学生、医生和科研人员来说,理解这一层机制,有助于把表型、转录和结构数据真正串联起来。
如果你正在做神经发育相关机制研究,想更高效地梳理实验思路、技术路线和文献脉络,可以关注解螺旋。它能帮助你把复杂问题拆成可验证的结构层级,少走弯路,提升课题推进效率。
- 引言Introduction
- 1. 神经发育为什么高度依赖染色质结构
- 2. 神经发育染色质结构的核心机制
- 3. 神经发育中的关键结构层级
- 4. 机制研究的新进展
- 5. 实验设计中需要注意的几个问题
- 总结Conclusion