

 10
 分享
引言Introduction
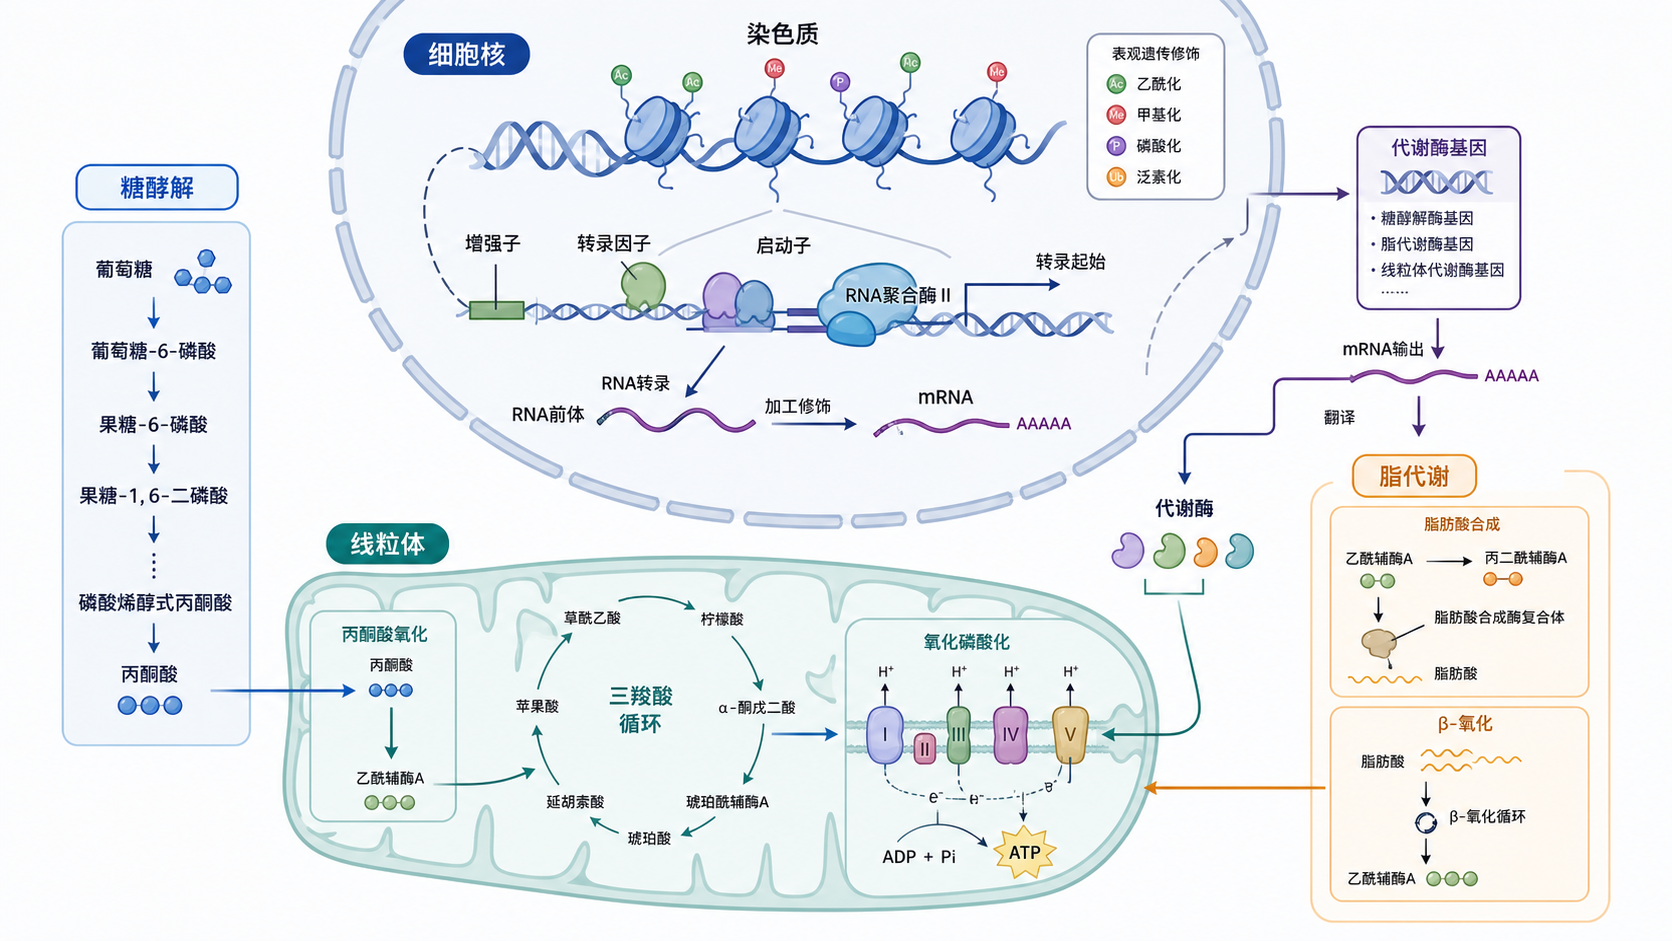
染色质不是静态包装。它会和蛋白、RNA、DNA持续互作,进而改写代谢基因表达,影响糖酵解、脂代谢和氧化磷酸化。如果只看单个分子变化,很难解释代谢表型为何发生。 要真正理解机制,必须把“互作”放进因果链条里看。
1. 染色质互作为什么能决定代谢表型
1.1 代谢变化的上游,常常不是代谢酶本身
代谢重编程看起来发生在细胞质和线粒体,但真正的起点常在细胞核。染色质开放程度、增强子活性、转录因子占位,都会影响代谢相关基因的转录输出。比如葡萄糖转运体、糖酵解酶、脂肪酸合成酶、线粒体呼吸链组分,很多都受染色质状态控制。
所以,代谢表型不是单一酶变化,而是一个转录网络结果。 当某个染色质调控因子与启动子或增强子互作增强时,常会同时改变一组代谢基因,而不是只改变一个靶点。
1.2 互作逻辑比“表达上升”更接近机制本身
仅仅检测某个基因上调,最多说明相关,不能说明因果。若要证明染色质互作调控代谢,通常需要回答三个问题:
- 谁在和谁互作。
- 互作是否影响目标基因转录。
- 这种转录变化是否足以解释代谢表型。
这就是从“相关”走向“机制”的核心路径。 如果没有互作层面的证据,代谢改变很容易停留在描述性结论。
2. 染色质互作的常见实验框架
2.1 从蛋白到DNA:ChIP和其延伸思路
研究转录因子、染色质修饰因子时,最常用的是ChIP。它的逻辑是从蛋白出发,用抗体把目标蛋白拉下来,再检测其结合的DNA片段。若已知候选启动子,可做qPCR;若未知结合位点,可进一步测序。
ChIP回答的是“这个蛋白是否占据了这个基因调控区”。
在代谢研究中,这一步很关键,因为很多代谢基因的转录变化,本质上取决于染色质调控蛋白是否真正坐在启动子上。
2.2 从RNA到染色质:RNA参与的互作不能混为一谈
当研究对象从蛋白换成RNA,实验体系也要随之改变。lncRNA、circRNA等常通过RIP、RNA Pulldown、ChIRP等方式,验证其是否参与染色质调控。这里的关键不是“有没有表达”,而是“有没有接触、接触谁、接触后改变了什么”。
RNA不只是旁观者。
在代谢调控中,许多非编码RNA会充当支架、向导或海绵分子,帮助染色质调控复合体定位到特定基因位点,从而影响代谢基因转录。
2.3 互作验证必须区分方向
互作论证不能只做单向。比如蛋白A和DNA B的结合,要证明的是A是否占据B;而如果再从RNA、蛋白、染色质复合体层面继续推导,就必须分别设计对应实验。A到B和B到A不是同一个问题。
在写文章时,最常见的漏洞就是只做了一个方向的数据,却试图推导完整机制。严格的做法是:
- 先证明直接互作。
- 再证明互作位点。
- 最后证明该互作确实改变代谢表型。
3. 从互作到代谢:机制链条如何搭起来
3.1 先锁定靶基因,再看代谢输出
染色质互作调控代谢,通常不是“泛泛影响全局”,而是通过特定靶基因实现。常见流程是:
- 通过转录组或候选基因筛查,找到代谢相关差异基因。
- 用ChIP、RIP、Pulldown等确认上游分子是否直接作用于该位点。
- 用双荧光素酶或启动子报告实验验证转录活性变化。
- 再回到代谢表型,如葡萄糖摄取、乳酸生成、ATP水平、OCR/ECAR等。
只有把分子互作和代谢读数连起来,机制才闭环。
3.2 代谢表型的常用评价指标
在肿瘤和炎症研究里,代谢重编程常通过以下指标体现:
- 葡萄糖摄取增加。
- 乳酸生成升高。
- ECAR升高,提示糖酵解增强。
- OCR变化,提示线粒体呼吸改变。
- ATP水平、ROS水平、NAD+/NADH比值改变。
这些指标不能单独说明机制,但能帮助判断染色质互作最终把细胞推向了哪种代谢状态。代谢实验的价值,在于把“核内事件”翻译成“细胞功能结果”。
3.3 交互链条常见于非编码RNA和转录因子轴
在很多模型中,lncRNA并不直接催化反应,而是通过结合转录因子、染色质修饰酶或RNA结合蛋白,改变代谢基因的转录状态。常见模式包括:
- lncRNA招募组蛋白乙酰转移酶,增强启动子活性。
- lncRNA阻断抑制性复合体,解除转录抑制。
- 转录因子在染色质上占位变化,导致代谢酶表达上升或下降。
这类机制的共同点,是把“互作”变成“转录变化”,再变成“代谢变化”。
4. 研究设计中最容易出错的几个环节
4.1 只证明存在,不证明必要性
很多文章能证明某分子和染色质有互作,但没有证明这种互作对代谢是必要的。真正高质量的机制研究,通常还要做干预实验:
- 敲低上游分子。
- 构建缺失结合位点的突变体。
- 做rescue实验恢复代谢表型。
如果去掉互作,代谢变化也消失,才说明这个互作是必要的。
4.2 只看终点,不看中间节点
代谢调控是连续过程。只看最终ATP或乳酸变化,容易漏掉中间的染色质事件。更稳妥的设计是按层级推进:
- 染色质占位是否改变。
- 启动子活性是否改变。
- 目标基因表达是否改变。
- 代谢通量是否改变。
- 细胞功能是否改变。
这个顺序能帮助你避免“结果有了,机制断了”的问题。
4.3 位点验证不足
如果你只知道某个RNA或蛋白参与调控,却不知道具体结合区,文章的说服力会明显下降。位点解析可以把机制从“可能”推进到“明确”。对核酸可做分段截短,对蛋白可做结构域截短或点突变。
位点清楚,机制才完整。
尤其在染色质互作研究中,位点验证往往决定文章能否从现象层面进入机制层面。
5. 染色质互作如何服务于代谢调控研究
5.1 对肿瘤代谢尤其重要
肿瘤细胞依赖代谢重编程维持增殖和转移。许多癌基因、抑癌基因以及非编码RNA,最终都落在代谢通路上。染色质互作研究的意义在于,它能解释为什么同样的代谢酶,在不同细胞状态下会出现不同表达和活性。
换句话说,染色质决定了代谢程序怎么被“写入”。
5.2 对炎症和免疫代谢同样关键
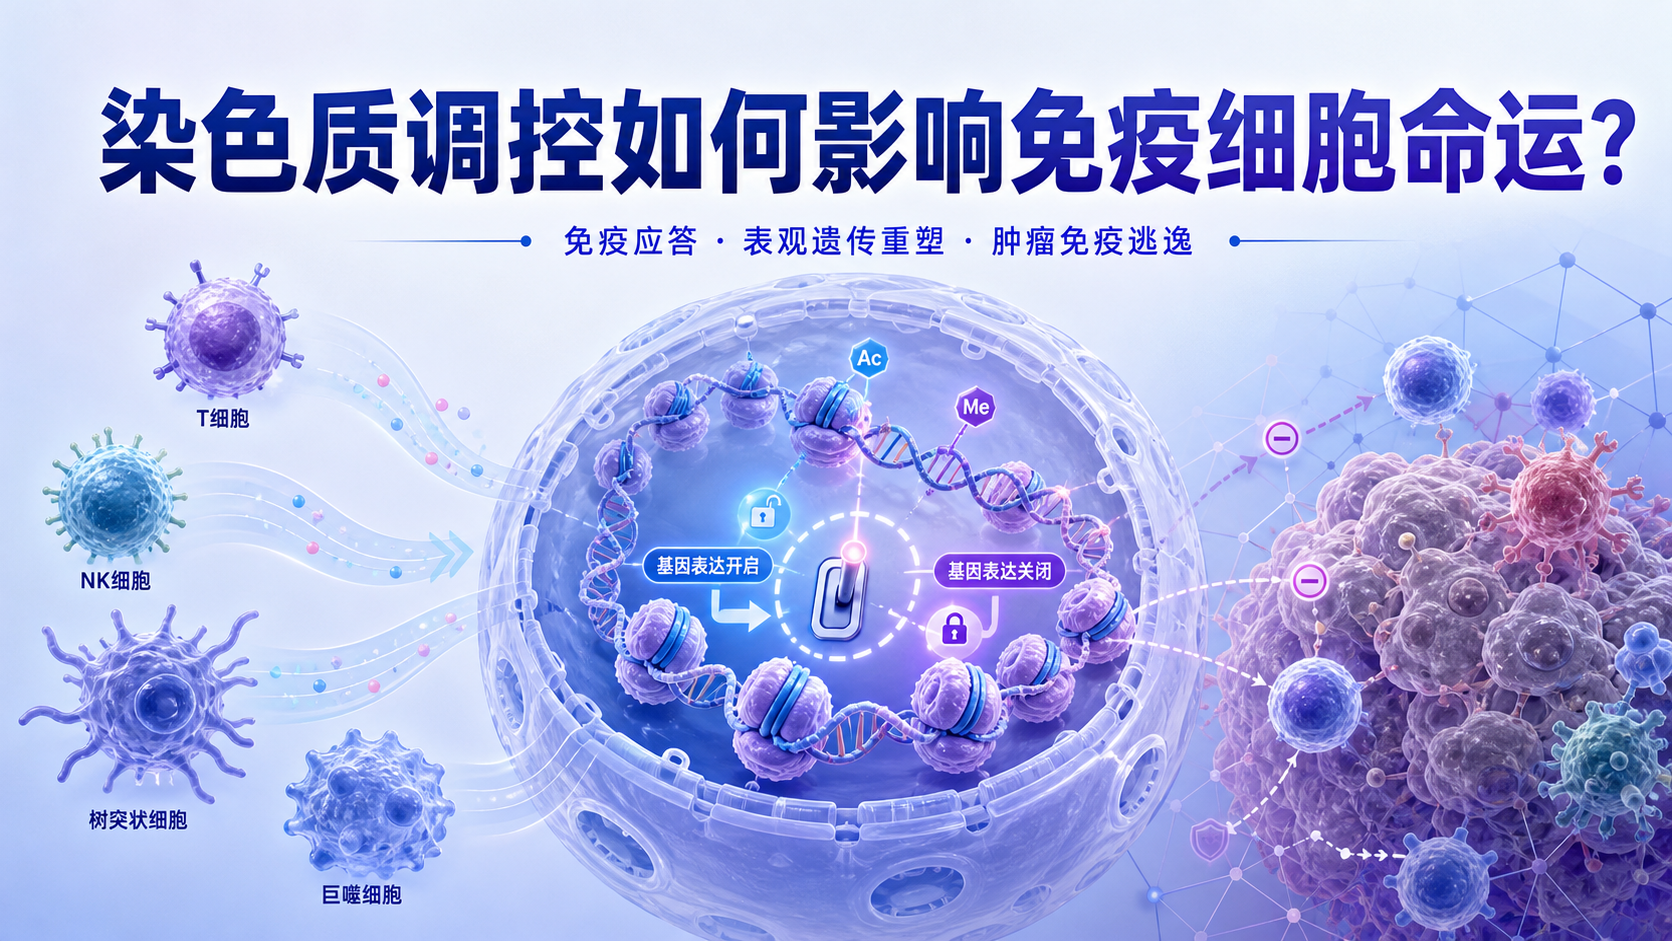
免疫细胞激活后,会迅速切换代谢模式。这个过程常伴随染色质重塑。比如巨噬细胞极化、T细胞活化、树突状细胞应答,都存在明确的转录调控和代谢耦联。研究这些问题时,单纯测代谢物不够,必须结合染色质层面的互作证据。
5.3 研究逻辑要从“分子互作”走向“功能闭环”
一个完整的机制链条通常是:
- 某分子与染色质互作。
- 互作改变启动子或增强子活性。
- 目标代谢基因表达改变。
- 代谢通量发生变化。
- 最终影响增殖、迁移、耐药或免疫功能。
这条链一旦建立,文章逻辑就会非常清楚。
如果你正在做这类课题,解螺旋可以帮助你把“互作证据、位点设计、机制图和文章叙事”串成一条线,避免实验做了很多,最后却写不成完整故事。
总结Conclusion
染色质互作调控代谢的本质,是把核内调控事件转化为细胞代谢程序的变化。要讲清这个机制,必须按“互作、位点、转录、代谢、功能”逐层推进。只看表达,不看互作;只看代谢,不看上游,都会让机制不完整。
对医学生、医生和科研人员来说,真正有价值的不是孤立结果,而是能闭环的因果链。若你正在搭建相关课题框架,建议借助解螺旋的专业支持,把实验设计、机制拆解和论文表达一次性理顺。
- 引言Introduction
- 1. 染色质互作为什么能决定代谢表型
- 2. 染色质互作的常见实验框架
- 3. 从互作到代谢:机制链条如何搭起来
- 4. 研究设计中最容易出错的几个环节
- 5. 染色质互作如何服务于代谢调控研究
- 总结Conclusion