18
 分享
引言Introduction
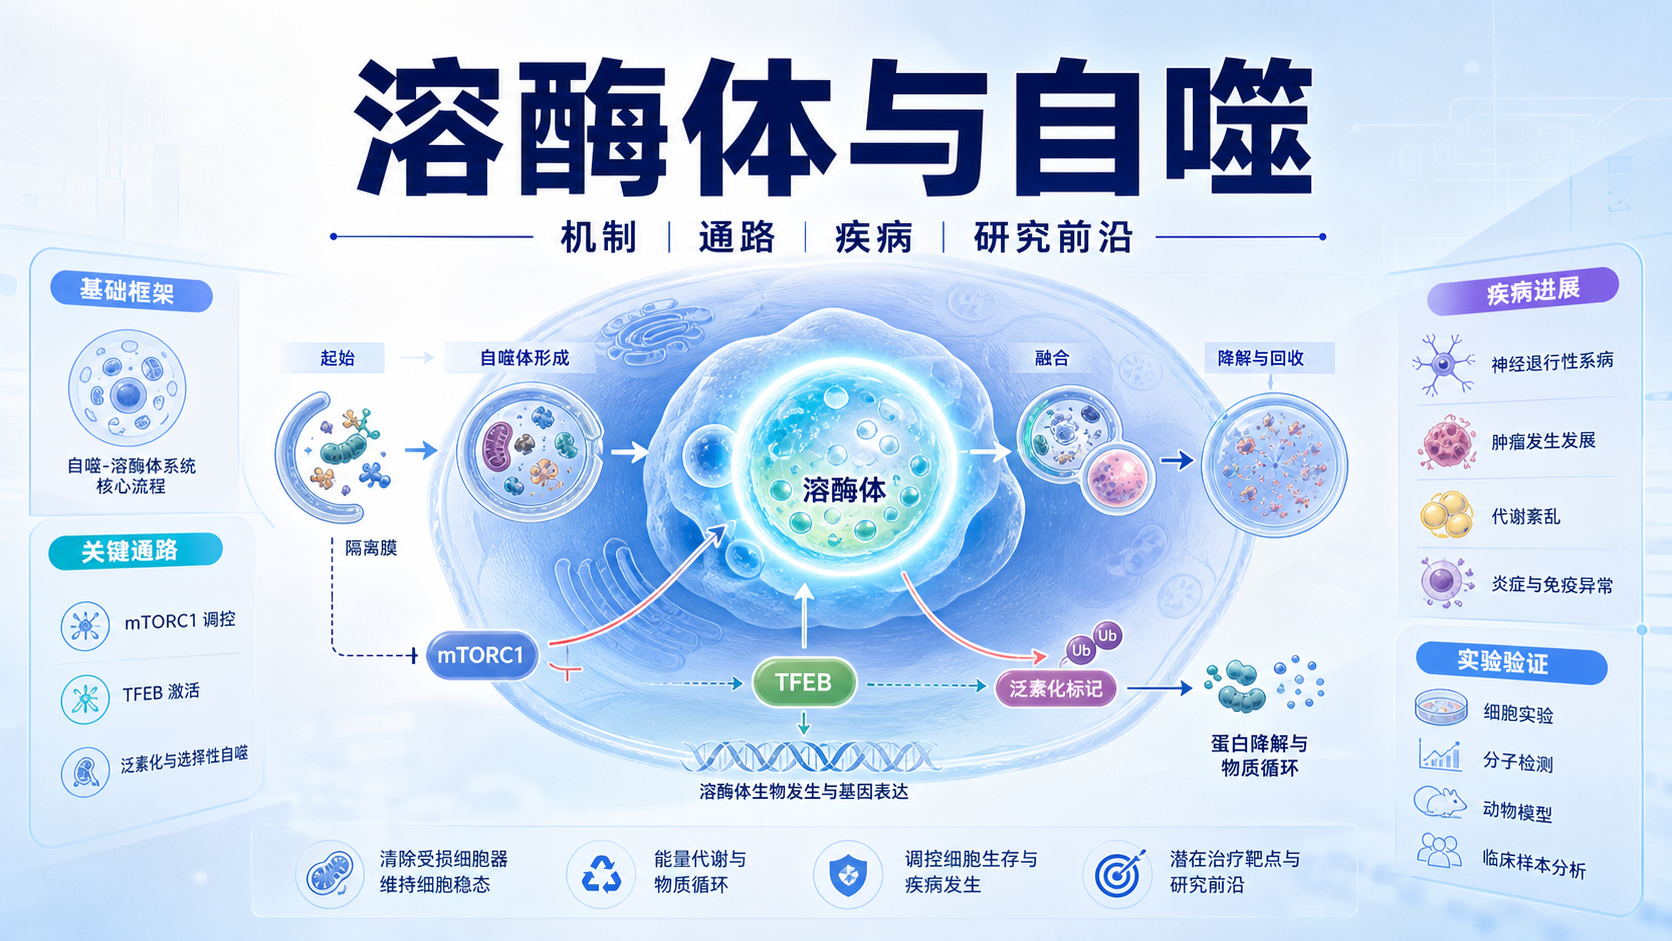
溶酶体与自噬常被一起讨论,但真正做疾病研究时,很多人卡在“通路怎么连、实验怎么做、结果怎么解释”。如果只停留在概念层面,很难把机制研究转化为课题设计和论文产出。 本文围绕溶酶体信号通路与自噬通路的关键连接点,梳理它们在疾病中的研究进展。
1. 溶酶体与自噬的基础框架
1.1 溶酶体不只是“降解终点”
溶酶体是细胞内的重要降解和回收中心,含多种酸性水解酶,如酸性磷酸酶、DNase II和酸性蛋白酶。它不仅负责降解蛋白、多糖、核酸和脂质,还参与自噬、内质网应激、免疫调控和凋亡 等过程。
从机制上看,溶酶体酶的合成、修饰和运输依赖内质网-高尔基体途径。进入成熟溶酶体后,还需要酸性环境激活。这个酸性环境主要由V-ATPase和氯离子通道协同维持 。因此,溶酶体功能异常,往往不是单一酶缺陷,而是“生成、运输、酸化、融合”任一环节出问题。
1.2 自噬是一个动态过程
自噬不是静态“清除垃圾”,而是一个连续过程。典型宏自噬包括:
- 自噬起始。
- 自噬体形成。
- 自噬体成熟。
- 与溶酶体融合。
- 内容物降解与回收。
LC3常被用作自噬标志物,但它更适合反映自噬体膜相关变化,而不是单独解释自噬通量。 如果研究重点是疾病机制,必须结合溶酶体功能、自噬体融合和降解效率综合判断。
1.3 溶酶体信号通路是自噬调控枢纽
溶酶体不只是“终点站”,还是信号平台。当前研究最重要的两个方向是:
- mTORC1信号通路 ,决定细胞生长与自噬抑制。
- TFEB信号通路 ,调控溶酶体生成与自噬相关基因表达。
这意味着溶酶体信号通路既影响自噬启动,也影响后续降解能力。 因此,在肿瘤、神经退行性疾病和代谢病中,它常常是上游调控核心。
2. 关键通路如何连接溶酶体与自噬
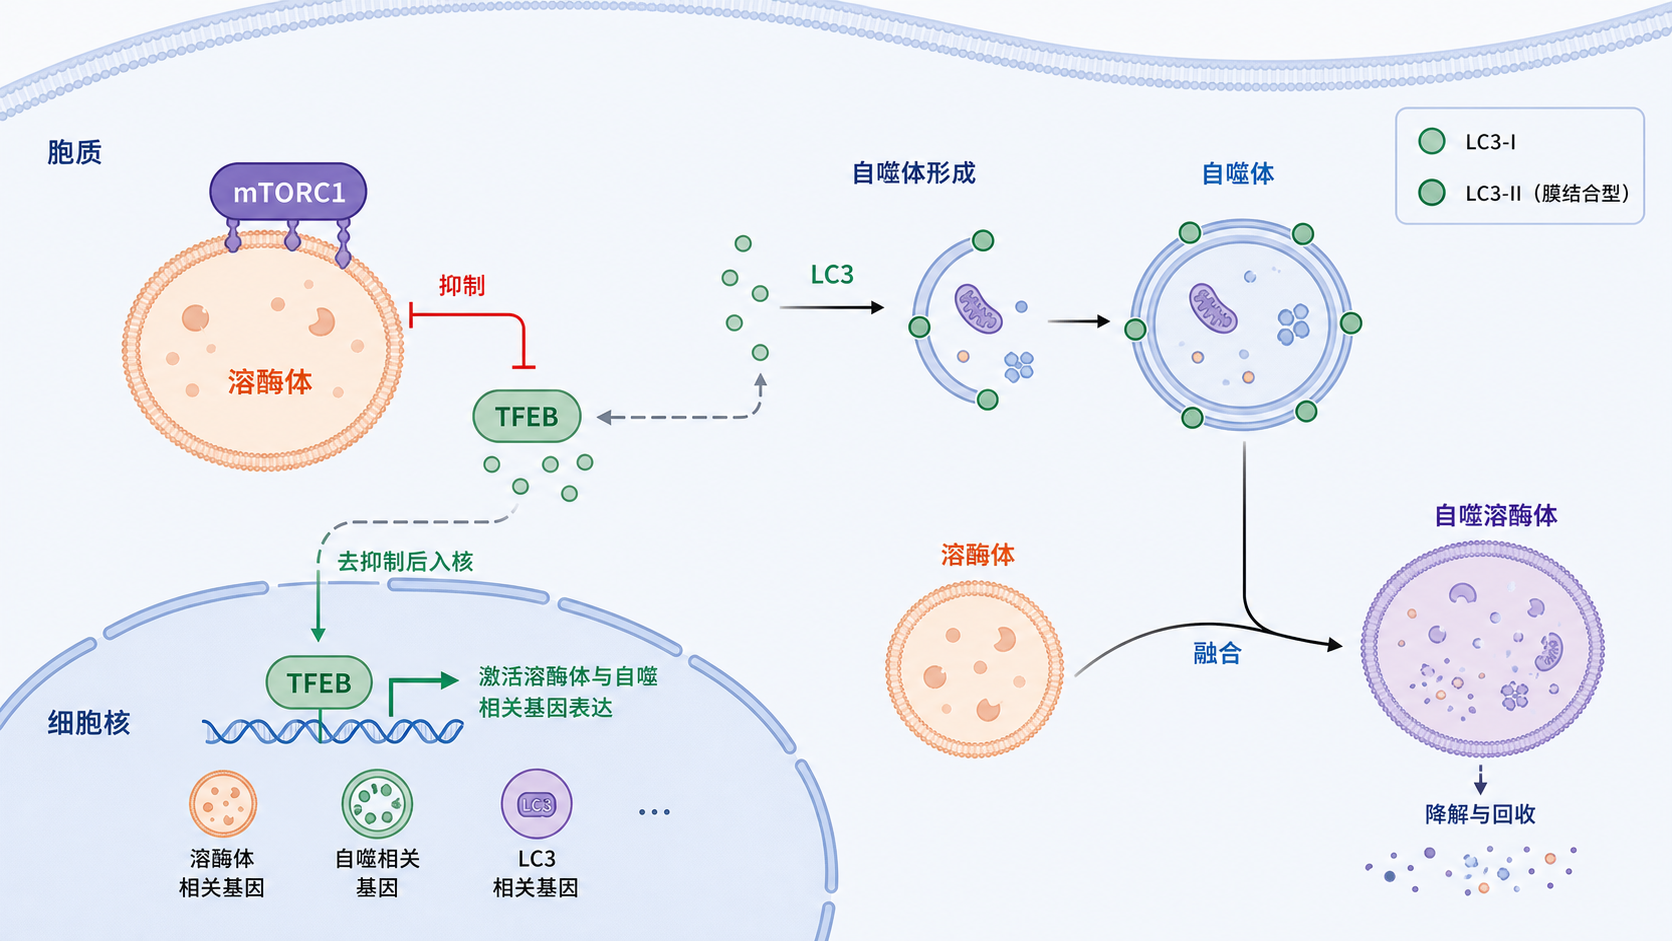
2.1 mTORC1位于溶酶体表面,决定自噬开关
mTORC1在营养充足时活跃,抑制ULK1复合物,从而压制自噬启动。饥饿、能量不足或应激状态下,mTORC1活性下降,自噬被解除抑制。
mTORC1之所以重要,是因为它位于溶酶体膜上,是“营养感知”和“自噬启动”之间的桥梁。 在肿瘤中,mTORC1长期高活性会促进增殖并抑制自噬清除。相反,在神经退行性疾病中,过度抑制或异常激活都可能破坏稳态。
2.2 TFEB连接溶酶体生物发生与自噬基因表达
TFEB是调控溶酶体和自噬相关基因表达的重要转录因子。一般情况下,mTORC1活跃时,TFEB被磷酸化并滞留于胞质。营养缺乏或溶酶体压力增加时,TFEB入核,促进溶酶体生成和自噬相关基因转录。
这意味着,TFEB不是单纯的“自噬增强器”,而是溶酶体功能重建的核心节点。 在溶酶体储积性疾病、某些神经退行性疾病和肿瘤适应性代谢中,TFEB都具有重要研究价值。
2.3 融合和泛素化步骤决定“能不能真正降解”
自噬研究常见误区,是只看自噬体数量,却忽略融合和降解。事实上,自噬是否完成,取决于自噬体是否能与溶酶体正确融合。这个过程涉及LAMP1、LAMP2、Rab家族、小GTP酶、ESCRT以及SNARE complex等分子。
此外,部分细胞器选择性自噬还依赖泛素化标记。以溶酶体自噬为例,受损溶酶体可被Galectin-3标记 ,随后引发SNARE complex泛素化,再由受体识别并与LC3结合,完成清除。这类机制为实验验证提供了直接切入点。
3. 溶酶体与自噬异常在疾病中的研究进展
3.1 神经退行性疾病最典型
在阿尔茨海默病和帕金森病中,异常蛋白聚集与细胞器清除障碍高度相关。溶酶体酸化不足、融合障碍或酶活下降,都会导致底物堆积,进而加重神经元损伤。
尤其在神经元这种长寿命细胞中,溶酶体-自噬轴几乎是维持稳态的核心系统。 一旦该系统受损,错误折叠蛋白、受损线粒体和膜性残片都难以及时清除,病理负担持续累积。
3.2 肿瘤中呈现“双刃剑”效应
肿瘤细胞常通过重编程溶酶体和自噬通路来适应缺氧、缺营养和药物压力。早期肿瘤中,自噬可能限制基因组不稳定和氧化损伤。进入进展期后,肿瘤又可能利用自噬维持能量供应和耐药。
因此,肿瘤研究中不能简单把自噬看成“抑癌”或“促癌”。 必须结合肿瘤类型、分期、微环境和治疗背景判断。溶酶体信号通路在这类研究中常与mTOR、TFEB及药物耐受机制并行分析。
3.3 代谢病和炎症性疾病中研究升温
在脂代谢紊乱、动脉粥样硬化、糖尿病相关损伤和慢性炎症中,溶酶体功能障碍会影响脂滴降解、膜蛋白周转和炎症信号清除。自噬受阻后,细胞更容易积累受损线粒体和炎症小体激活信号。
这类疾病的共同点是:溶酶体不只承担“末端清除”,还参与代谢重塑和炎症控制。 因此,近年来越来越多研究把溶酶体信号通路作为代谢性疾病干预靶点。
3.4 罕见病和遗传病提供了“因果证据”
溶酶体储积性疾病是研究溶酶体功能最直接的人类模型。由于某些水解酶、膜蛋白或运输蛋白突变,底物无法降解,细胞内出现特征性堆积。这类疾病为“溶酶体功能缺陷会导致病变”提供了明确因果证据。
从科研角度看,罕见病的价值在于机制清晰。它们常能帮助研究者反向理解常见病中的溶酶体异常。
4. 研究设计与实验验证要点
4.1 不能只看LC3
在实验中,单看LC3升高并不等于自噬增强。LC3升高可能来自自噬体生成增加,也可能来自降解阻滞。真正可靠的判断,应结合:
- p62/SQSTM1变化。
- 溶酶体酸化情况。
- 自噬通量检测。
- 电镜观察。
- 共定位分析。
尤其是研究溶酶体信号通路时,必须验证“形成”和“降解”两个环节。
4.2 优先选择可解释的模型
如果是疾病机制研究,建议优先采用:
- 已知存在自噬异常的疾病模型。
- 有公开组学数据支持的模型。
- 可做干预验证的细胞或动物体系。
对于医学生、医生和科研人员来说,最常见的策略是先用公开数据库筛选候选基因,再结合细胞模型做功能验证。这类路线更适合形成可发表、可延展的研究闭环。
4.3 蓝海方向在于“细胞器选择性自噬”
除线粒体自噬外,内质网自噬、溶酶体自噬和核糖体自噬的研究仍相对较少。现有文献数量有限,尤其是生信方向几乎空白。对于想做机制创新的人,这些方向值得关注。
但要注意,蓝海不等于低门槛。 这类研究通常对实验条件、抗体选择、成像平台和结果解释能力要求更高。研究设计一定要先明确疾病背景,再判断是否适合做细胞器自噬。
4.4 用解螺旋提高研究效率
在实际工作中,最大的痛点不是“没有通路”,而是通路太多、文献太散、实验逻辑不清。解螺旋可以帮助你更快梳理溶酶体信号通路、自噬轴和疾病表型之间的对应关系。 无论是选题、文献整合,还是设计验证路线,都能减少试错成本,让研究更快进入可执行阶段。
总结Conclusion
溶酶体与自噬并不是两个孤立概念,而是一个高度耦合的调控网络。mTORC1负责“开关”,TFEB负责“重建”,融合和降解决定最终表型。 在神经退行性疾病、肿瘤、代谢病和遗传病中,这一网络都具有重要研究价值。
对于科研工作者来说,真正有意义的不是记住所有分子,而是建立清晰的研究逻辑:疾病表型是否存在,溶酶体信号通路是否异常,自噬通量是否受阻,干预后能否逆转。若你希望更高效地完成选题、机制梳理和论文设计,可以关注解螺旋 ,把复杂通路转化为可落地的研究方案。

- 引言Introduction
- 1. 溶酶体与自噬的基础框架
- 2. 关键通路如何连接溶酶体与自噬
- 3. 溶酶体与自噬异常在疾病中的研究进展
- 4. 研究设计与实验验证要点
- 总结Conclusion