23
 分享
引言Introduction
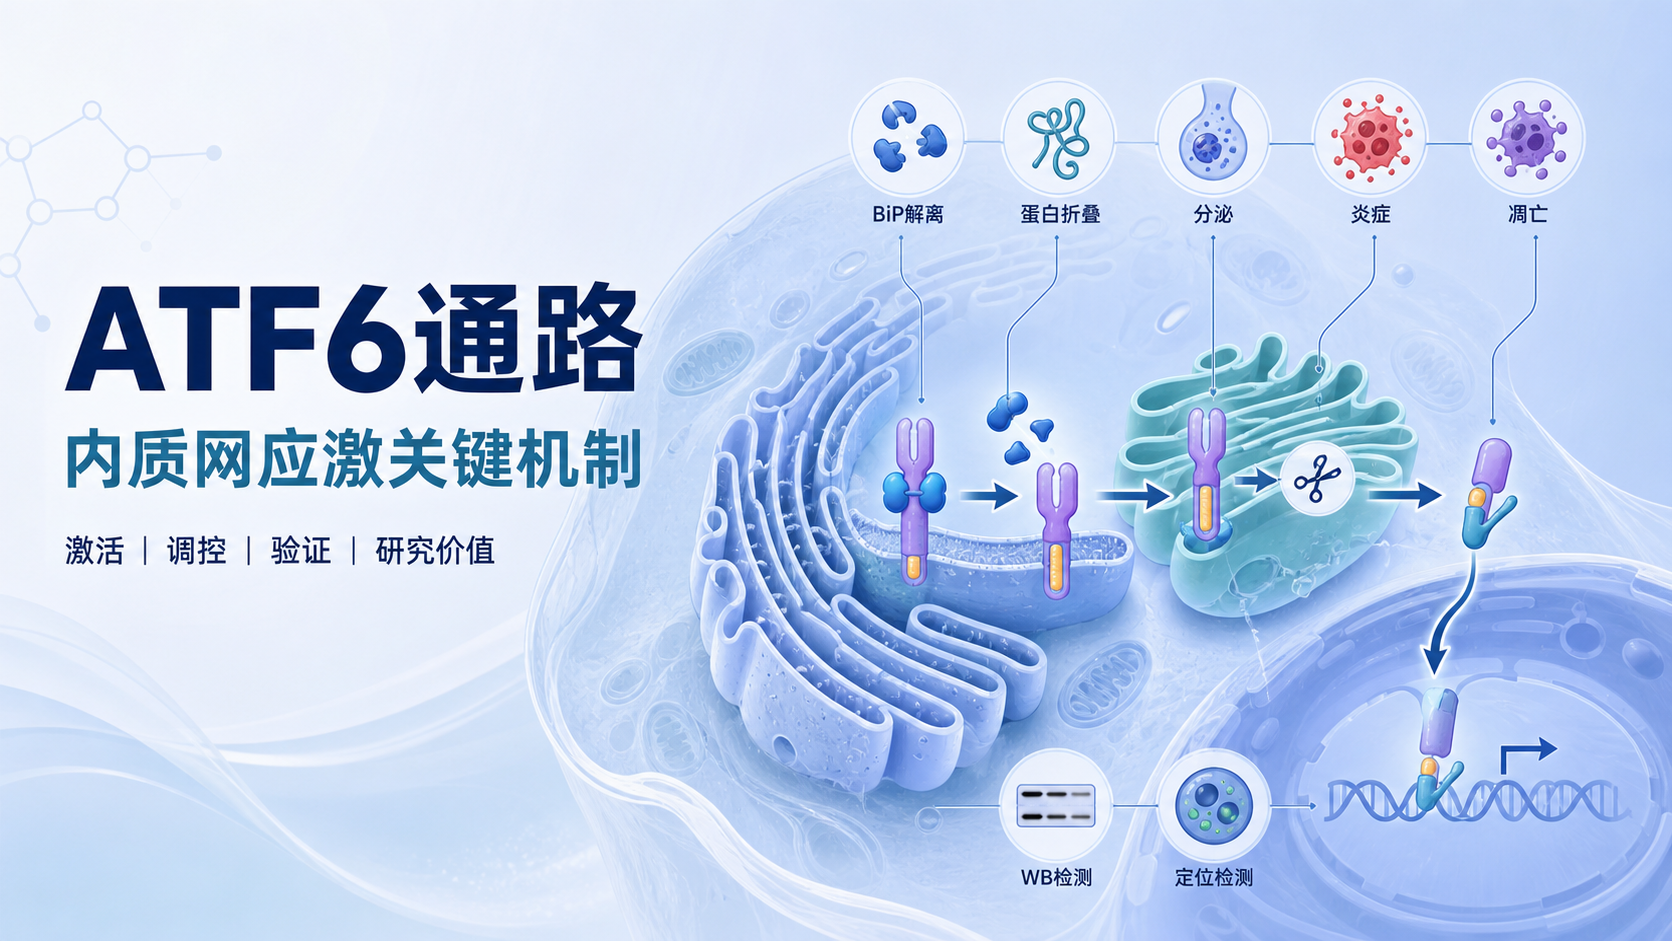
ATF6通路是内质网应激研究中的核心分支之一,但很多人只记住了“被激活”,却没理清它如何从膜蛋白变成核内转录因子。如果你正在做机制研究、课题设计或论文补实验,弄清ATF6通路的激活、切割和下游转录逻辑,会直接影响结果解释。
1. ATF6通路是什么
1.1 ATF6通路属于内质网应激的经典分支
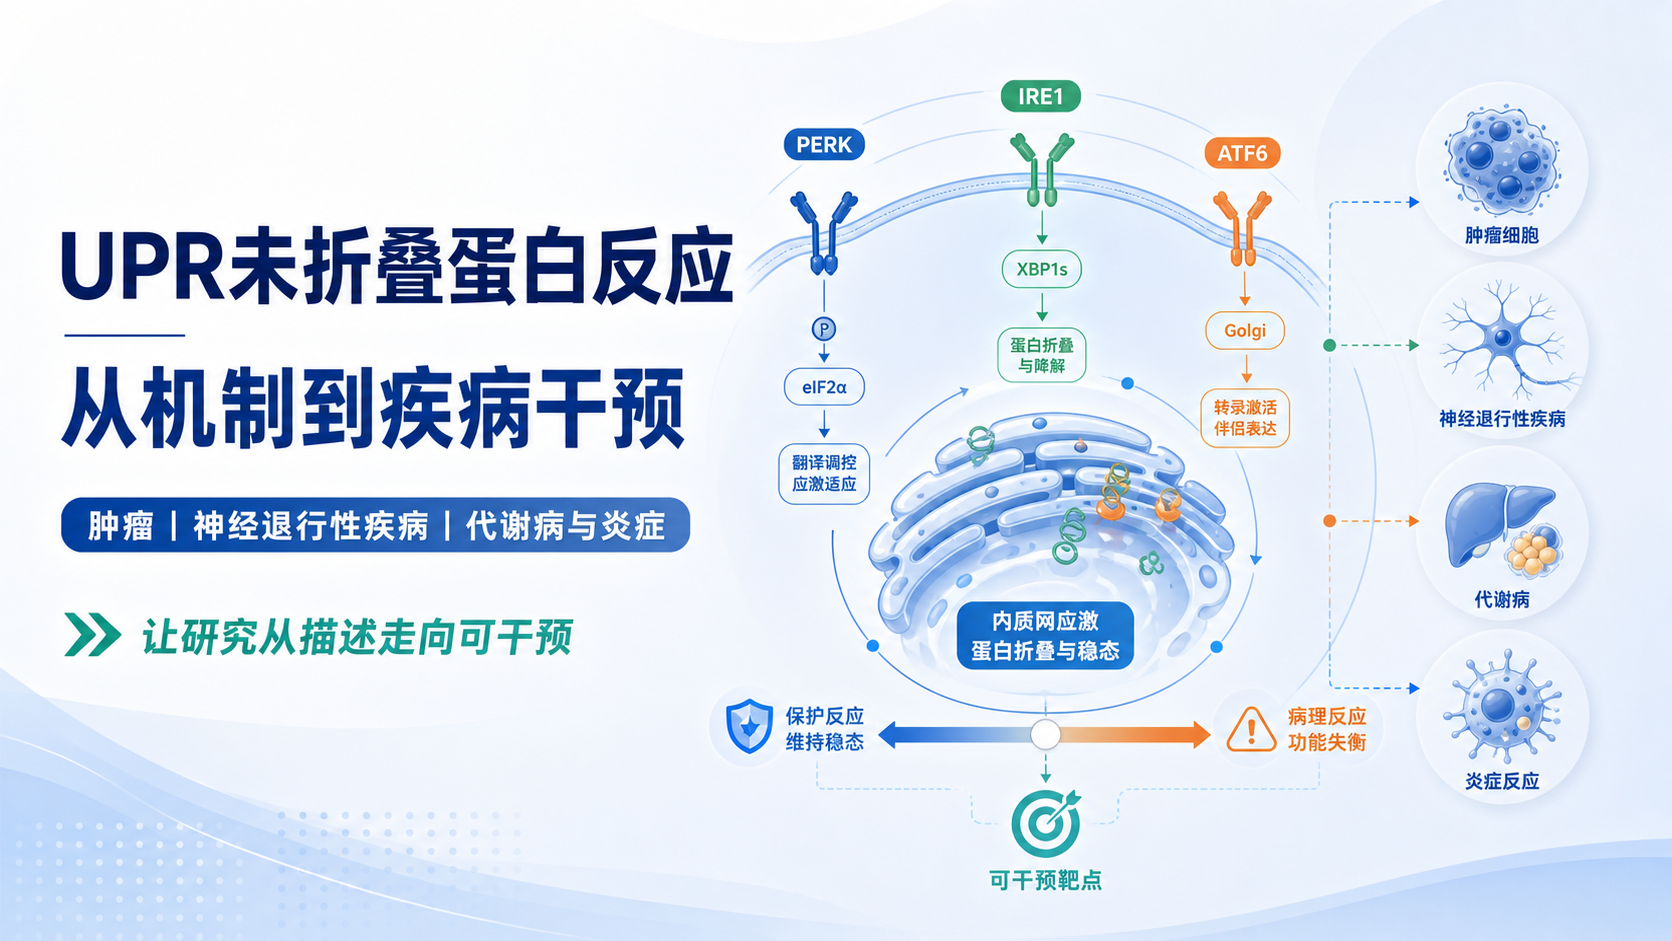
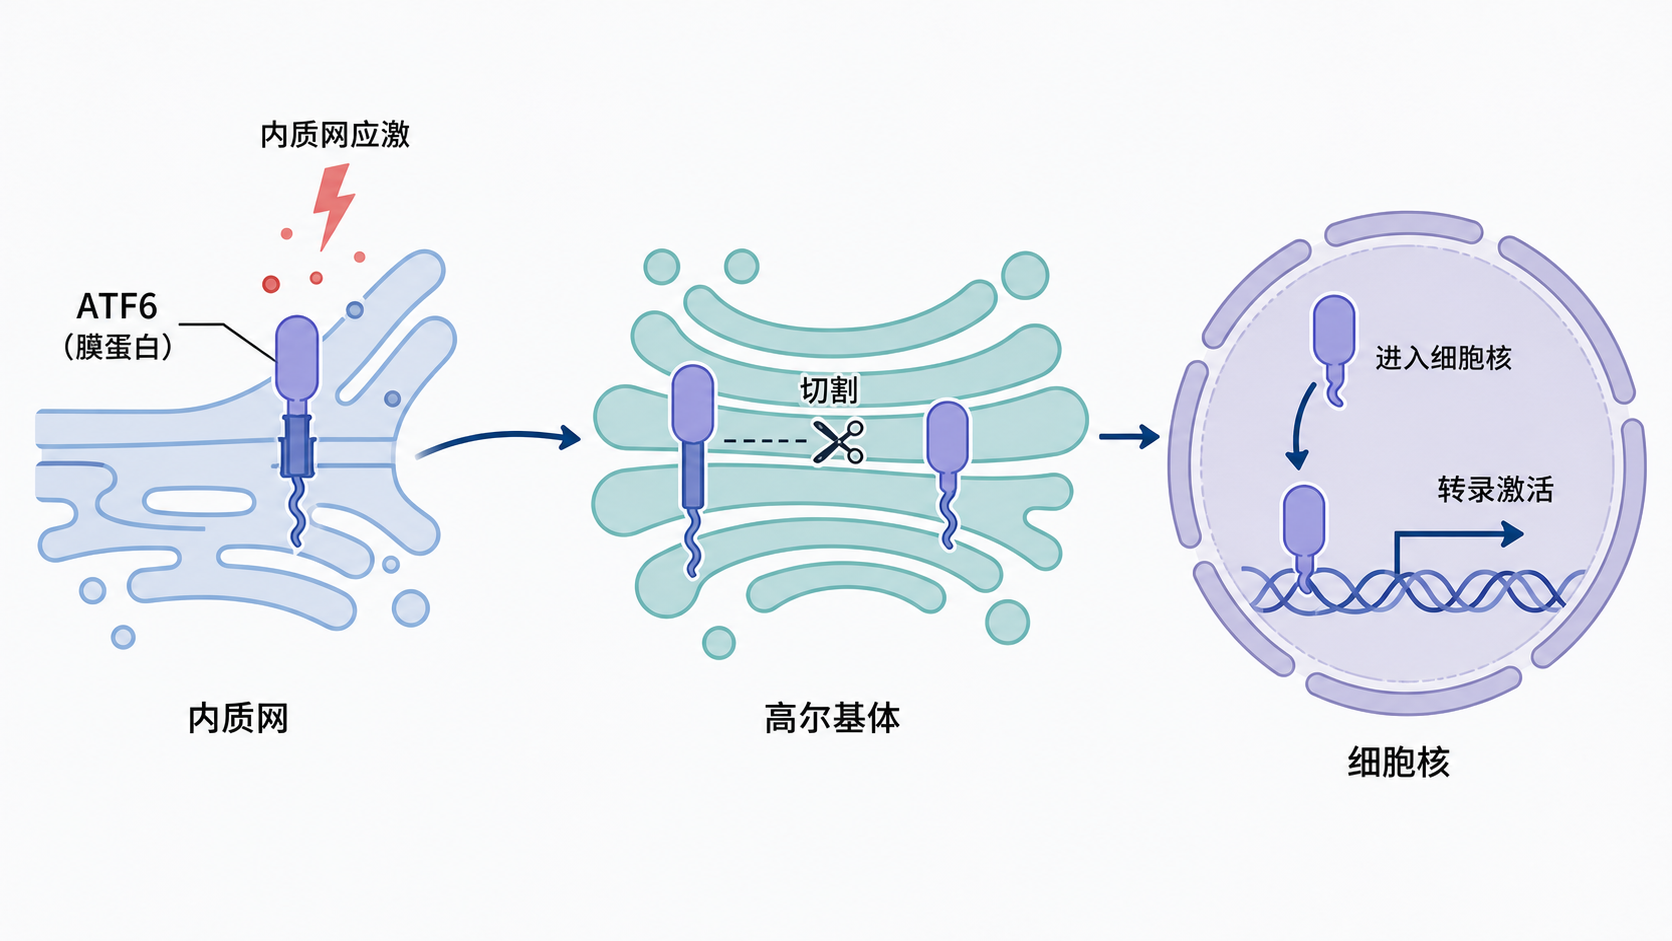
内质网应激发生时,细胞会启动未折叠蛋白反应,核心通路包括IRE1、PERK和ATF6。ATF6通路的特点,是它本身先以内质网膜上的前体形式存在,随后被转运到高尔基体再被激活。 这一点与IRE1和PERK的膜内信号转导方式不同。
从功能上看,ATF6通路更偏向转录调控。它进入细胞核后,驱动分子伴侣、蛋白折叠和质量控制相关基因表达上调。对于细胞来说,这是一次“补救反应”。目的是减轻错误折叠蛋白积累,恢复蛋白稳态。
1.2 ATF6通路的研究价值
在疾病研究中,ATF6通路并不只是“应激标志物”。它常常提示细胞处于持续蛋白毒性压力下。当内质网应激长期存在时,ATF6通路可能从保护性反应转向病理性重塑。 这也是它被视为潜在治疗靶点的原因。
在神经退行性疾病、代谢异常、肿瘤和炎症相关研究中,ATF6都可能参与病程调控。它的意义不在于单一分子变化,而在于它是否真正改变了蛋白合成、分泌负荷和细胞命运。
2. ATF6通路如何被激活
2.1 从BiP解离开始
正常情况下,ATF6以膜蛋白前体形式存在于内质网膜上。内质网稳态被打破后,错误折叠蛋白增多,伴侣蛋白BiP/GRP78优先结合这些异常蛋白,ATF6随之解离。ATF6从“静止状态”进入“可转运状态”,这是通路启动的第一步。
这一阶段的关键,不是ATF6立刻发挥转录作用,而是它先完成定位改变。也就是说,激活并不发生在内质网膜上,而是要进入下一站。
2.2 在高尔基体完成剪切
ATF6转运到高尔基体后,会被S1P和S2P两种蛋白酶依次剪切。剪切后释放出活性片段,常写作p50。这个片段才是真正的转录活性形式。前体p90到活性p50的转换,是ATF6通路最关键的结构性变化。
这一步非常重要。因为很多实验只检测ATF6总蛋白,容易漏掉“是否完成剪切”这一核心信息。对于机制文章来说,单纯总量变化不足以说明通路激活。更可靠的证据通常是活性片段增加,或核内定位增强。
3. ATF6通路下游调控什么
3.1 主要作用是提升折叠能力和分泌能力
进入细胞核后,ATF6会促进多类靶基因转录。典型方向包括分子伴侣、蛋白折叠酶、ERAD相关分子和部分分泌加工相关基因。它的核心作用,是增加内质网“处理错误蛋白”的能力。
这类基因上调后,细胞可以更有效地应对蛋白质合成压力。比如在高分泌负荷细胞中,ATF6通路可以帮助缓解蛋白堆积。对研究者来说,这提示ATF6并不是单纯的损伤标志,而是维持稳态的适应性调节器。
3.2 与凋亡和炎症也存在关联
ATF6不是只管“修复”。在持续应激下,它也可能参与细胞命运重编程。当应激无法缓解时,ATF6通路会与凋亡、炎症和其他UPR分支发生交叉。 这种交叉对疾病进展非常关键。
例如,在慢性代谢压力或肿瘤微环境中,ATF6可能与PERK-ATF4-CHOP轴共同影响存活与死亡平衡。此时,通路输出不再只是保护,而是决定细胞是否进入适应、衰竭或死亡。
4. ATF6通路实验怎么验证
4.1 只做WB不够,最好结合定位检测
验证ATF6通路,很多人第一反应是western blot。这个方法确实常用,但仅靠总蛋白WB,往往不能完整证明ATF6通路被激活。 因为真正的关键是前体到活性片段的转变,以及活性片段是否进入细胞核。
更稳妥的组合是:
- WB检测ATF6活性片段。
- 检测下游靶基因表达。
- 结合免疫荧光或免疫组化观察核定位。
- 必要时增加mRNA水平验证。
如果研究条件允许,定位实验很有价值。它能直接回答“ATF6是否真的从内质网到达细胞核”。
4.2 常见检测指标要成组判断
做机制研究时,建议不要只盯住一个分子。ATF6通路的判断更适合看成组指标。可重点关注:
- ATF6前体与剪切后活性片段
- BiP/GRP78
- ER应激相关伴侣蛋白
- 核内ATF6信号
- 部分下游靶基因转录变化
如果ATF6上调,但下游伴侣蛋白和核定位都没有变化,就不能轻易下结论。 这也是E-E-A-T要求下最重要的地方,证据链要闭环。
5. ATF6通路为什么值得继续研究
5.1 它是内质网应激中最容易被低估的靶点之一
相比IRE1和PERK,ATF6有时在文章中出现频率更低,但这不代表它不重要。相反,它的激活方式更直接,且和转录调控关系更紧密。对于需要解释“蛋白折叠异常如何被细胞主动纠正”的课题,ATF6通路很有优势。
尤其在需要区分“适应性反应”和“损伤性反应”的研究中,ATF6可以提供更清晰的机制切入点。它适合和蛋白稳态、分泌负荷、细胞器应激联动分析。
5.2 可与其他应激通路做交叉研究
ATF6通路并不是孤立存在的。它常与氧化应激、DNA损伤、炎症和线粒体应激产生交叉。这种cross talk正是现代机制研究的重要创新点。
如果你已经研究过UPR,不妨进一步思考:
- 是否存在双表型联动。
- 是否有共同上游刺激。
- 是否存在共享转录因子或伴侣蛋白。
- 是否能形成更完整的病理网络。
这类研究思路更适合做基金设计和高质量论文。
总结Conclusion
ATF6通路是内质网应激反应中非常关键的一条经典分支。它从BiP解离开始,经由高尔基体剪切,最终释放活性转录因子进入细胞核,调控蛋白折叠、分泌和应激适应。理解ATF6通路,不只是记住分子名称,而是要掌握“定位变化、剪切激活、核内转录”这条完整证据链。
如果你正在做相关课题,建议把ATF6与下游靶基因、核定位和其他UPR分支联合分析。需要更高效地梳理机制图、设计实验或优化文献表达时,可以关注解螺旋 ,帮助你把ATF6通路研究做得更清晰、更规范。

- 引言Introduction
- 1. ATF6通路是什么
- 2. ATF6通路如何被激活
- 3. ATF6通路下游调控什么
- 4. ATF6通路实验怎么验证
- 5. ATF6通路为什么值得继续研究
- 总结Conclusion