35
 分享
引言Introduction
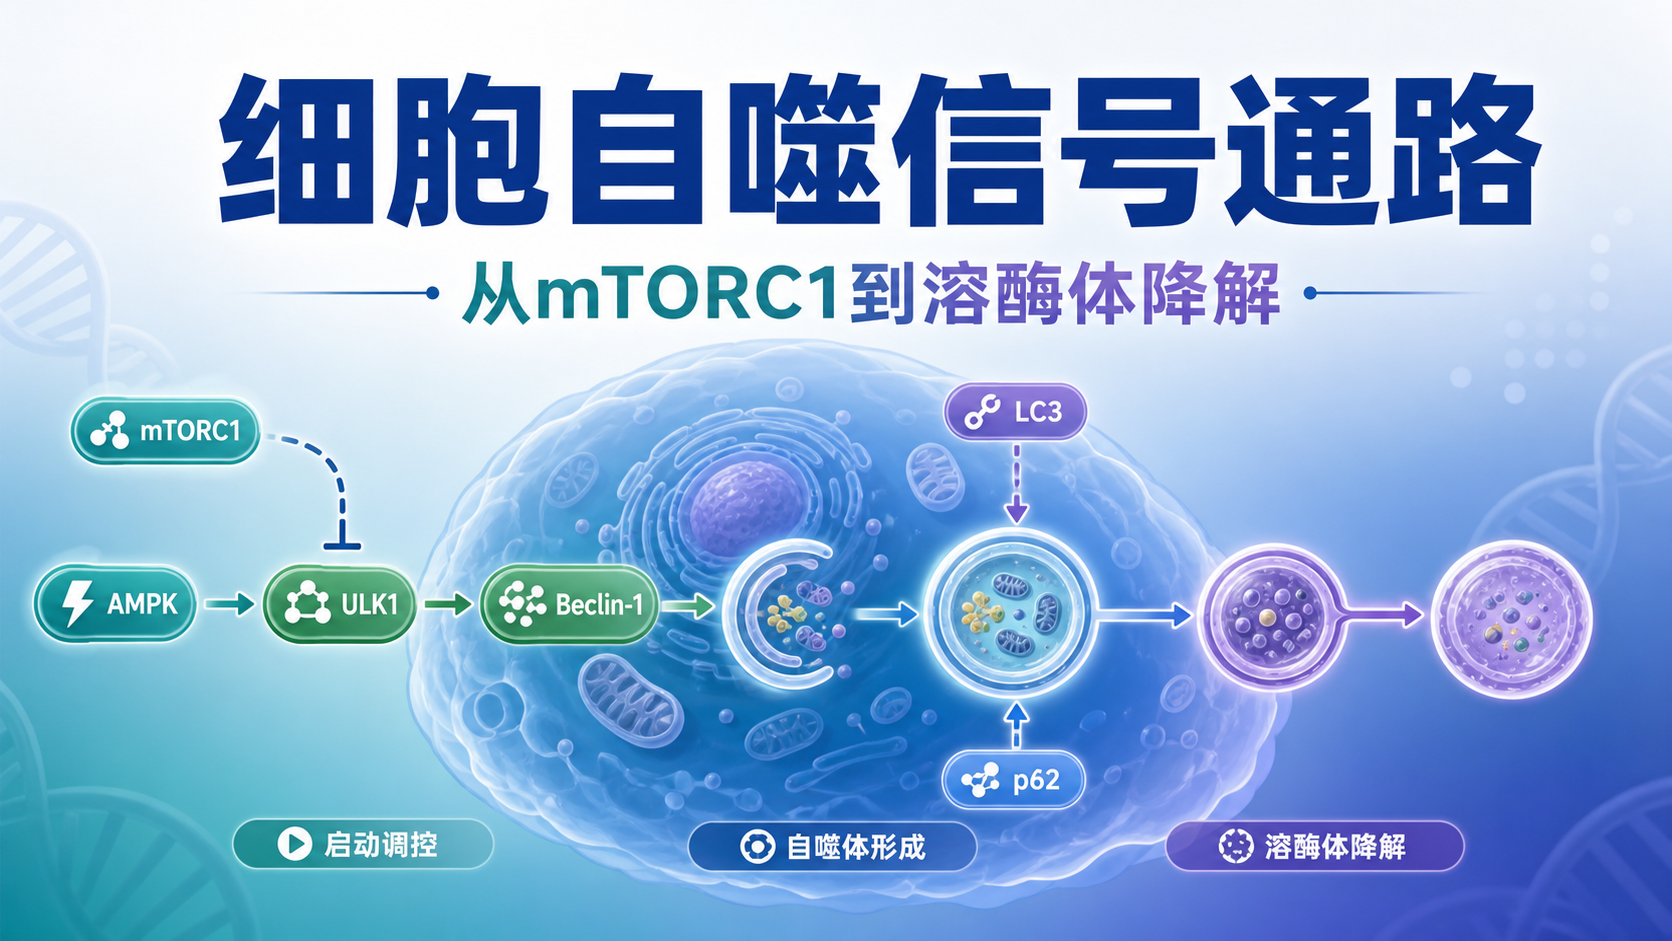
细胞自噬不是“简单清理垃圾”。它决定细胞在营养缺乏、缺氧和损伤时能否继续存活。对医学生、医生和科研人员来说,真正难点不在概念,而在于自噬流信号通路 如何被 mTOR、AMPK、ULK1 和 Beclin-1 精确调控。
1. 细胞自噬的核心概念与研究意义
1.1 自噬是什么
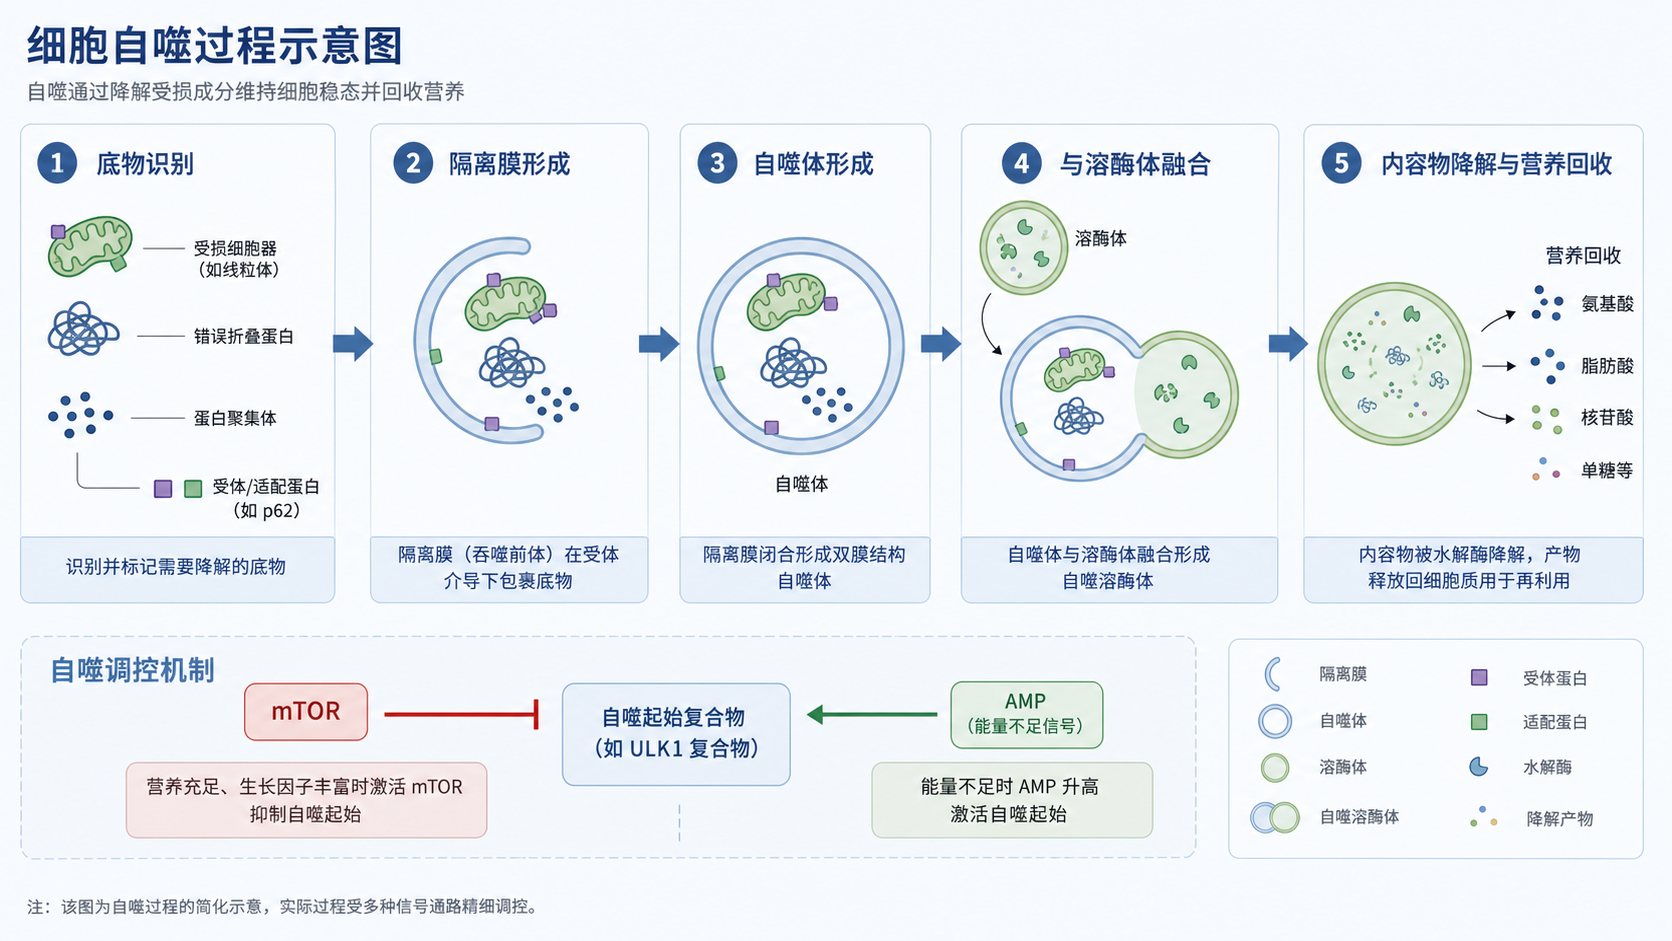
自噬是细胞内一种保守的降解与回收机制。它把受损细胞器、异常蛋白和多余胞质成分包裹进自噬体,再与溶酶体融合完成降解。最终产物如氨基酸、脂肪酸和核苷酸会被重新利用。
这意味着,自噬不是单纯的“清除”,而是能量再分配和稳态维持系统。 在饥饿、氧化应激、感染和肿瘤微环境中,这一过程尤其重要。
1.2 自噬为何重要
从疾病角度看,自噬具有双重属性。
一方面,它可帮助细胞应对压力,减少损伤积累。
另一方面,自噬异常增强或抑制,也会参与肿瘤、神经退行性疾病、代谢病和感染性疾病的发生发展。
研究上,自噬通路的价值在于它是一个可追踪、可干预、可量化的系统。常见读出包括 LC3-II 增加、p62/SQSTM1 降低,以及溶酶体融合效率变化。
1.3 自噬流的概念
很多研究只看“自噬体增多”,但这并不等于自噬增强。真正反映功能的是自噬流 ,即从自噬体生成到与溶酶体融合、再到底物降解的完整过程。
如果只检测 LC3 点状聚集,而不同时评估 p62 和溶酶体通量,就容易把“阻塞”误判为“激活”。 这也是科研设计中最常见的误区之一。
2. 自噬流信号通路的起始调控
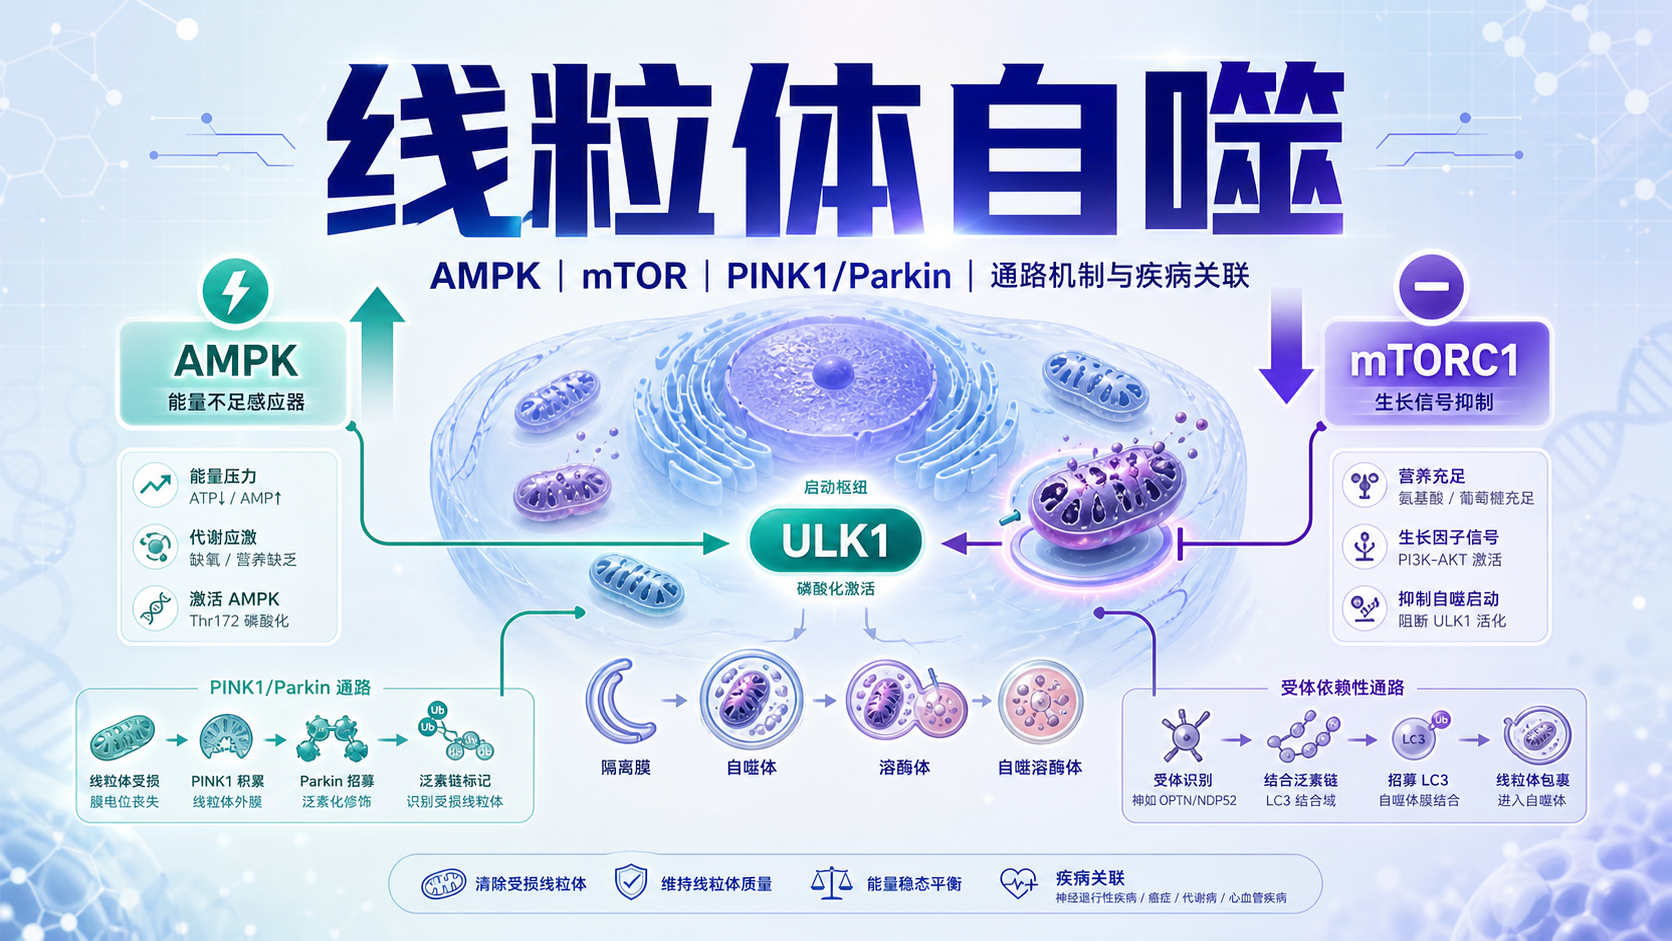
2.1 mTORC1是自噬的经典抑制开关
营养充足时,mTORC1保持活化状态,抑制 ULK1 复合物,从而阻止自噬启动。mTORC1 会磷酸化 ATG13 等下游组分,使起始复合体处于抑制状态。
当细胞处于氨基酸缺乏、葡萄糖不足或生长因子降低时,mTORC1 活性下降,自噬启动被解除。
简言之,mTORC1高,自噬低。mTORC1低,自噬易被激活。
2.2 AMPK通过能量感应促进自噬
AMPK 是细胞能量不足时的关键感应器。ATP下降、AMP/ATP比值升高时,AMPK被激活。它可通过两条路径促进自噬:
- 直接抑制 mTORC1。
- 直接或间接激活 ULK1 和 Beclin-1 相关复合物。
这一机制说明,自噬流信号通路本质上与能量稳态高度耦联。 当细胞“缺电”时,自噬被启动以回收资源。
2.3 PI3K/AKT/mTORC1与Ras/MAPK通路
class I PI3K/AKT 通路通常促进 mTORC1 活性,因此总体上抑制自噬。PTEN 通过拮抗 PI3K 信号,可间接促进自噬。
Ras/Raf/MEK/ERK 通路在多种肿瘤细胞中活跃,也可影响 mTORC1 和自噬水平。其具体效应依赖细胞类型、刺激强度和代谢背景。
因此,自噬调控不是单线性开关,而是多个信号网络的整合结果。
3. 自噬体形成的关键分子模块
3.1 ULK1复合物启动隔离膜形成
自噬起始依赖 ULK1、ATG13、FIP200 和 ATG101 组成的复合物。该复合物相当于“起跑器”,负责在适当条件下启动隔离膜形成。
在营养匮乏时,mTORC1抑制解除,ULK1被激活,随后进入下游装配阶段。它会把信号传递给 Beclin-1-Vps34 复合物,推动隔离膜扩展。
3.2 Beclin-1-Vps34复合物是核心执行单元
Beclin-1 是自噬研究中的核心分子。它与 Vps34 形成 III 类 PI3K 复合物,负责生成 PI3P,促进自噬泡膜的募集与成熟。
Beclin-1是否活跃,直接影响自噬能否顺利推进。
如果它与 Bcl-2 或 Bcl-XL 结合,自噬促进活性会下降。
如果与 UVRAG、Ambra1 等因子协同,则更有利于自噬推进。
3.3 Atg12-Atg5和LC3-II决定膜延伸
自噬体形成后,需要持续的膜延伸与闭合。Atg12 通过类泛素化反应与 Atg5 结合,并与 Atg16 形成复合物,参与膜延伸定位。
与此同时,LC3 先被 Atg4 裂解形成 LC3-I,再在 Atg7 和 Atg3 参与下脂质化为 LC3-II,锚定到自噬膜上。
LC3-II 是自噬体膜的重要标志,但它更适合用于“自噬流”分析,而不是单独判断自噬强弱。
4. Beclin-1信号通路的调控因子全览
4.1 抑制因子:Bcl-2家族与Rubicon
Beclin-1 的 BH3 结构域可与 Bcl-2、Bcl-XL 结合,从而抑制其促自噬功能。这也是自噬与凋亡交叉调控的重要节点。
Rubicon 则通常被视为自噬负调节因子。它可抑制 Vps34 激酶活性,阻碍自噬体成熟和后续通量。
4.2 促进因子:UVRAG与Ambra1
UVRAG 可增强 Beclin-1-Vps34 复合物活性,促进自噬进程。Ambra1 也能增强该复合物功能,帮助自噬体形成和成熟。
这些调控因子说明,Beclin-1不是孤立工作的单分子,而是一个平台型调控中心。
4.3 磷酸化修饰决定Beclin-1活性
Beclin-1 的功能还受磷酸化控制。Akt、ERK1/2 等可削弱其与 Vps34 的结合,抑制自噬。AMPK 和 ULK1 则可增强相关相互作用,促进自噬。
这类修饰体现了自噬调控的动态性。它不是“开或关”这么简单,而是随细胞状态实时调整。
5. 自噬流信号通路与溶酶体阶段
5.1 自噬体成熟与运输
隔离膜闭合后形成成熟自噬体。接下来,自噬体需要沿微管系统向溶酶体转运,并与溶酶体膜融合。
这个阶段决定了自噬流是否真正完成。若融合受阻,细胞内会出现 LC3 阳性囊泡积累,但降解并未发生。
5.2 溶酶体融合与底物降解
自噬体与溶酶体融合后,内部底物被酸性水解酶降解。随后产生的小分子再次进入代谢循环,维持细胞能量和物质平衡。
所以,自噬流的终点不是“形成更多自噬体”,而是“完成降解并回收”。 这一点在药物筛选和机制验证中尤其关键。
5.3 如何判断自噬流是否通畅
科研中常用的评估思路包括:
- LC3-II 是否增加。
- p62/SQSTM1 是否下降。
- 溶酶体抑制剂存在时,LC3-II 是否进一步积累。
- 自噬体与溶酶体共定位是否增强。
单一指标没有足够说服力。 只有结合多指标,才能判断是“诱导增强”还是“降解阻塞”。
6. 研究与应用中的常见误区
6.1 只看LC3,不看p62
这是最常见错误。LC3点状增多既可能是自噬增强,也可能是自噬流阻断。p62 作为底物蛋白,更能反映降解是否发生。
6.2 把自噬等同于细胞死亡
自噬通常首先是一种生存机制。只有在持续过强、与其他死亡通路交织时,才可能参与细胞死亡过程。
6.3 忽视细胞类型差异
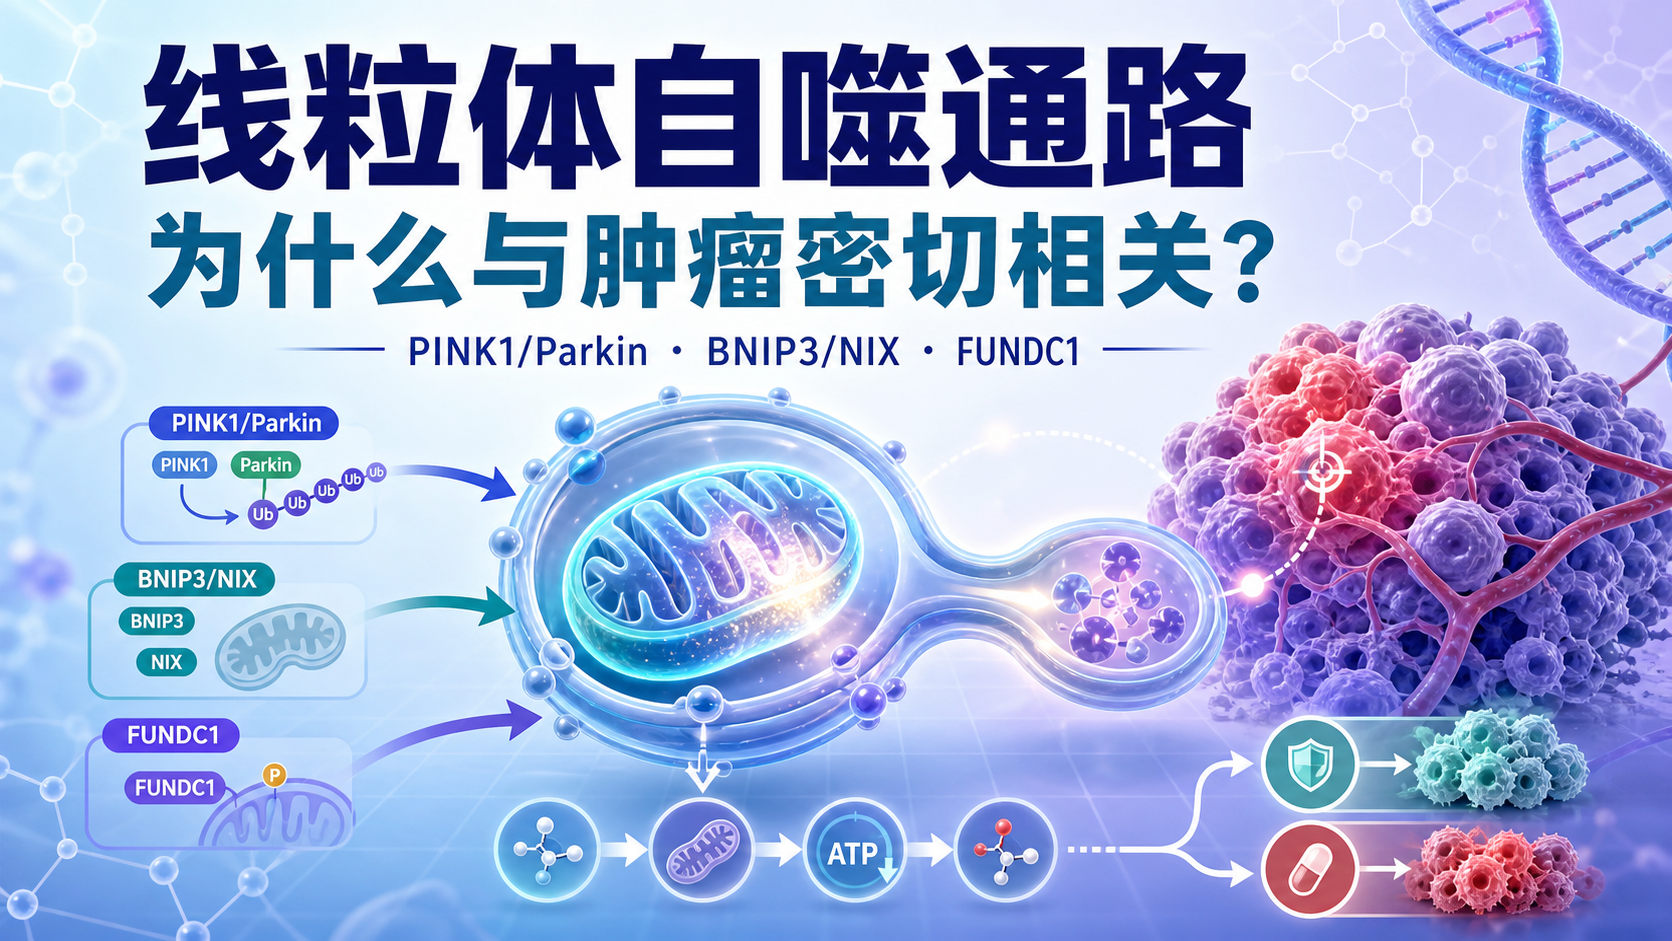
同一通路在不同组织、不同刺激和不同疾病模型中,可能产生相反结果。尤其在肿瘤研究中,自噬既可能抑癌,也可能帮助肿瘤细胞耐受应激。
7. 面向实验设计的实用建议
7.1 机制研究建议
如果你正在做自噬相关课题,建议至少从三层验证:
- 上游信号。检测 mTOR、AMPK、ULK1。
- 核心模块。检测 Beclin-1、Vps34、LC3、p62。
- 功能读出。做溶酶体融合和通量实验。
7.2 图像与数据联用
免疫荧光适合看 LC3 puncta 和共定位。Western blot 适合看 LC3-II 与 p62。再结合抑制剂或激动剂,结论会更稳健。
7.3 借助专业资源提升效率
对于需要快速搭建自噬通路图、整理机制框架或生成教学示意图的研究者,解螺旋 可以帮助你更高效地完成内容整合、机制梳理和学术表达。对医学生、医生和科研人员来说,这能明显减少重复检索时间,把精力集中到实验设计和结果解释上。
总结Conclusion
细胞自噬是一个从起始、膜延伸、封闭、融合到降解回收的完整动态过程。其核心调控轴包括 mTORC1、AMPK、ULK1 和 Beclin-1-Vps34 复合物,调控因子则涵盖 Bcl-2、UVRAG、Ambra1、Rubicon 等。真正理解自噬,关键在于理解自噬流,而不是只看自噬体数量。
如果你希望进一步提升课题设计、机制图整理或论文表达效率,可以关注并使用解螺旋 ,让复杂的自噬机制更快转化为可发表、可教学、可落地的科研内容。

- 引言Introduction
- 1. 细胞自噬的核心概念与研究意义
- 2. 自噬流信号通路的起始调控
- 3. 自噬体形成的关键分子模块
- 4. Beclin-1信号通路的调控因子全览
- 5. 自噬流信号通路与溶酶体阶段
- 6. 研究与应用中的常见误区
- 7. 面向实验设计的实用建议
- 总结Conclusion