52
 分享
引言Introduction
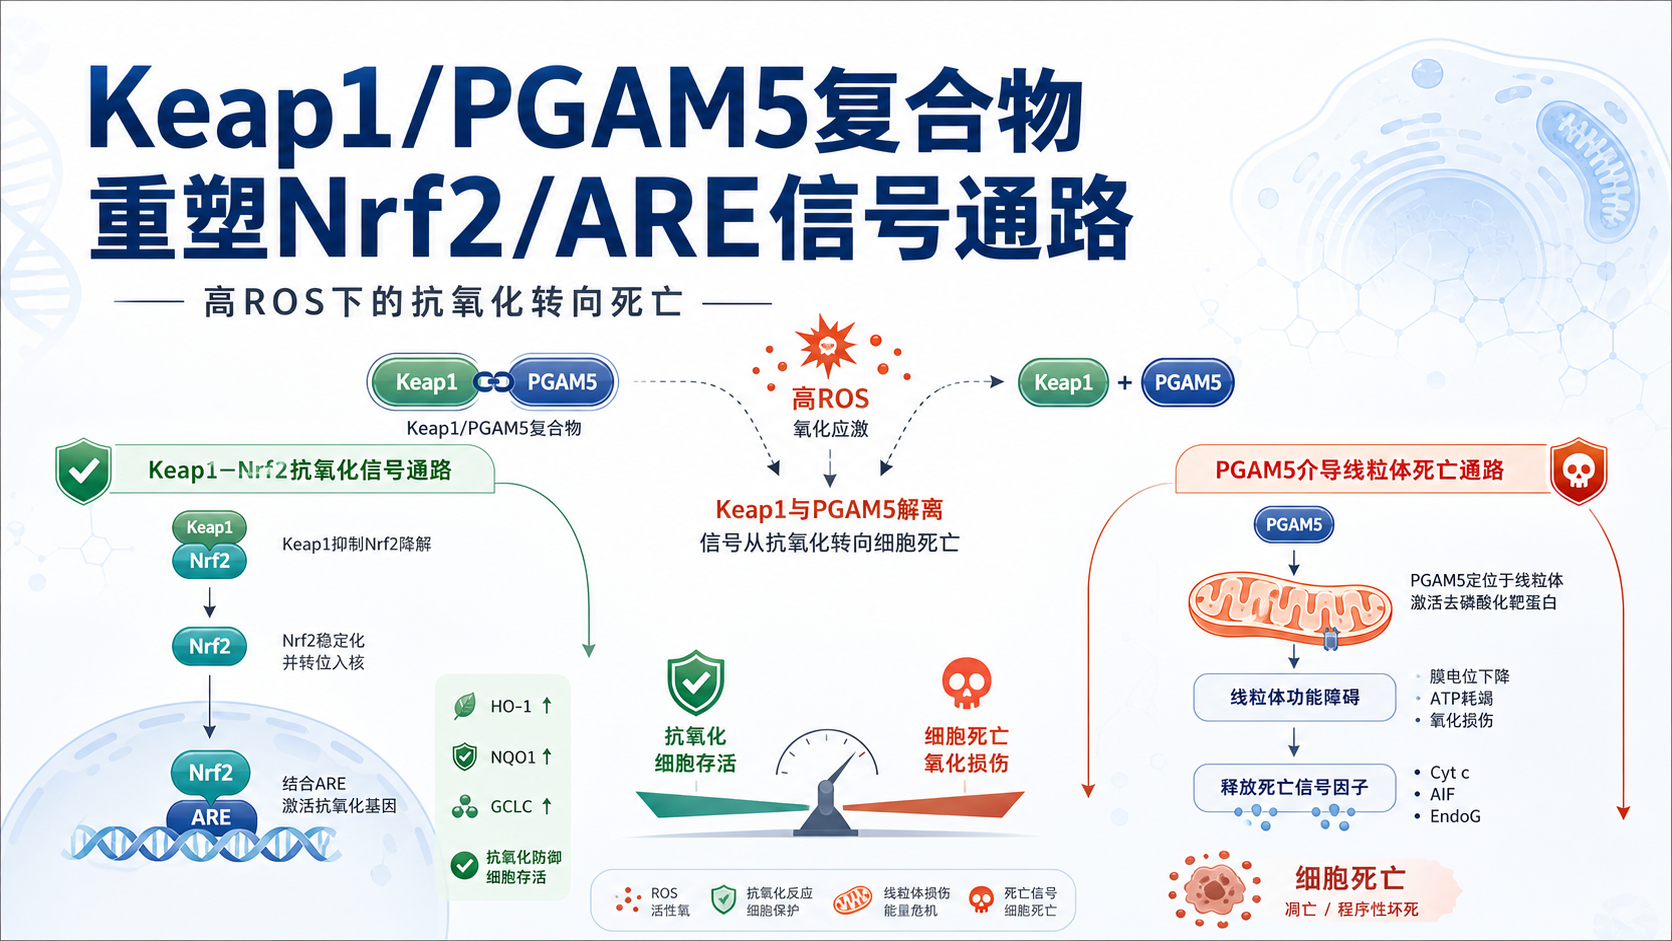
氧化应激研究里,Nrf2/ARE信号通路一直是热点。但很多人只盯着Keap1和Nrf2,忽略了PGAM5这条“后门”通路。当ROS持续升高时,细胞不只是启动抗氧化防御,还可能转向程序性死亡。 理解这一切,对机制研究、药物筛选和疾病模型都很关键。
1. Keap1/PGAM5复合物为何值得关注
1.1 传统认知中的Keap1-Nrf2轴
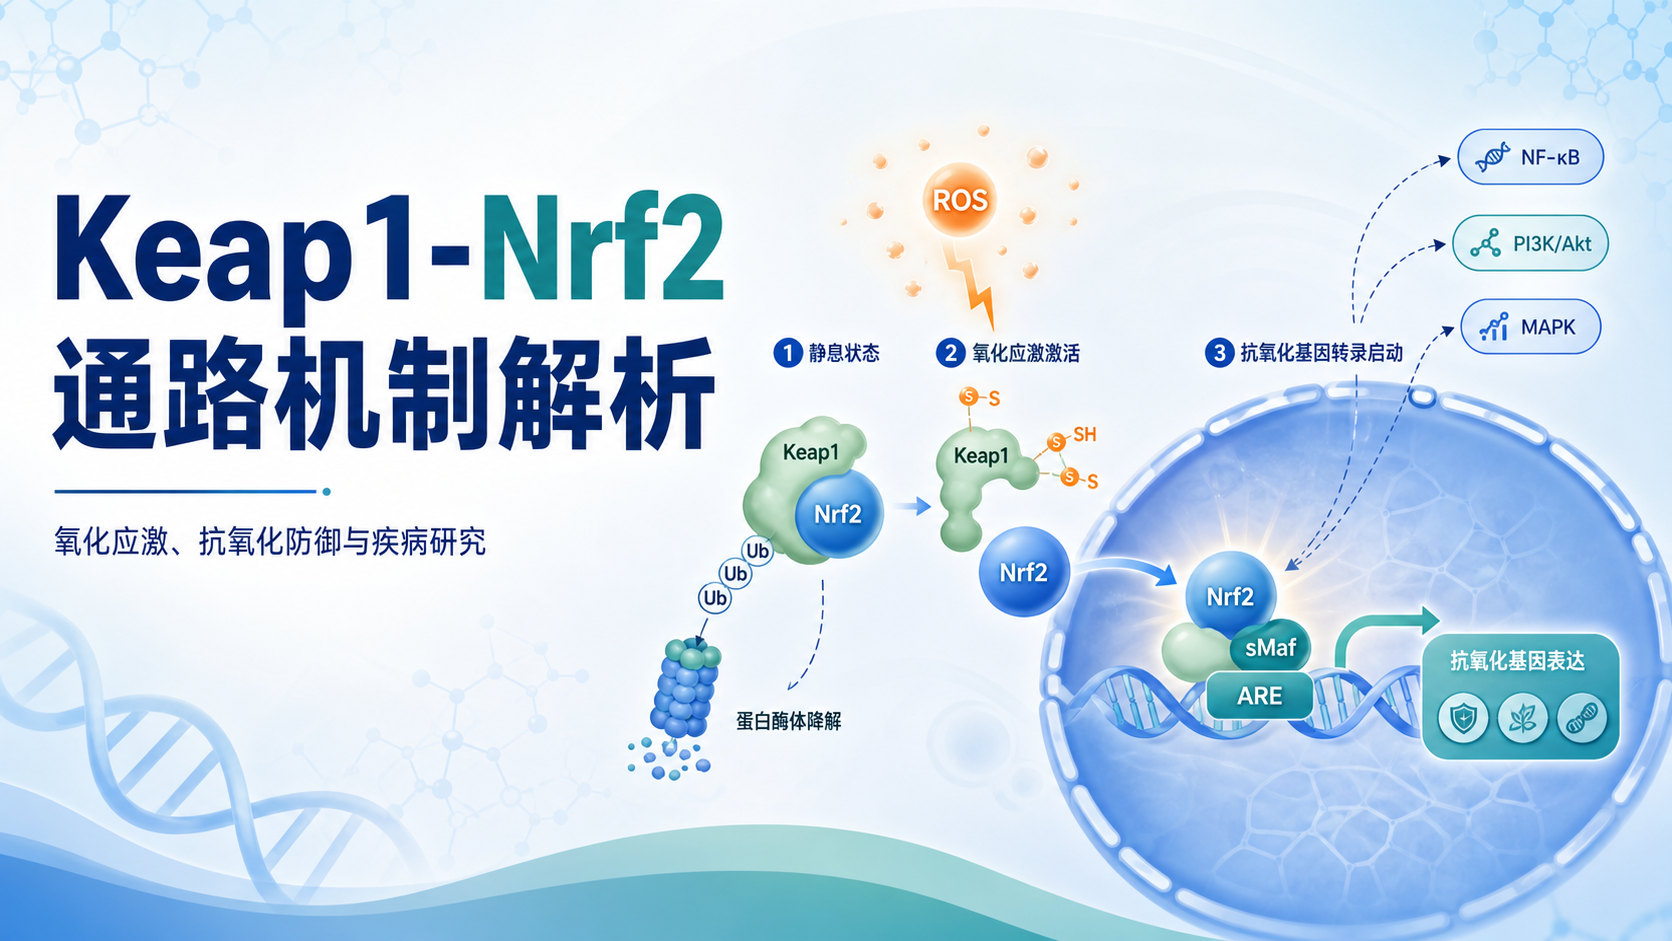
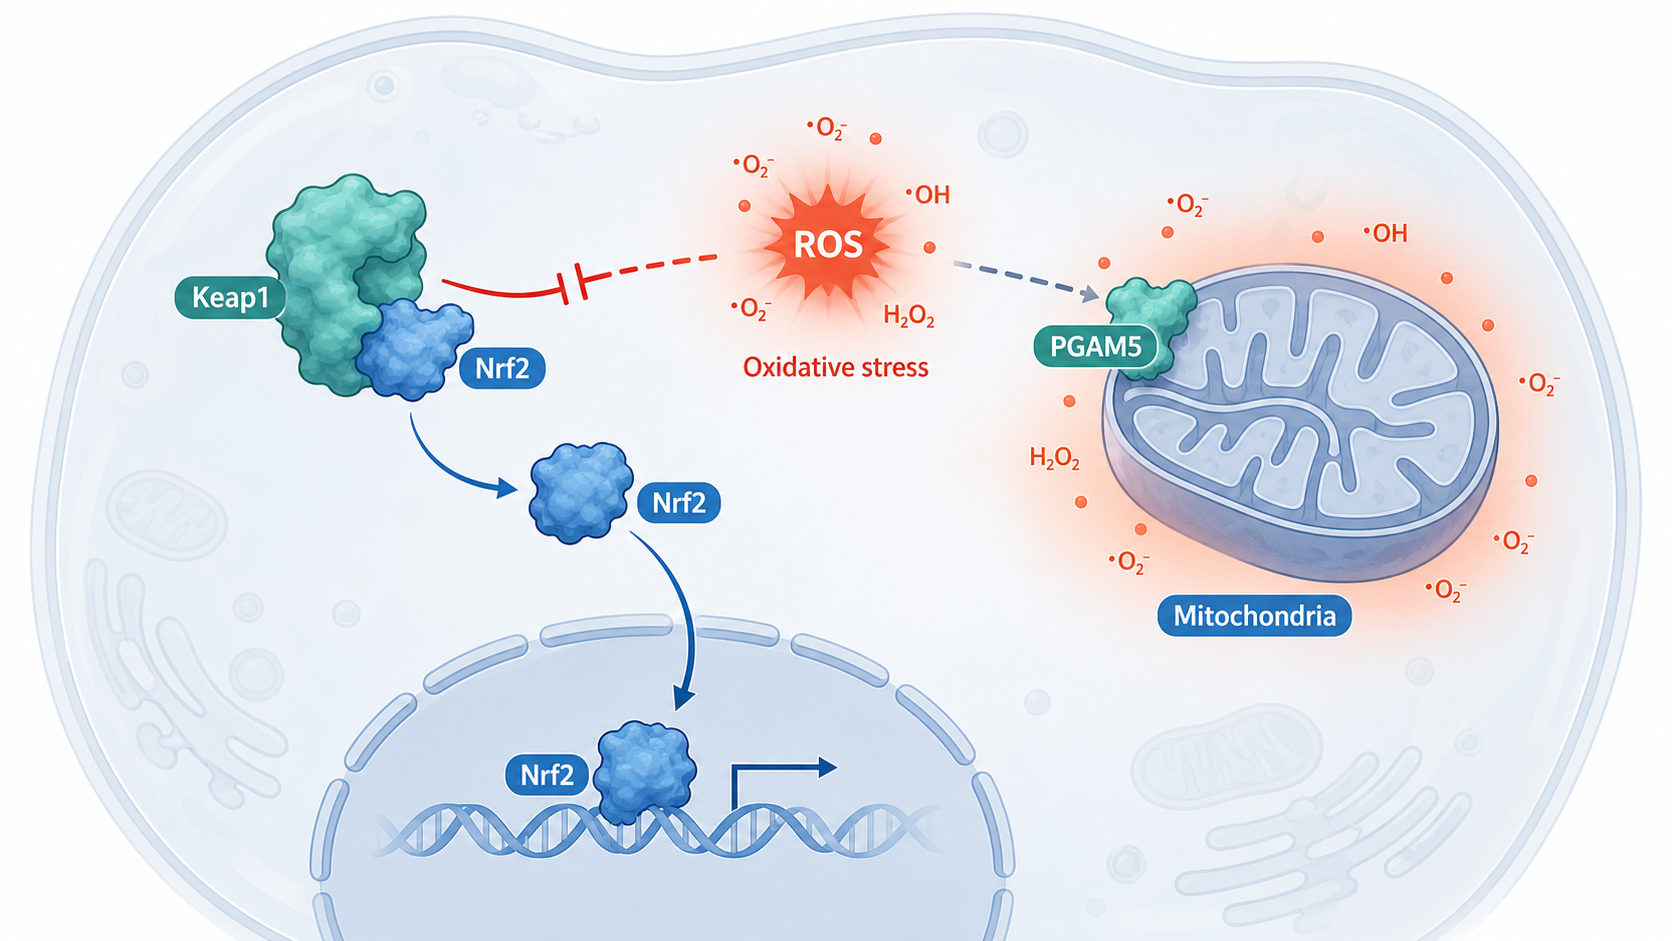
在经典模型中,静息状态下,Nrf2与Keap1结合,形成复合体。Keap1作为底物适配蛋白,连接Cul3/Rbx1泛素连接酶复合体,促进Nrf2泛素化并降解。这决定了Nrf2/ARE信号通路平时处于低活性状态。
当细胞遭遇氧化应激,Keap1上的半胱氨酸残基可被ROS修饰,构象改变后,Nrf2不再被持续降解。随后,Nrf2稳定累积并进入细胞核,与小Maf蛋白形成异二聚体,结合ARE元件,启动HO-1、NQO1、GPx、SOD等抗氧化基因表达。
这一过程是细胞对中等程度氧化应激的典型应答。它帮助细胞清除ROS,维持氧化还原稳态。
1.2 为什么PGAM5的加入改变了问题
新的认识在于,在高水平ROS条件下,Keap1不仅参与Nrf2调控,还可与PGAM5形成复合物。 这提示细胞的应激结局并非只有“抗氧化”一种方向。
PGAM5本身是一种磷酸酶,定位和功能与线粒体稳态密切相关。研究思路上,它把Keap1从单纯的Nrf2抑制因子,扩展为高应激状态下的死亡信号调节节点。也就是说,ROS并不是简单把Nrf2打开,而是可能把信号导向另一条结局路径。
这类机制对肿瘤、缺血再灌注损伤、神经退行性疾病等研究都很重要。 因为这些疾病的共同特征之一,就是ROS累积与线粒体损伤并存。
2. 高ROS条件下,信号如何从抗氧化转向死亡
2.1 Keap1与PGAM5的解离是关键转折点
在高ROS环境下,Keap1-PGAM5复合物会发生解离。这个变化并不是简单的蛋白分开,而是意味着细胞应激响应的方向发生切换。如果ROS强度足够高,细胞可能不再优先选择恢复稳态,而是启动死亡程序。
这一点非常符合生物学逻辑。因为当氧化损伤超过修复阈值时,继续维持受损细胞反而会增加组织风险。此时,细胞倾向于执行自我清除。
2.2 PGAM5如何连接线粒体死亡通路
复合物解离后,PGAM5可进入线粒体相关过程,发挥去磷酸化作用。文献知识库中提到,PGAM5可介导AIFM1去磷酸化,进而推动下游氧化性细胞死亡相关事件。
这意味着,Keap1/PGAM5复合物的变化,是Nrf2/ARE信号通路之外的另一层调控。 它并不否定Nrf2/ARE通路的重要性,而是说明在极端氧化压力下,细胞命运可能由“防御”转向“清除”。
从研究设计角度看,这一模型有两个价值:
- 可以解释为什么某些高ROS模型中,Nrf2上调并不能完全阻止细胞死亡。
- 可以提示新的干预靶点,不只关注Nrf2本身,还要关注Keap1-PGAM5及线粒体相关节点。
3. 这一发现如何重塑Nrf2/ARE信号通路研究
3.1 让我们重新理解“激活Nrf2”这件事
过去很多实验把Nrf2激活简单等同于保护效应。实际上,Nrf2/ARE信号通路的生物学结果取决于ROS强度、持续时间和细胞背景。
在低到中度氧化应激下,Nrf2核转位后可提升抗氧化酶表达,减轻损伤。但在高ROS场景中,Keap1相关网络可能把细胞推向死亡结局。也就是说,Nrf2/ARE信号通路不是固定的“保护开关”,而是一个受环境制约的动态系统。
对于医学生和科研人员来说,这一点非常关键。它决定了你在做细胞模型时,不能只看Nrf2蛋白表达升高,还要结合:
- ROS水平
- 线粒体膜电位
- AIFM1等死亡相关分子
- HO-1、NQO1等下游靶基因
- 细胞存活率和凋亡/坏死表型
3.2 与其他通路的交叉调控也不容忽视
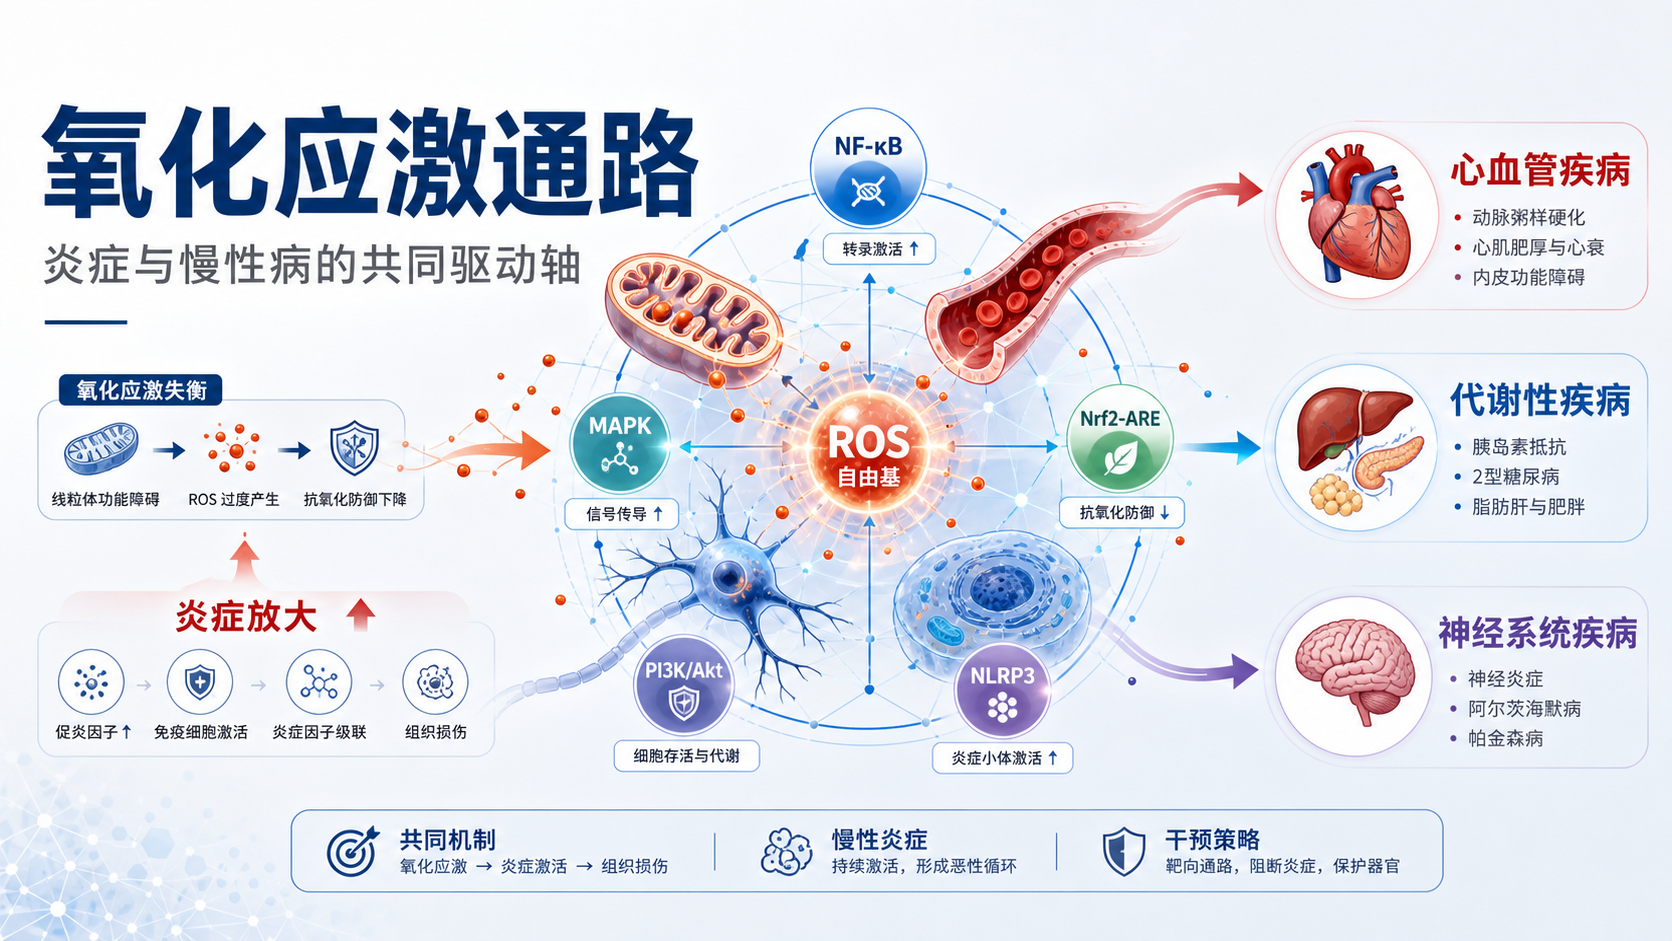
Nrf2/ARE信号通路与NF-κB、PI3K/Akt、MAPK等通路存在交叉。这种交叉决定了氧化应激下的炎症、代谢和死亡结局。
例如:
- Nrf2激活后,可抑制NF-κB活性,减轻炎症反应。
- Akt激活后,可促进Nrf2从Keap1中解离。
- ERK、JNK、p38等MAPK成员,也可参与Nrf2调控。
因此,Keap1/PGAM5复合物新发现的意义,不只是增加了一个蛋白互作关系,而是把氧化应激研究从单一路径,推进到多通路协同和结局分化的层面。
4. 实验研究中应如何验证这一路径
4.1 建议关注的检测指标
如果你正在设计相关课题,建议从“表达、定位、功能”三层验证。常用指标包括:
- Nrf2、Keap1、PGAM5蛋白表达
- Nrf2核转位
- HO-1、NQO1、GPx、SOD表达
- ROS水平
- 线粒体相关损伤指标
- 细胞死亡相关分子,如AIFM1变化
这些指标能帮助区分细胞到底是进入了抗氧化修复,还是进入了高ROS诱导的死亡程序。
4.2 常见实验思路
可采用以下实验路径:
- 构建氧化应激模型,如H2O2处理或缺血再灌注相关模型。
- 检测Keap1、Nrf2、PGAM5及下游靶基因变化。
- 结合免疫共沉淀观察Keap1与PGAM5的复合情况。
- 分析Nrf2核转位和ARE靶基因转录水平。
- 再结合细胞死亡表型,判断通路最终结局。
真正有价值的结果,不是单点升高,而是把“分子变化”和“细胞结局”连起来。
4.3 研究解释要避免的误区
需要注意两点:
- 不能把Nrf2升高直接等同于保护成功。
- 不能只看单一时间点。高ROS模型常有明显时序变化,早期是防御,后期可能是死亡。
因此,时间梯度设计非常重要。建议至少设置多个时间点,观察Keap1、PGAM5、Nrf2核转位和ROS变化的动态关系。
5. 对疾病研究与转化的启示
5.1 在肿瘤和损伤性疾病中的意义
在肿瘤研究中,Nrf2/ARE信号通路常与耐药、抗凋亡和代谢重编程有关。但在某些情况下,诱导高ROS负荷反而可能突破细胞防御阈值,推动死亡通路。Keap1/PGAM5复合物可能成为判断细胞命运转换的关键节点。
在缺血再灌注损伤、神经退行性疾病和炎症相关损伤中,情况也类似。ROS不是越高越好,也不是越低越好。关键是控制在细胞可修复范围内。
5.2 对药物开发的现实价值
从药物研发角度看,这一发现提示两个方向:
- 促进Nrf2/ARE信号通路的适度激活,用于抗氧化和抗炎。
- 干预Keap1/PGAM5相关过程,阻断高ROS诱导的线粒体死亡链条。
这类双层调控思路,比单纯“激活Nrf2”更精细,也更符合真实病理环境。
如果你正在做课题设计、机制图绘制或文献综述整合,建议借助解螺旋的专业支持,快速梳理Nrf2/ARE信号通路、Keap1/PGAM5轴以及相关检测方案,减少文献筛选和机制整合成本。
总结Conclusion
Keap1/PGAM5复合物的新发现,拓展了我们对Nrf2/ARE信号通路的理解。它说明,细胞对氧化应激的应答并非只有“激活抗氧化”一种结局,极端ROS条件下还可能切换到线粒体相关死亡程序。 对于基础研究、疾病机制和药物开发,这一变化都具有明确价值。若你希望更高效地整理通路机制、构建实验思路或输出高质量课题材料,建议进一步关注解螺旋。
- 引言Introduction
- 1. Keap1/PGAM5复合物为何值得关注
- 2. 高ROS条件下,信号如何从抗氧化转向死亡
- 3. 这一发现如何重塑Nrf2/ARE信号通路研究
- 4. 实验研究中应如何验证这一路径
- 5. 对疾病研究与转化的启示
- 总结Conclusion