34
 分享
引言Introduction
脂质过氧化不是单纯的“氧化损伤”。它往往是细胞代谢失衡、炎症放大和死亡程序启动的交汇点。理解活性氧通路,才能看清它如何把代谢变化转化为病理表型。
1. 脂质过氧化为何是活性氧通路的核心结果
1.1 ROS并不只是在“升高”
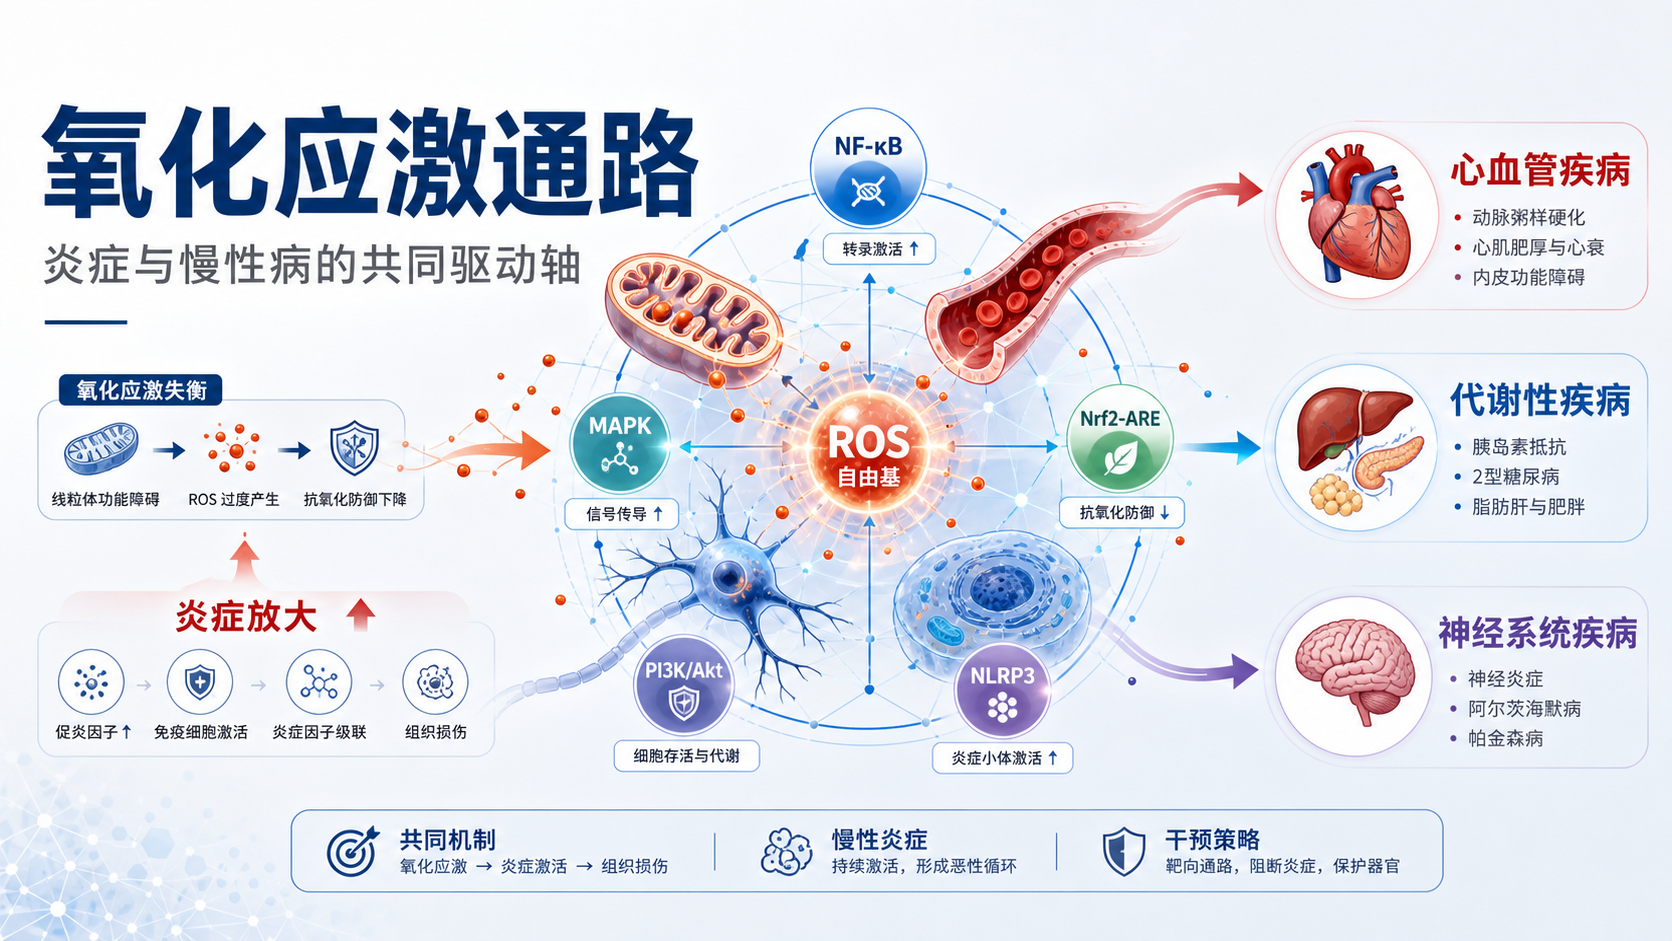
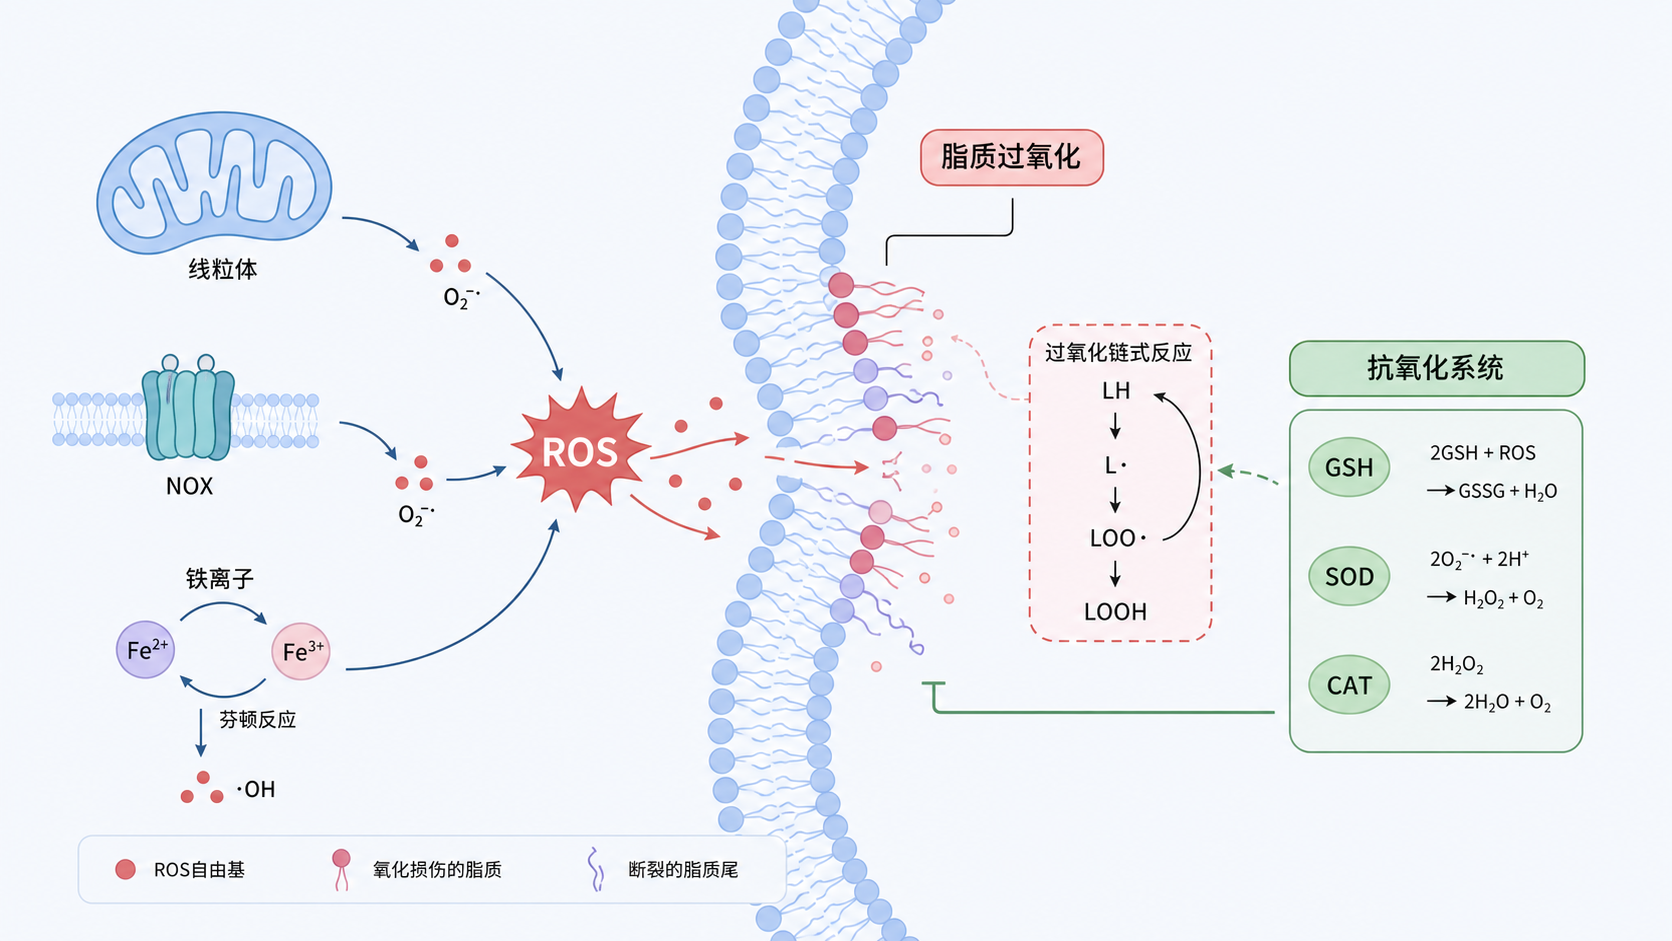
活性氧通路的本质,是细胞内氧化还原平衡被打破。ROS来源很多,常见包括NADPH氧化酶NOX、线粒体电子传递链泄漏,以及铁离子参与的Fenton反应。它们共同推动超氧阴离子、过氧化氢和羟基自由基生成。
这些ROS一旦累积,就会优先攻击膜脂中的多不饱和脂肪酸。 这一步不是孤立事件,而是连锁反应的起点。脂质被氧化后,会生成脂质自由基和脂质过氧化物,进一步扩增损伤。
1.2 为什么膜脂最容易成为靶点
细胞膜富含磷脂,尤其是含多不饱和脂肪酸的膜结构,对ROS非常敏感。与蛋白或DNA损伤不同,脂质过氧化会直接影响膜流动性、通透性和膜蛋白功能。
一旦膜结构受损,细胞会出现:
- 离子稳态紊乱。
- 线粒体膜电位下降。
- 膜受体信号异常。
- 最终诱发炎症、凋亡或铁死亡相关过程。
因此,脂质过氧化是活性氧通路从“代谢异常”走向“细胞表型改变”的关键枢纽。
2. 活性氧通路如何驱动脂质过氧化
2.1 NOX与炎症信号放大
NOX家族位于细胞膜或膜相关结构上,能够把氧分子还原为超氧阴离子。这个过程在免疫细胞激活、炎症微环境和肿瘤代谢重编程中都很常见。
生成的ROS可进一步激活PKC、MAPK等信号分子,形成放大回路。这意味着活性氧通路不是“终点”,而是会反过来促进更多ROS生成。 在慢性炎症、缺血再灌注损伤和肿瘤微环境中,这种正反馈尤为明显。
2.2 铁离子让氧化损伤更具破坏性
铁离子是脂质过氧化的重要“助燃剂”。当细胞内游离铁增加时,H2O2可在Fenton反应中转化为更强反应性的羟基自由基。·OH攻击性极强,能够快速启动脂质链式过氧化。
这也是为什么在研究氧化损伤时,不能只看ROS总量,还要同时关注:
- 游离铁池是否升高。
- 抗氧化系统是否耗竭。
- 膜脂组成是否偏向高敏感脂质。
从机制上看,铁稳态失衡会显著提高活性氧通路诱发脂质过氧化的效率。
2.3 线粒体和内质网是高风险区域
线粒体是ROS的重要来源,也是重要受害者。氧化磷酸化效率下降时,电子泄漏增加,ROS继续累积。内质网应激同样会改变脂质合成和蛋白折叠状态,间接加重氧化负荷。
这类损伤常见于以下场景:
- 肿瘤细胞高代谢状态。
- 神经退行性疾病。
- 糖脂代谢紊乱。
- 缺血再灌注后组织修复阶段。
3. 代谢重编程如何影响脂质过氧化水平
3.1 葡萄糖、谷氨酰胺与NADPH
细胞抗氧化能力与代谢底物密切相关。葡萄糖经磷酸戊糖途径可提供NADPH,谷氨酰胺代谢也可通过补充TCA循环间接支持还原力生成。NADPH是维持谷胱甘肽和硫氧还蛋白系统活性的关键。
当NADPH不足时,细胞清除脂质过氧化物的能力会明显下降。 这时,即使ROS只是在中等水平上升,也可能引发显著膜损伤。
3.2 脂代谢决定膜脂“易感性”
脂质过氧化不是对所有脂质一视同仁。膜中多不饱和脂肪酸越多,越容易被ROS攻击。相反,脂质组成如果偏向不易氧化的类型,过氧化链反应会减弱。
科研中常见的观察是,代谢重编程会改变:
- 脂肪酸合成速率。
- 脂滴储存能力。
- 膜磷脂不饱和度。
- 过氧化底物供给。
这说明代谢变化不仅决定“ROS有多少”,还决定“ROS打谁、打多狠”。
3.3 Warburg效应与氧化应激的关系
在快速增殖细胞中,糖酵解增强可支持生物合成,但也可能伴随线粒体代谢重塑和ROS变化。若抗氧化系统跟不上,活性氧通路就会持续激活,脂质过氧化风险随之上升。
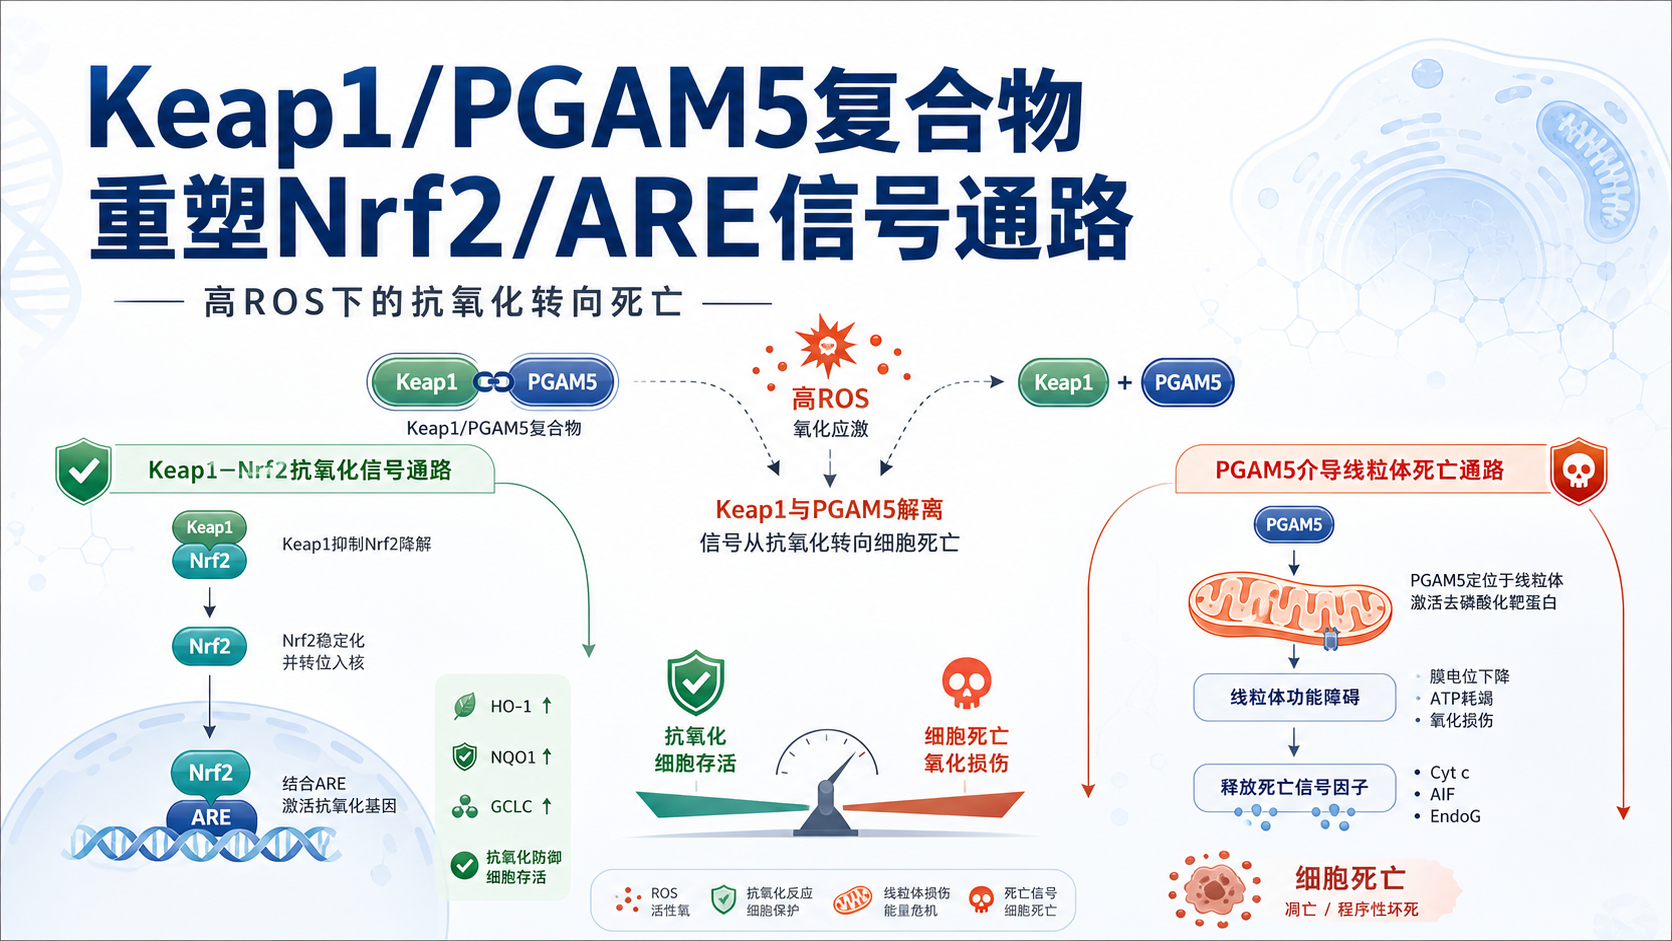
这类现象在肿瘤研究中尤其重要。因为肿瘤细胞往往一边产生更多ROS,一边依赖Nrf2等抗氧化通路维持生存。一旦平衡被打破,细胞可能从适应状态转向死亡。
4. 关键抗氧化通路如何限制脂质过氧化
4.1 Nrf2-ARE是核心防线
Nrf2在氧化应激时从胞质转位入核,结合ARE元件,启动多种抗氧化基因表达,包括谷胱甘肽相关酶、SOD等。它的作用不是简单“清除ROS”,而是整体提升细胞抗氧化能力。
在脂质过氧化背景下,Nrf2的价值体现在:
- 增强GSH再生。
- 提高过氧化物清除效率。
- 维持氧化还原稳态。
Nrf2通路是否完整,常常决定细胞能否跨过氧化应激阈值。
4.2 FOXO与热休克蛋白提供辅助保护
FOXO转录因子可上调SOD、GPx等抗氧化基因。热休克蛋白则通过稳定蛋白构象,减少氧化应激下的错误折叠和蛋白聚集。两者都不直接“消灭”脂质过氧化,但能减轻氧化压力的扩散。
这类通路的意义在于,它们构成了多层防御系统。
- 上游控制ROS生成。
- 中游限制脂质链式反应。
- 下游修复受损蛋白和细胞结构。
只有多层防线同时存在,细胞才可能稳定维持氧化还原平衡。
4.3 抗氧化系统失衡时会发生什么
当Nrf2、GSH、GPx或相关还原系统失效时,脂质过氧化物难以及时清除。随后可能出现膜结构破坏、细胞器功能障碍和程序性死亡。
研究中常见的判读思路包括:
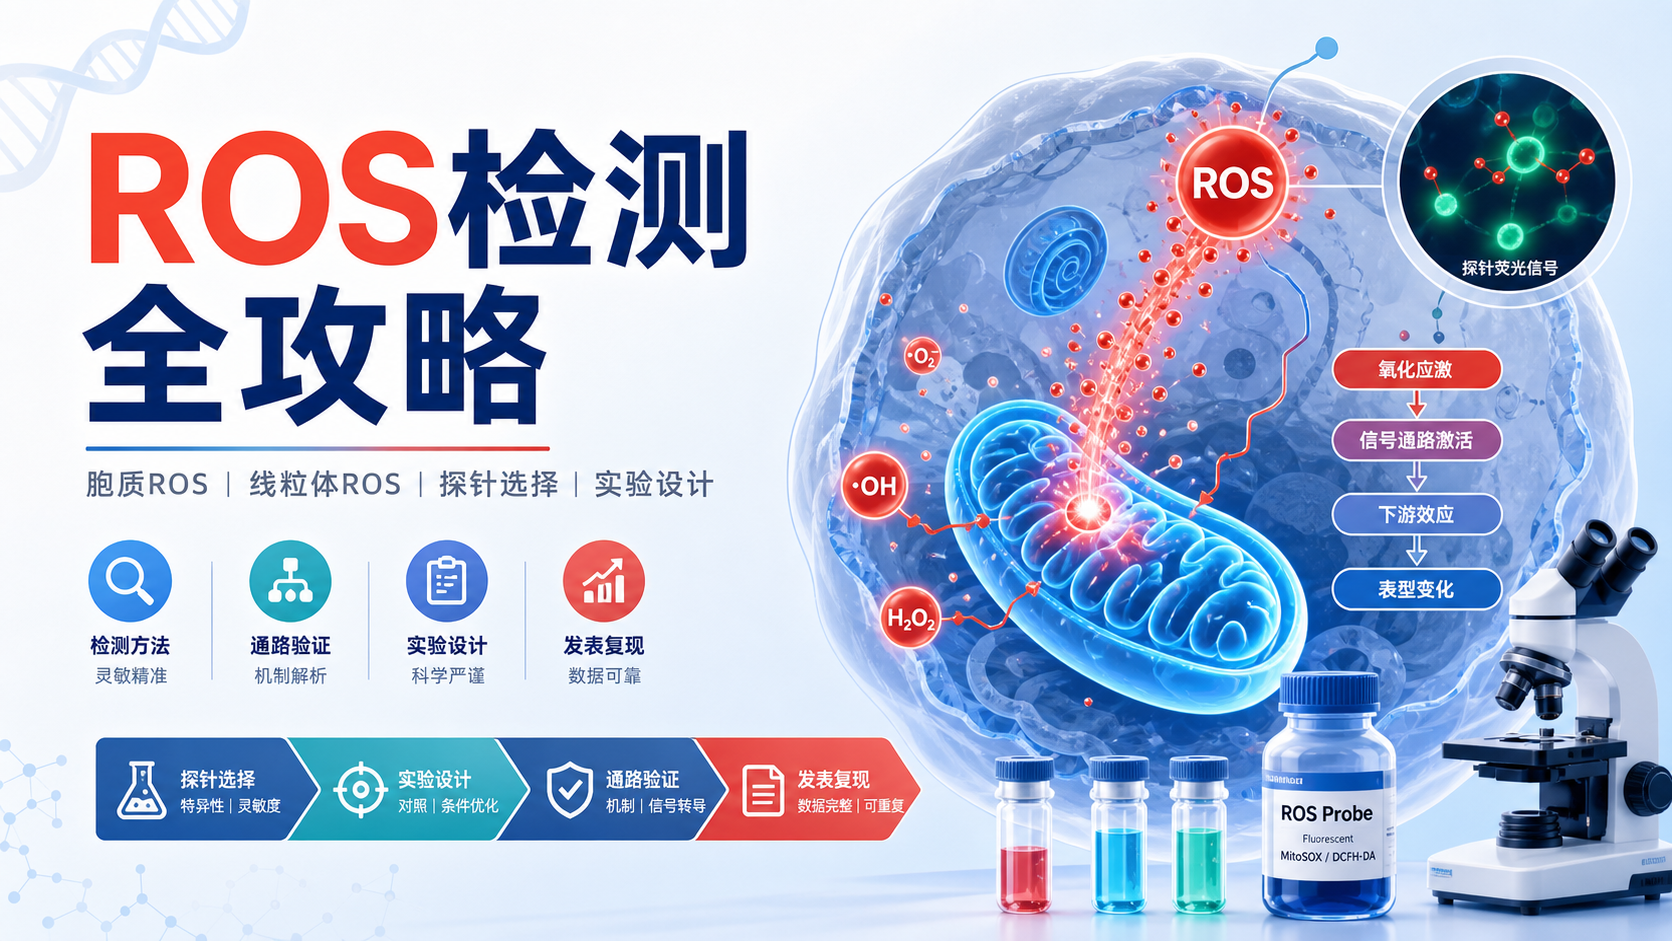
- 检测ROS水平。
- 检测脂质过氧化产物。
- 观察GSH、NADPH和抗氧化酶变化。
- 联合分析铁稳态和膜脂组成。
这种组合分析,比单看一个ROS指标更接近真实病理状态。
5. 研究脂质过氧化与活性氧通路时,应该关注什么
5.1 不要只看“氧化升高”
很多初学者会把ROS升高等同于氧化损伤加重,但这并不完整。真正有解释力的是“来源、靶点、清除能力”三者一起看。
建议关注以下维度:
- ROS来源,是NOX、线粒体还是铁依赖反应。
- 膜脂是否富含多不饱和脂肪酸。
- Nrf2和GSH系统是否被激活或耗竭。
- 是否伴随炎症和代谢重编程。
5.2 结合疾病场景更容易得出结论
脂质过氧化与活性氧通路在不同疾病中的意义并不相同。
在肿瘤中,它可能参与代谢脆弱性和治疗敏感性。
在神经系统疾病中,它常与膜损伤和细胞死亡相关。
在缺血再灌注损伤中,它往往与炎症爆发和组织坏死相连。
因此,研究设计必须结合具体病种,而不是只停留在通路名词层面。
5.3 文献检索与机制整合很关键
对于医学生、医生和科研人员来说,难点通常不是“知道有ROS”,而是如何快速串联通路、模型和证据。真正高质量的课题,往往需要把氧化应激、脂质代谢和铁稳态放在同一个框架下分析。
如果你希望更高效地梳理这类机制,可以借助解螺旋的文献与选题支持,快速定位活性氧通路、脂质过氧化和代谢调控的研究切口。 这能帮助你减少重复阅读,把精力集中在实验设计和结果解释上。
总结Conclusion
脂质过氧化不是单一损伤事件,而是活性氧通路、铁稳态、膜脂组成和抗氧化防线共同作用的结果。真正理解它,才能解释为什么同样的ROS刺激,在不同细胞中会产生完全不同的病理结局。
对于科研和临床转化来说,最有价值的切入点是把“ROS来源”与“代谢脆弱性”结合起来分析。这样才能更准确地识别机制,也更容易找到干预窗口。若你正在做相关课题,欢迎关注解螺旋 ,获取更系统的选题思路、文献整合和科研支持。
- 引言Introduction
- 1. 脂质过氧化为何是活性氧通路的核心结果
- 2. 活性氧通路如何驱动脂质过氧化
- 3. 代谢重编程如何影响脂质过氧化水平
- 4. 关键抗氧化通路如何限制脂质过氧化
- 5. 研究脂质过氧化与活性氧通路时,应该关注什么
- 总结Conclusion