

 16
 分享
引言Introduction
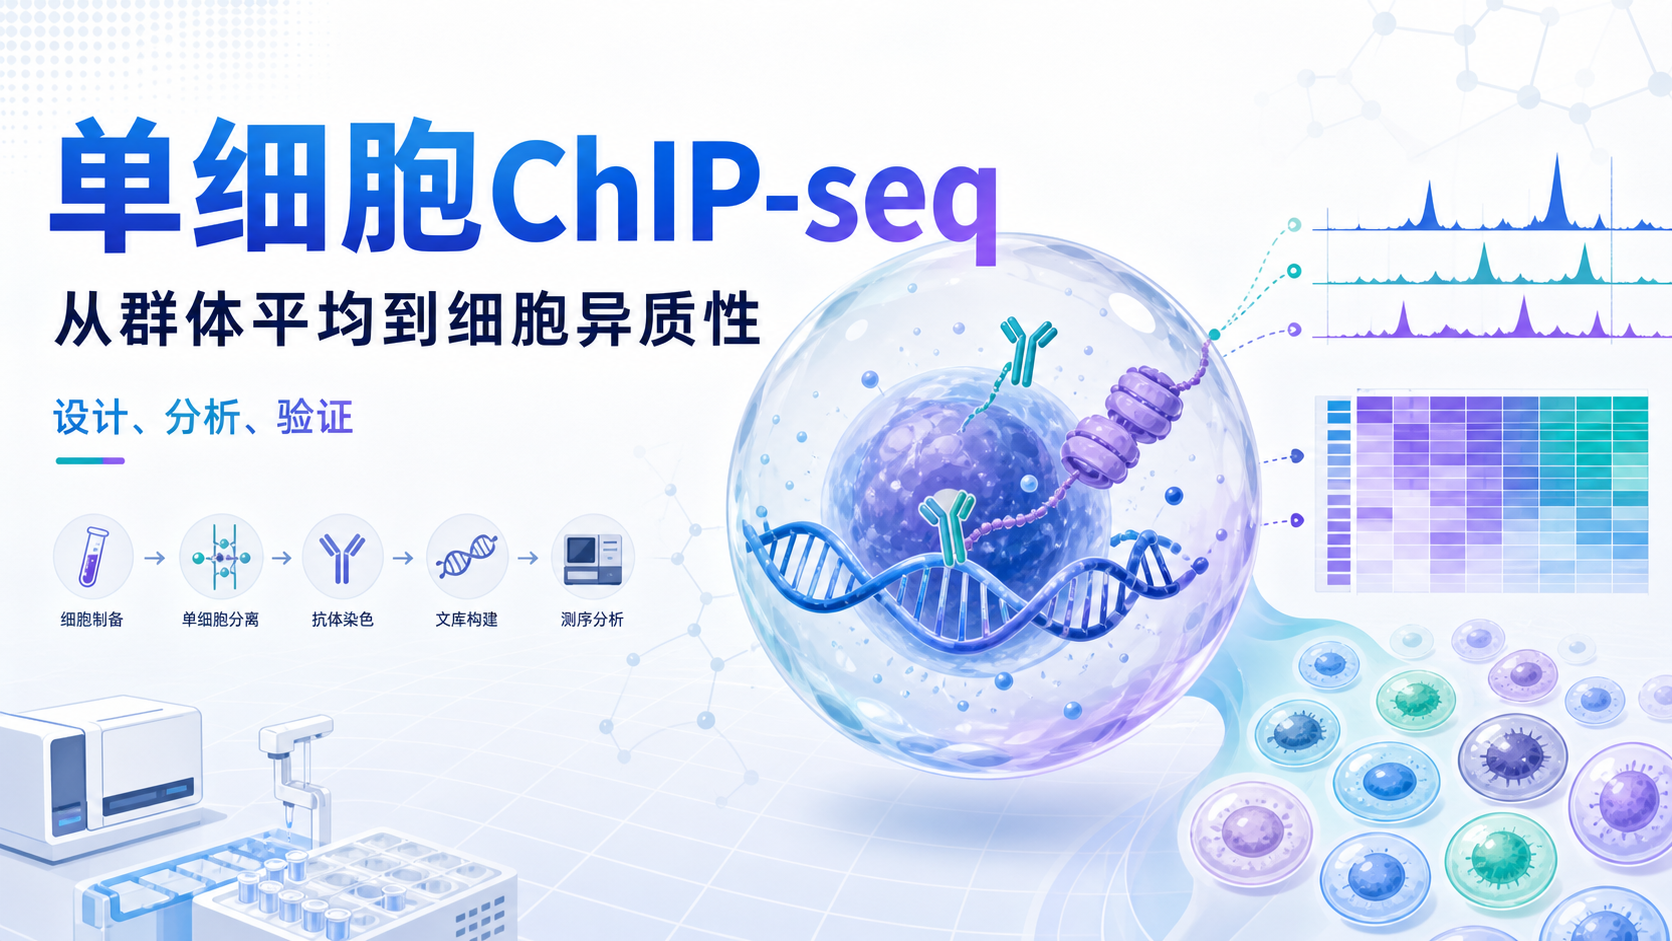
表观遗传研究最常见的痛点,不是“有没有信号”,而是“信号来自哪类细胞”。传统ChIP-seq平均掉了异质性,少量关键细胞被淹没。单细胞ChIP-seq正是在解决这个问题。 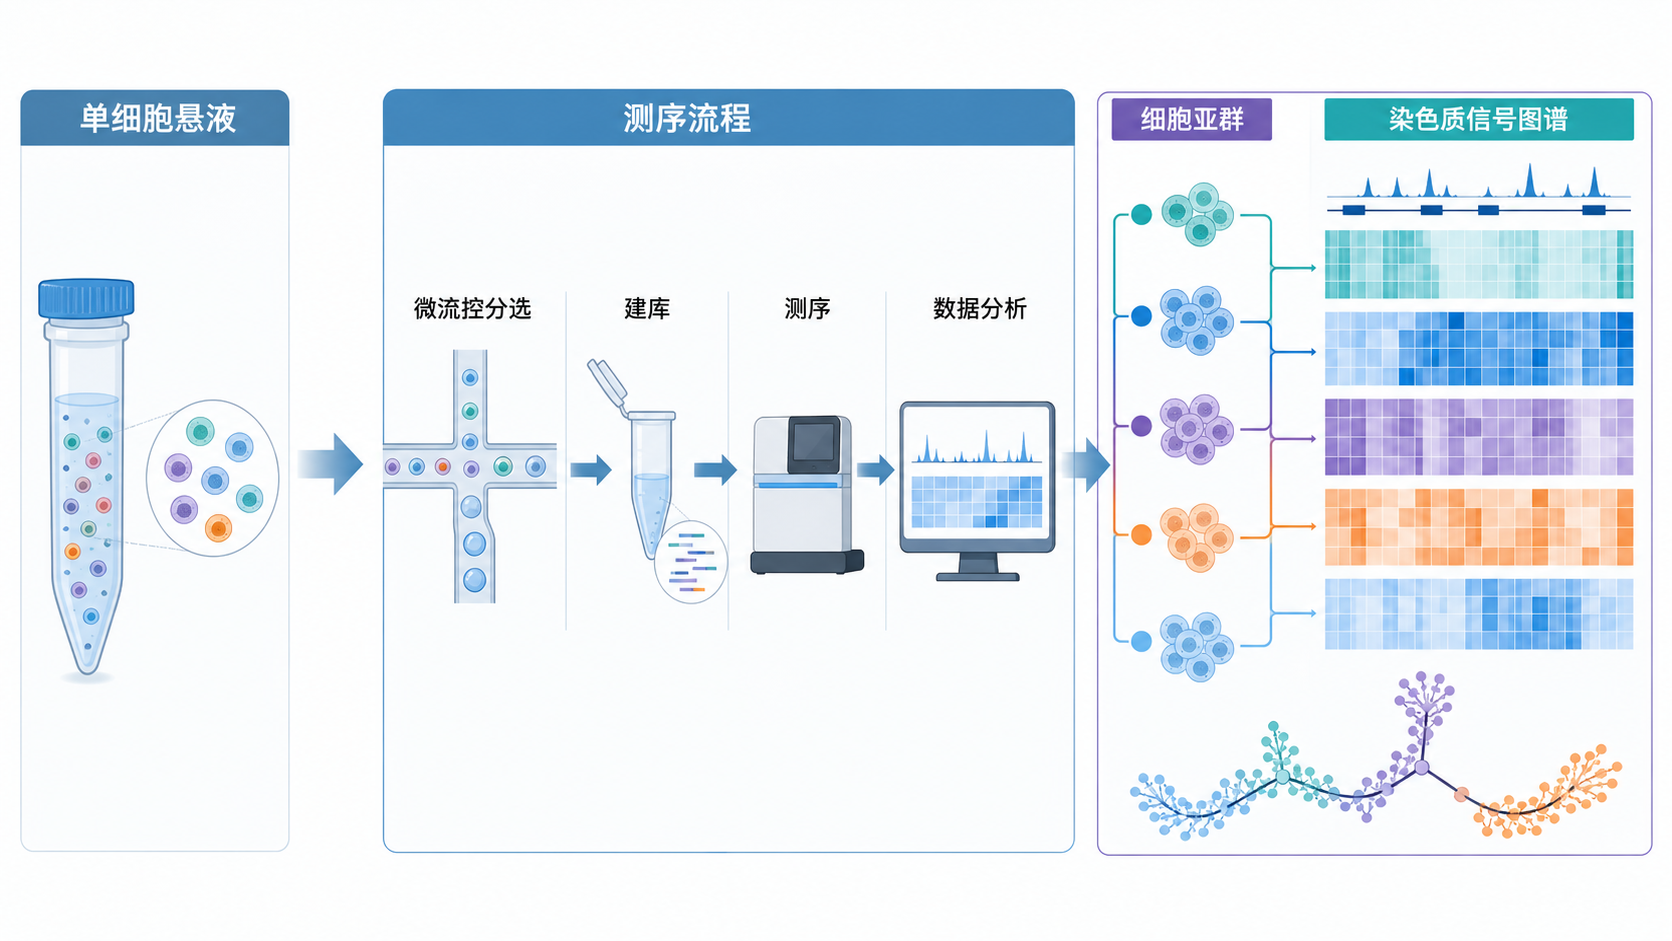
1. 单细胞ChIP-seq为什么重要
1.1 传统ChIP-seq的局限
ChIP-seq能回答“某个蛋白是否结合到某段DNA”。但它的前提是有足够多细胞混合在一起。结果往往是一个群体平均值。对于肿瘤、免疫微环境、胚胎发育这类样本,这个平均值会掩盖真实差异。
如果样本内部存在明显异质性,群体ChIP-seq很容易把关键亚群信号稀释掉。
例如,同一样本里可能只有一部分细胞处于激活状态,另一部分细胞完全静默。混合后看见的,只是“中间值”。
1.2 单细胞层面能补上的信息
单细胞ChIP-seq的核心价值,在于把“平均现象”拆成“细胞级证据”。它可以帮助研究者观察:
- 不同细胞是否具有不同的组蛋白修饰模式。
- 转录因子结合是否只发生在少数细胞中。
- 细胞命运转换过程中,染色质状态如何分化。
这类信息,对机制研究、疾病分型和靶点筛选都更关键。
尤其在肿瘤研究中,真正驱动耐药和转移的,常常不是主群,而是少数表型更极端的细胞。
1.3 适合哪些研究场景
单细胞ChIP-seq更适合以下问题:
- 样本异质性强。
- 研究对象稀少,难以获得大量同质细胞。
- 需要追踪细胞状态转变。
- 需要把染色质变化与功能表型联系起来。
它不是替代传统ChIP-seq,而是补足传统方法看不到的层次。
2. 单细胞ChIP-seq的技术逻辑
2.1 本质上是在做什么
ChIP的本质,是把蛋白-DNA相互作用“拉下来”,再检测富集的DNA片段。单细胞ChIP-seq则把这个过程压缩到单个细胞尺度,最终读出每个细胞的染色质信号。
常规ChIP依赖较高起始量。单细胞场景下,DNA极少,任何一步损失都会直接影响结果。
所以它对实验设计、抗体质量、文库构建和数据分析要求都更高。
2.2 结果为什么更难解释
单细胞数据的噪声通常更高。原因包括:
- 起始物质量低。
- 片段回收效率不稳定。
- 不同细胞间技术波动更明显。
- 生物学差异和技术误差更难分离。
因此,单细胞ChIP-seq不能只看“有没有峰”。
更重要的是看:
- 哪些细胞形成了相似簇。
- 染色质标记是否与转录状态一致。
- 结果是否能被其他实验验证。
单细胞数据的价值,不在于更“炫”,而在于更接近真实异质性。
2.3 适合哪些指标
目前单细胞ChIP-seq常关注的,通常是组蛋白修饰和少数关键蛋白的结合状态。原因很现实,组蛋白修饰相对稳定,信号也更容易捕获。
常见分析方向包括:
- 活跃启动子和增强子相关标记。
- 抑制性染色质标记。
- 细胞状态转换中的修饰重塑。
- 不同亚群的调控图谱比较。
3. 设计单细胞ChIP-seq实验时要注意什么
3.1 抗体是第一道门槛
ChIP实验里,能做WB的抗体,不一定能做ChIP,更不一定能做单细胞ChIP-seq。
原因是交联后靶位点空间构象改变,抗体可及性会下降。
实验前要重点确认:
- 抗体是否经过ChIP验证。
- 是否有清晰说明书和物种适用范围。
- 是否适合低起始量条件。
- 是否存在批次差异。
对于单细胞实验,抗体特异性尤其关键。因为样本少,非特异背景会被放大。
3.2 起始细胞状态要稳定
单细胞实验对前处理更敏感。细胞状态不稳,后面的结果就很难解释。建议重点控制:
- 细胞活率。
- 处理时间。
- 交联条件。
- 裂解和片段化条件。
甲醛交联过度,会影响后续片段回收。交联不足,又会丢失真实相互作用。
这类平衡问题,在单细胞体系中更明显。
3.3 对照必须提前设计
无论是传统ChIP还是单细胞ChIP-seq,对照都不是“可选项”。
至少要考虑:
- Input对照,用于评估起始DNA和富集效率。
- 阴性对照,用于判断背景。
- 阳性对照,用于确认体系可行。
如果研究目标是机制验证,还应结合其他实验做交叉印证。
ChIP能证明富集,不能单独证明因果。
3.4 技术路线要和问题匹配
不同问题,对技术分辨率要求不同。
如果只是想确认“某通路是否影响某个标记”,传统ChIP可能足够。
如果要回答“是哪一类细胞在驱动这个表观改变”,单细胞ChIP-seq才更合适。
这也是很多项目成败的分水岭。
不是题目不够,而是切入角度不对。
4. 数据分析和验证怎么做才可靠
4.1 单细胞数据不能只看峰图
单细胞ChIP-seq分析通常不止是“比对后出峰”。
更常见的重点是:
- 细胞间聚类。
- 相关标记的富集模式。
- 亚群差异比较。
- 与转录组或其他表型数据整合。
如果只看单个峰值,容易误判。
单细胞研究更强调模式,而不是单点。
4.2 需要和其他方法互相验证
表观遗传研究尤其要注意,体内实验能说明“相关”,但未必能说明“直接”。
因此建议把单细胞ChIP-seq和以下实验联用:
- ChIP-qPCR,验证特定位点富集。
- Western blot,观察蛋白表达变化。
- 功能实验,验证增殖、迁移或分化表型。
- 其他组学,辅助解释调控链路。
这类组合能提高结论可信度。
单细胞ChIP-seq负责发现线索,验证实验负责建立证据链。
4.3 结果解释要避免过度推断
单细胞数据很容易“看起来很漂亮”。但科研里最忌讳的是把相关性说成机制闭环。
更稳妥的表述方式是:
- 某标记在某亚群中显著富集。
- 该富集与某表型相关。
- 进一步功能实验支持其参与调控。
这样更符合E-E-A-T原则,也更经得起审稿。
5. 单细胞ChIP-seq如何真正“破局”
5.1 从群体平均走向细胞分层
单细胞ChIP-seq最大的突破,不是“分辨率更高”这么简单。
它把表观遗传研究从群体平均,推进到细胞分层。
这意味着研究者可以回答:
- 哪些细胞先发生染色质重编程。
- 哪些亚群保留抑制状态。
- 哪些细胞更可能进入耐药或转移轨道。
这对肿瘤、免疫和发育研究都很关键。
5.2 从描述现象走向解释异质性
过去很多结果只能说“这个标记变了”。
现在可以进一步问:
- 是谁变了。
- 在什么时候变。
- 变完后对应什么表型。
这就是单细胞ChIP-seq的真正价值。
它把“看见变化”升级为“定位变化来源”。
5.3 从单一技术走向组合策略
真正成熟的研究,往往不是依赖单一技术,而是组合策略。
例如:
- 单细胞ChIP-seq定位异质性。
- ChIP-qPCR验证关键位点。
- 功能实验验证生物学后果。
- 多组学整合补足机制链条。
单细胞ChIP-seq不是终点,而是起点。
最后,如果你正在做表观遗传机制、转录因子调控或肿瘤异质性研究,又想把单细胞ChIP-seq做得更稳、更可发表,可以借助解螺旋获取更系统的实验设计、文献梳理和机制思路支持,减少试错成本,把问题聚焦到真正有创新的切口上。
总结Conclusion
单细胞ChIP-seq的意义,在于把表观遗传研究从“平均信号”推进到“细胞级异质性”。它能帮助研究者识别关键亚群,定位染色质变化来源,并与功能表型建立更清晰的联系。
但它对抗体、对照、前处理和数据解释要求都更高。真正的突破,不只是上单细胞,而是把技术选择、实验验证和机制逻辑连成一条线。
如果你希望更高效地推进这类研究,欢迎关注解螺旋。它能帮助你在选题、设计和机制表达上少走弯路,把单细胞ChIP-seq真正用在刀刃上。
- 引言Introduction
- 1. 单细胞ChIP-seq为什么重要
- 2. 单细胞ChIP-seq的技术逻辑
- 3. 设计单细胞ChIP-seq实验时要注意什么
- 4. 数据分析和验证怎么做才可靠
- 5. 单细胞ChIP-seq如何真正“破局”
- 总结Conclusion