

 3
 分享
引言Introduction
染色质不是静态包装。它一边决定DNA能否被复制,一边影响复制起始位点、复制叉速度和复制压力。对医学生、医生和科研人员来说,理解染色质结构与DNA复制 的协同机制,已经是解读肿瘤、衰老和遗传不稳定的重要基础。
1. 染色质结构决定DNA复制的可及性
1.1 核小体是复制机器的第一道屏障
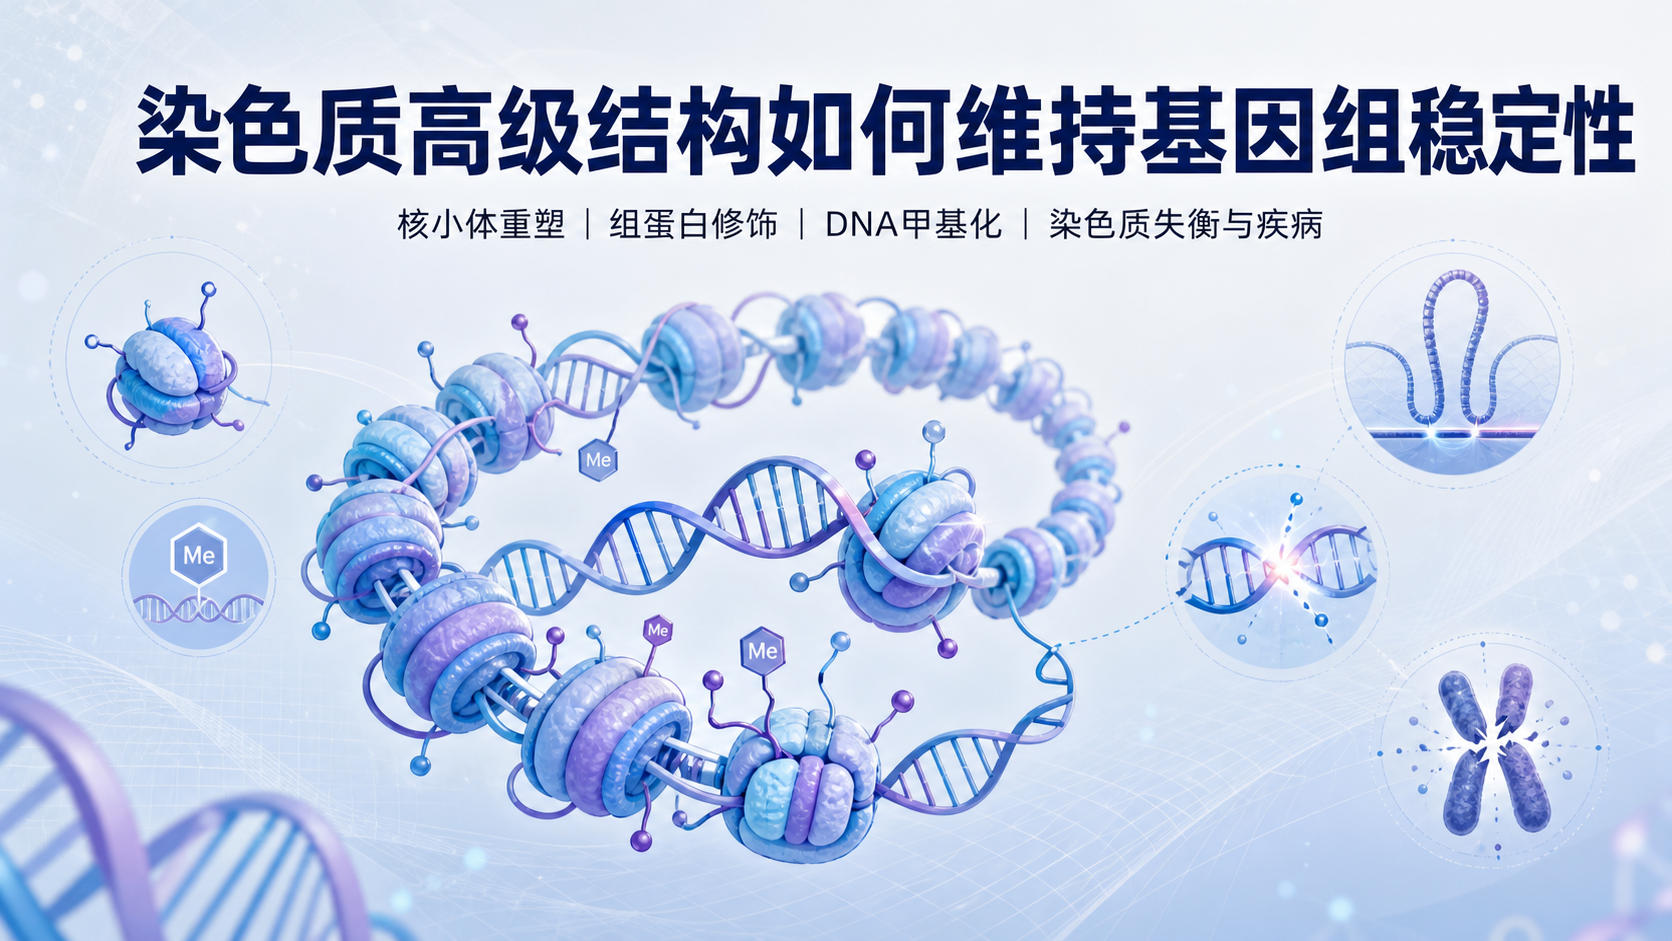
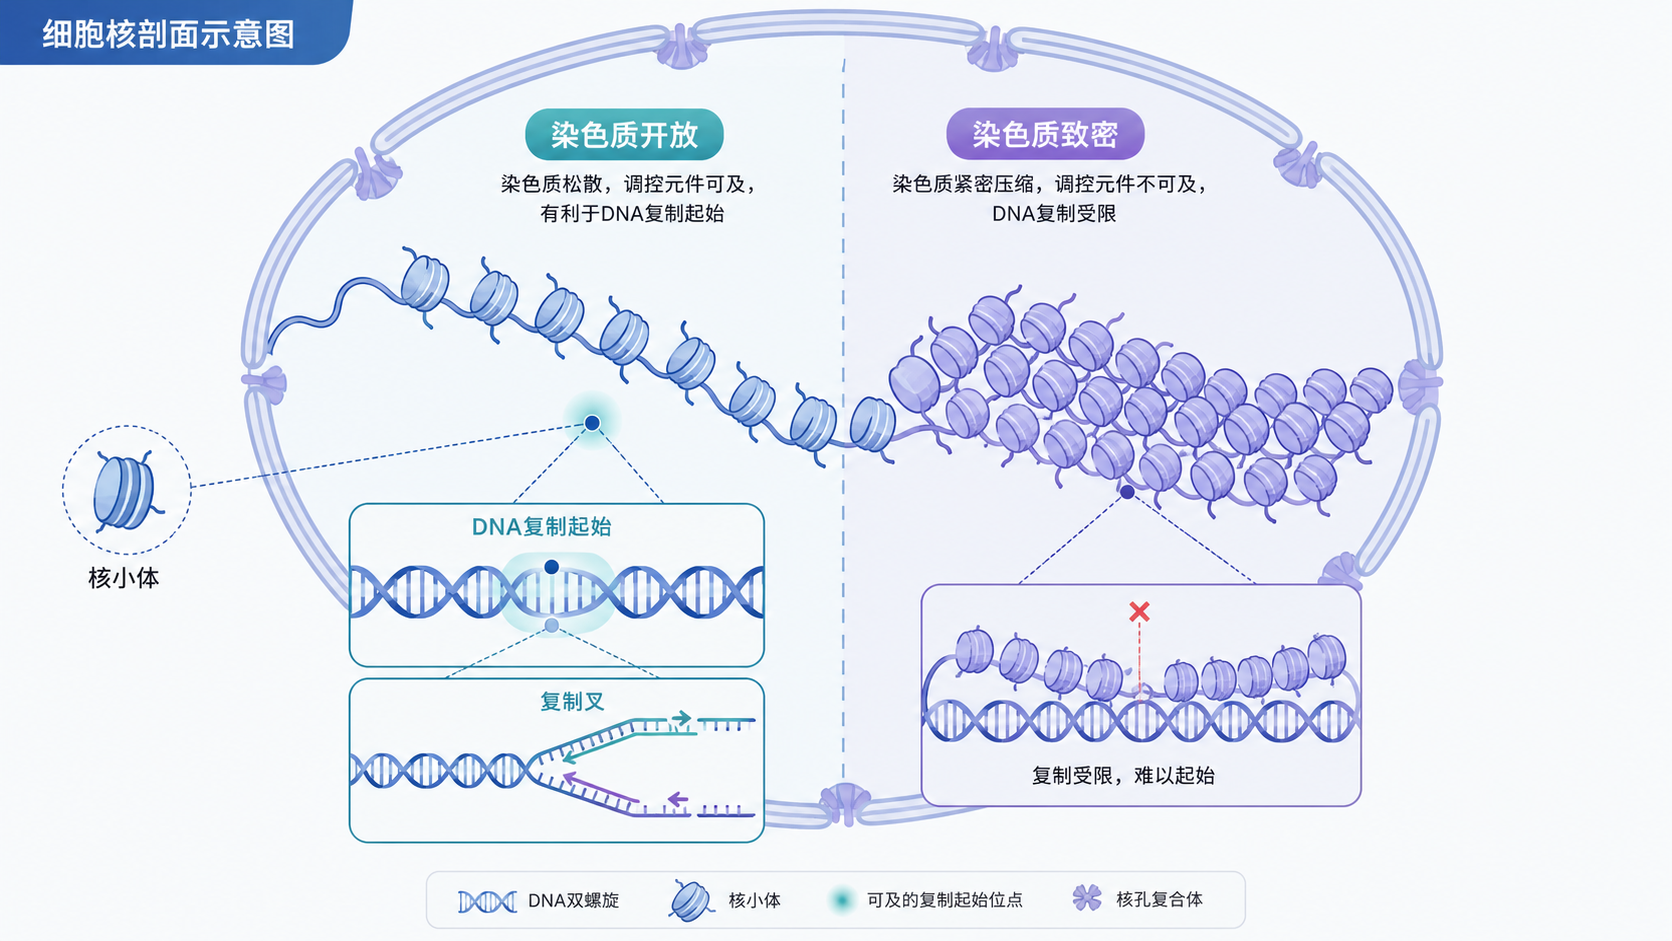
真核基因组DNA并非裸露存在,而是缠绕在组蛋白八聚体上形成核小体。核小体排列越致密,复制起始复合体越难接近DNA模板。 这意味着复制不是单纯的“DNA解链”,而是要先跨过染色质这层结构障碍。
在常染色质中,核小体相对疏松,复制相关蛋白更容易装载。相反,异染色质区域高度压缩,通常复制较晚,且复制叉推进更易受阻。这种时空差异不是偶然,而是由染色质结构本身预设的复制可及性所决定。
1.2 染色质开放状态影响复制起始位点选择
复制起始并不是沿基因组随机发生。许多起始位点位于染色质较开放的区域。开放染色质更利于起始蛋白复合体识别DNA,并完成预复制复合体装配。
研究中常见的共识是,H3K4me3、H3K9ac等活跃染色质标记,通常与早复制区域相关。 这类区域不仅转录活跃,也更容易建立复制许可状态。相反,H3K9me3等抑制性标记富集区域,常与晚复制和复制延迟相关。
1.3 复制前染色质重塑是必要步骤
DNA复制前,局部染色质必须被重塑。ATP依赖性染色质重塑复合物可移动、移除或重排核小体,为复制起始因子提供空间。没有这一步,复制起始位点即便存在,也可能处于“物理不可及”状态。
2. DNA复制过程反过来塑造染色质
2.1 复制叉通过时需要临时拆解核小体
复制叉前进时,双链DNA必须解旋。与此同时,原有核小体会被短暂拆解,组蛋白需要被暂存、转运并重新装配到新生DNA上。这个过程直接决定子代染色质的稳定性。
因此,DNA复制不是仅复制序列,也是在复制染色质状态。 如果组蛋白回收、再装配或修饰传递出现偏差,后续基因表达程序就可能发生改变。
2.2 复制耦联组蛋白装配维持表观遗传记忆
复制完成后,H3-H4四聚体等组蛋白组分会被重新分配到子链。随后新合成组蛋白补充到位,形成新的核小体。这个过程与CAF-1、ASF1等伴侣蛋白密切相关。
它的意义不只是“把DNA包起来”,更重要的是维持父链与子链之间的表观遗传信息延续 。某些组蛋白修饰可在复制后被部分保留,从而帮助细胞维持原有转录状态。
2.3 复制应激会改变染色质稳态
当复制叉遇到致密染色质、DNA损伤或转录复合体时,会出现复制应激。此时,细胞会启动染色质松弛、检查点激活和修复通路。若应激持续存在,可能导致复制叉停滞、断裂甚至基因组不稳定。
这也是为什么染色质结构与DNA复制的失衡,常见于肿瘤细胞和高增殖细胞。 它们既要快速复制,又常伴随表观调控紊乱,结果就是复制压力长期积累。
3. 组蛋白修饰与染色质重塑复合物的协同作用
3.1 组蛋白修饰提供复制窗口
组蛋白乙酰化通常与染色质开放有关。乙酰化降低DNA与组蛋白之间的静电作用,核小体更容易松动,复制因子也更容易进入。相反,去乙酰化和某些抑制性甲基化会增强染色质致密度。
从功能上看,组蛋白修饰相当于给复制机器“开门”或“关门”。 它们并不直接复制DNA,却决定复制机器能否顺利工作。
3.2 染色质重塑复合物负责结构重排
SWI/SNF、ISWI、CHD、INO80等重塑复合物可改变核小体位置、间距和稳定性。它们在复制起始和复制叉延伸中都可能参与。
例如,某些重塑因子可帮助形成更适合起始的局部开放结构;另一些则参与复制后核小体重建。这类蛋白的共同特点是:依赖ATP,且直接影响DNA与核小体的空间关系。
3.3 “写入-读取-擦除”共同维持复制秩序
组蛋白修饰酶负责写入标记,识别蛋白负责读取标记,去修饰酶负责擦除标记。三者配合,决定某一区域是早复制、晚复制,还是复制应激易感区。
这套系统的本质,是将化学修饰转化为结构变化,再转化为复制行为差异。因此,染色质结构与DNA复制不是并行事件,而是同一调控网络的两个层面。
4. 染色质三维结构与复制时序的耦联
4.1 三维基因组组织影响复制时序
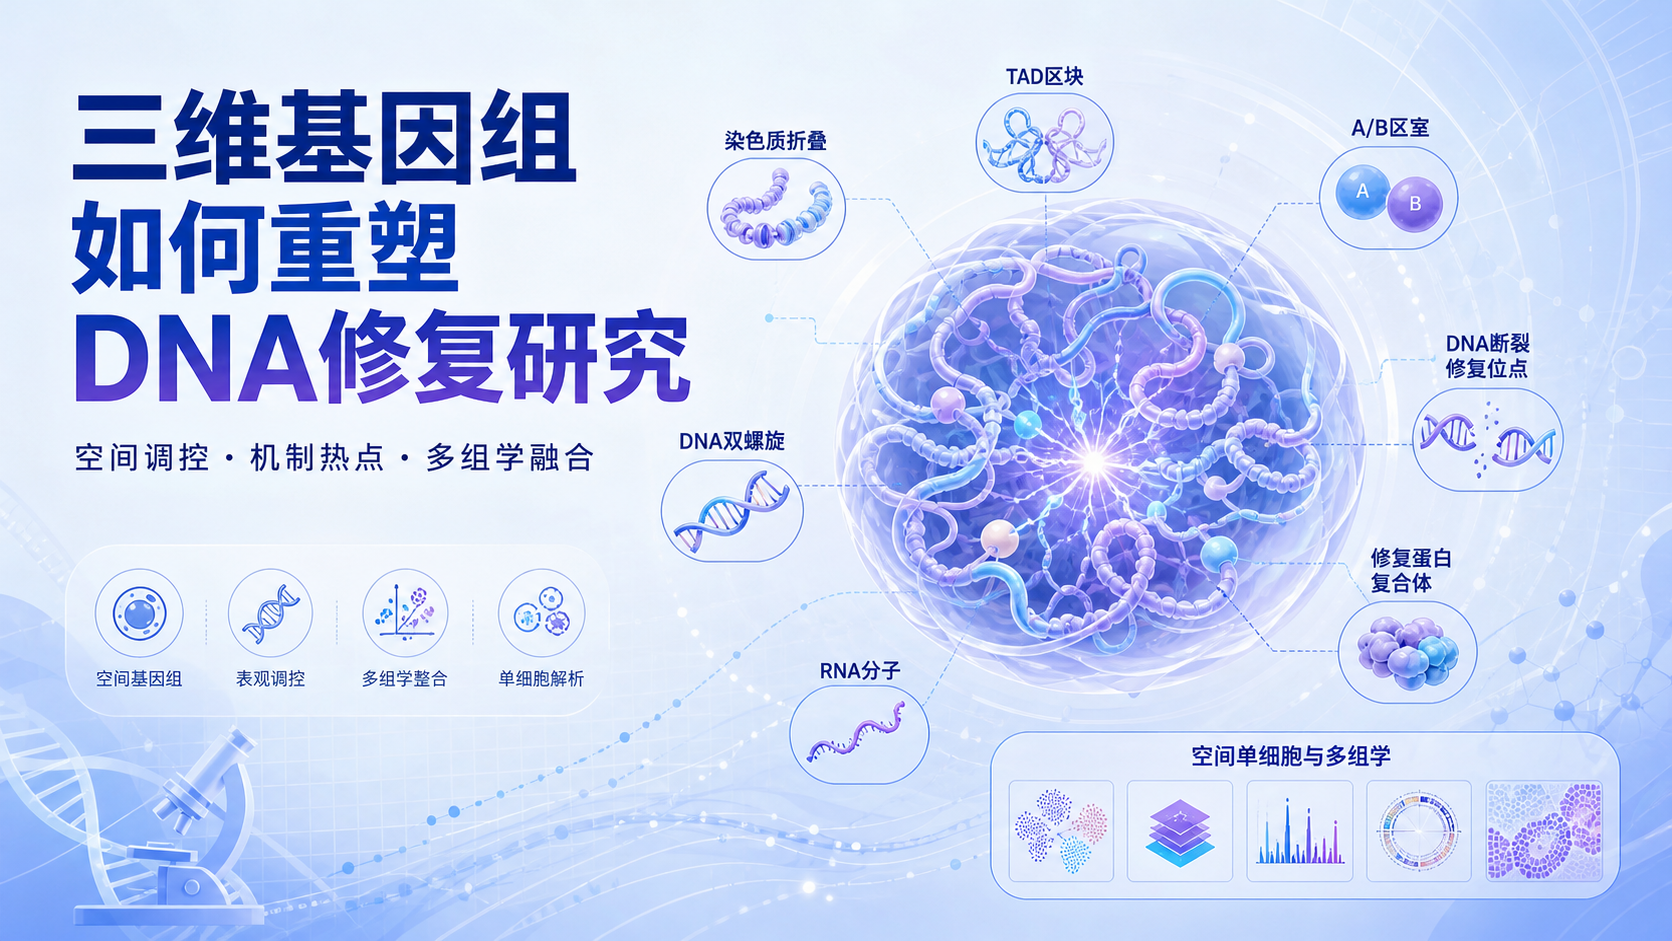
基因组并不只是线性排列。染色质在细胞核内形成TAD、环状结构和A/B区室,这些三维结构会影响复制时序。通常,A区室对应开放、转录活跃、早复制区域;B区室则更致密,倾向晚复制。
这说明复制时序并非孤立决定,而是嵌入三维染色质架构之中。空间位置本身就是复制调控信息。
4.2 复制域与染色质域常相互对应
多个复制起始位点常构成复制域,在时间上协调启动。复制域的边界、强度和活性,往往与染色质域结构相一致。也就是说,基因组的结构分区,和复制程序具有高度耦联性。
这种耦联有助于细胞在有限时间内完成大规模基因组复制,同时尽量减少复制冲突和错误累积。
4.3 结构改变会重塑复制程序
当细胞分化、受损或发生恶性转化时,三维染色质结构会发生改变。随之而来的,不只是转录谱变化,还包括复制时序重排。某些原本早复制的区域可能延后,某些沉默区可能异常提前。
这类变化在癌症中尤其值得关注。因为复制时序改变常伴随基因组不稳定、拷贝数变异和结构变异增加。
5. 研究方法与转化应用
5.1 常用研究技术
研究染色质结构与DNA复制协同调控,常结合多组学和成像技术。
常见方法包括:
- ATAC-seq,用于评估染色质开放性
- ChIP-seq,用于分析组蛋白修饰和复制相关蛋白结合位点
- Hi-C,用于观察三维染色质构象
- Repli-seq,用于解析复制时序
- EdU标记结合成像,用于追踪DNA合成区域
这些技术组合后,才能把“结构、时间和功能”串联起来。
5.2 疾病研究中的价值
在肿瘤、发育异常和DNA修复缺陷疾病中,染色质与复制协同失衡十分常见。比如,抑癌基因区域染色质过度压缩,可能降低复制效率和修复效率;而某些致癌位点若长期开放,则可能更易发生异常复制和重排。
因此,研究这一领域的核心意义,在于解释为什么某些基因组区域更脆弱,为什么某些细胞更容易积累突变。
5.3 从基础研究到实验设计
如果你的研究关注复制压力、表观遗传调控或肿瘤发生,建议优先构建“结构-复制-表达”三层证据链。单看一种数据往往不够,必须联合分析染色质开放性、组蛋白状态和复制时序。
这也是高质量课题设计的关键。只有把染色质结构与DNA复制放在同一框架中,才能真正解释表型变化。
总结Conclusion
染色质结构与DNA复制的关系,本质上是“空间组织决定复制行为,复制过程反过来塑造染色质状态”的双向调控。核小体密度、组蛋白修饰、三维基因组结构和染色质重塑复合物,共同决定复制起始、延伸和复制后重建。对基础研究和疾病机制研究来说,这一主题都具有明确价值。若你希望进一步梳理相关实验思路、文献框架或课题设计,可以借助解螺旋 的专业内容体系,快速建立从机制到实验的完整认知链条。
- 引言Introduction
- 1. 染色质结构决定DNA复制的可及性
- 2. DNA复制过程反过来塑造染色质
- 3. 组蛋白修饰与染色质重塑复合物的协同作用
- 4. 染色质三维结构与复制时序的耦联
- 5. 研究方法与转化应用
- 总结Conclusion