

 17
 分享
引言Introduction
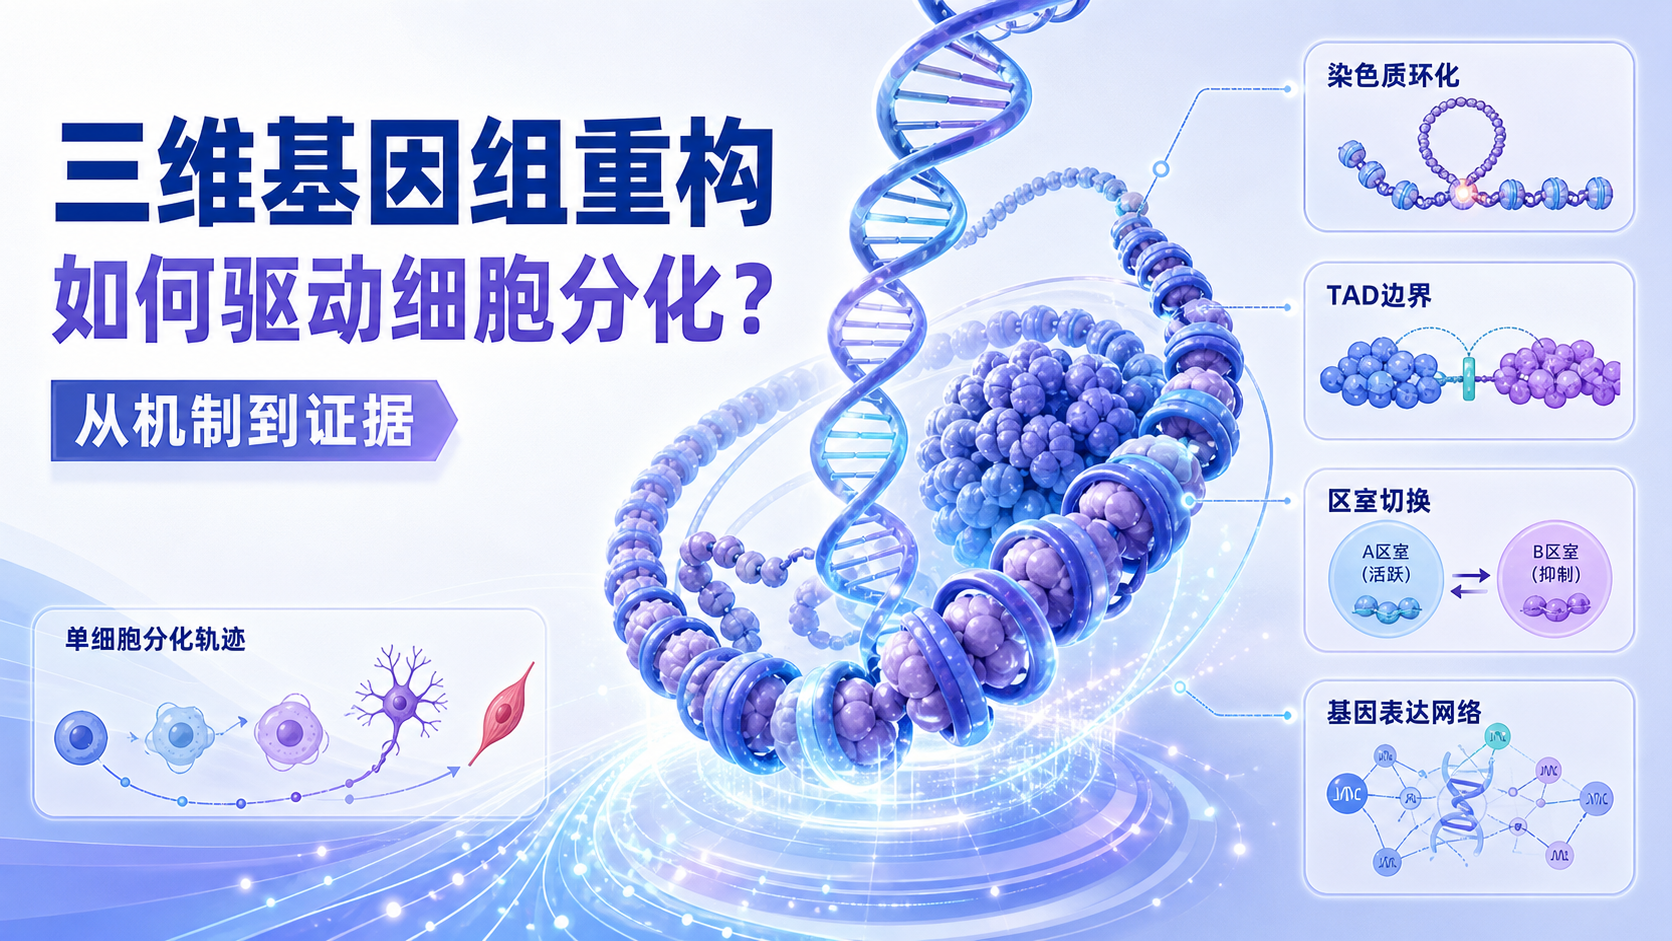
细胞分化不是只看基因开不开,而是看染色质如何重新折叠、接触和隔离。三维基因组重构正在成为理解分化命运决定的关键切口 。对医学生、医生和科研人员来说,真正的难点不是“有没有机制”,而是如何把分化与空间结构变化连起来。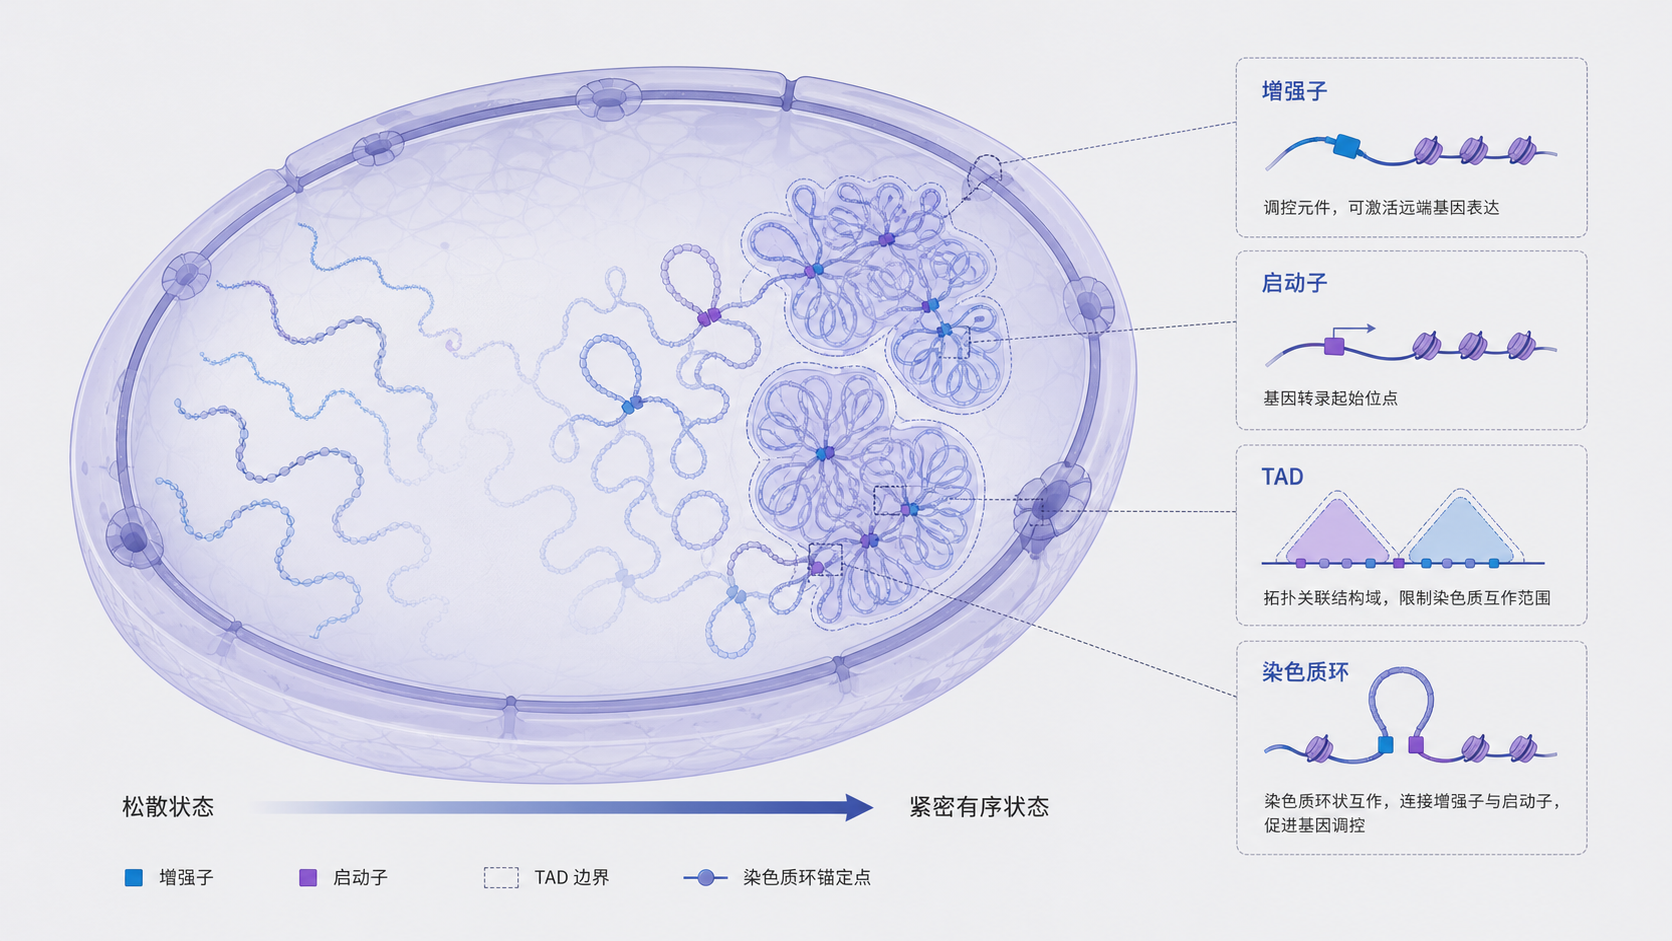
1. 为什么分化研究需要引入三维基因组视角
1.1 线性基因组不足以解释分化差异
传统研究常聚焦转录因子、表观修饰和信号通路,但很多分化现象无法仅靠线性DNA序列解释。相同基因组在不同细胞类型中,表达谱却差异巨大。原因之一,就是染色质在细胞核内的空间组织不同。
三维基因组决定了哪些增强子能接触目标启动子,哪些基因被打开,哪些区域被沉默。 这意味着,分化不是单纯的“基因表达变化”,而是空间结构先变,转录输出随后改变。
1.2 分化过程本质上包含结构重编程
在干细胞向特定谱系分化时,染色质可发生多个层级变化:
- 染色质可及性改变。
- 增强子和启动子接触模式改变。
- TAD边界稳定性改变。
- A/B区室状态转换。
这些改变会重塑转录网络,使细胞逐步脱离“多能状态”,进入稳定谱系。换句话说,分化染色质三维重构不是伴随事件,而是驱动事件之一。
1.3 三维结构改变具有可检测性和可解释性
随着Hi-C、Capture-C、Micro-C、ATAC-seq和单细胞多组学技术发展,研究者已能把结构变化和功能输出对应起来。相比过去只看某个基因上调或下调,现在可以进一步回答:
- 这个基因为什么被激活。
- 它由哪个增强子驱动。
- 该互作是否发生在分化早期。
- 是否存在细胞群异质性。
这类问题,正是三维基因组视角的价值所在。
2. 三维基因组重构如何参与细胞分化
2.1 染色质环化决定谱系特异性转录
分化过程中,细胞常通过形成新的染色质环,使远距离调控元件接近靶基因。很多组织特异性基因,并不是依赖最近的启动子附近元件,而是依赖远端增强子。
增强子-启动子互作的建立,往往对应分化标志基因的启动。 这一点在造血、神经、肌肉和上皮分化中都很常见。结构一旦形成,转录程序就更容易稳定维持。
2.2 TAD重塑影响基因表达边界
TAD是基因组中高频互作的局部结构单元。它像一个功能隔间,把某些调控元件限制在特定范围内。分化时,部分TAD边界会增强,部分会减弱。
边界变化的结果通常有两类:
- 正常情况下,增强子只调控同域基因。
- 边界受损时,调控范围扩大,可能导致异常表达。
对发育和疾病研究而言,TAD边界的稳定与破坏都很重要。 前者帮助细胞维持身份,后者可能引发错误分化或肿瘤样表型。
2.3 区室切换体现染色质状态转变
A区室通常对应开放、活跃的转录状态,B区室则多为抑制状态。细胞分化时,一部分区域会从B转向A,说明该区域从沉默转入可表达状态。也有相反方向切换,代表不再需要的基因程序被关闭。
这一过程可理解为基因组“功能分区”重排。区室切换常与谱系决定基因的激活和非必需基因的沉默同步发生。
3. 分化染色质三维重构的关键研究框架
3.1 从现象到机制,建议分三步走
如果要做分化染色质三维重构研究,最稳妥的路线是:
-
先确定分化模型。
如干细胞向神经、骨、脂肪或免疫细胞分化。 -
再锁定结构变化窗口。
重点观察早期、中期、晚期不同时间点。 -
最后连接结构与功能。
同时分析转录变化、增强子活性和关键因子表达。
只有把时间维度加进去,才能判断结构变化是原因还是结果。
3.2 技术组合比单一技术更有说服力
单靠一种方法,通常很难把故事讲完整。更合理的组合包括:
- Hi-C或Micro-C,用于全局三维互作图谱。
- ATAC-seq,用于判断染色质开放程度。
- ChIP-seq,用于确认转录因子或组蛋白修饰。
- RNA-seq或单细胞RNA-seq,用于验证表达变化。
- 3C、4C、Capture-C,用于验证特定位点互作。
技术上的互相印证,远比单点结果更能支持机制结论。 这也是高质量论文和基金标书最看重的部分。
3.3 单细胞层面更适合研究分化异质性
分化并不是同步完成的。即使在同一种处理条件下,细胞之间也存在分化速度和状态差异。单细胞层面的三维组学或多组学分析,可以识别过渡状态细胞。
这类细胞往往最有研究价值,因为它们更接近命运转换的关键节点。如果只做群体平均,很多短暂而关键的结构变化会被掩盖。
4. 三维基因组重构研究中的常见切入点
4.1 从关键转录因子入手
分化研究里,常见思路是先找核心转录因子,再追踪其调控的三维结构变化。比如某个转录因子上调后,是否带来特定增强子聚集,是否推动某类基因簇同步激活。
这一类问题适合构建清晰逻辑链:
- 上游信号变化。
- 转录因子结合增强。
- 三维互作重排。
- 谱系基因激活。
- 分化表型形成。
4.2 从表观修饰入手
H3K27ac、H3K4me1、H3K27me3等标记常与增强子活性和基因抑制相关。很多时候,三维结构变化并不是孤立发生,而是与这些修饰同步转换。
表观修饰改变提供“能不能接触”的许可,三维结构变化决定“接触后是否生效”。 这两者配合,才能解释分化过程中表达程序的切换。
4.3 从疾病相关分化障碍入手
临床和转化研究中,常见问题不是正常分化,而是分化停滞或异常分化。比如肿瘤细胞去分化、造血异常分化、神经发育异常等。
在这些场景中,三维结构紊乱往往能解释:
- 为什么某些基因持续激活。
- 为什么本应关闭的程序没有关闭。
- 为什么细胞卡在过渡状态。
这也是三维基因组研究最接近临床价值的方向。
5. 如何把研究做得更像“机制”,而不只是“现象”
5.1 重点不是找到变化,而是找到因果顺序
真正有说服力的研究,需要回答三个问题:
- 结构变化先发生,还是转录变化先发生。
- 结构变化是否足以驱动分化。
- 阻断该结构变化后,表型是否被逆转。
如果只能说明“相关”,还不够。只有建立因果链条,分化染色质三维重构才算真正落地。
5.2 验证时要兼顾局部和全局
局部验证能说明一个位点的机制,全局图谱能说明这个机制是否具有普遍性。二者缺一不可。
常见组合是:
- 全局层面看染色质重编程。
- 局部层面看关键互作验证。
- 功能层面看分化标志和细胞表型。
- 干预层面看能否逆转。
这种设计更符合E-E-A-T导向下的高质量科研表达,也更容易形成完整叙事。
5.3 结果呈现要尽量定量化
描述三维重构时,建议尽量量化而不是只用“明显增强”“显著下降”这类模糊表达。可报告:
- 互作频率变化。
- 差异区室比例。
- 开放染色质峰变化。
- 关键基因表达倍数。
- 分化标志阳性率。
定量数据越完整,结论越可信。
总结Conclusion
细胞分化的核心,不只是基因表达开关,而是染色质在核内的空间组织被重新编排。三维基因组重构为理解分化命运决定提供了新的解释框架。 对医学生、医生和科研人员来说,这一视角能帮助我们把表型、转录和空间结构串成一条完整证据链。
如果你正在规划分化机制研究,或希望把三维染色质重构与功能验证结合起来,建议借助更系统的研究设计和技术支持。解螺旋可以帮助你把问题定位、技术组合和逻辑主线梳理清楚,让三维基因组研究从“看见变化”走向“解释变化”。
- 引言Introduction
- 1. 为什么分化研究需要引入三维基因组视角
- 2. 三维基因组重构如何参与细胞分化
- 3. 分化染色质三维重构的关键研究框架
- 4. 三维基因组重构研究中的常见切入点
- 5. 如何把研究做得更像“机制”,而不只是“现象”
- 总结Conclusion