5
 分享
引言Introduction
氧死亡研究近年快速升温,但很多人只盯着ROS,却忽略了脂质信号和膜系统的参与。鞘氨醇-1-磷酸通路不仅影响细胞存活,还可能改变氧化应激下的死亡阈值。 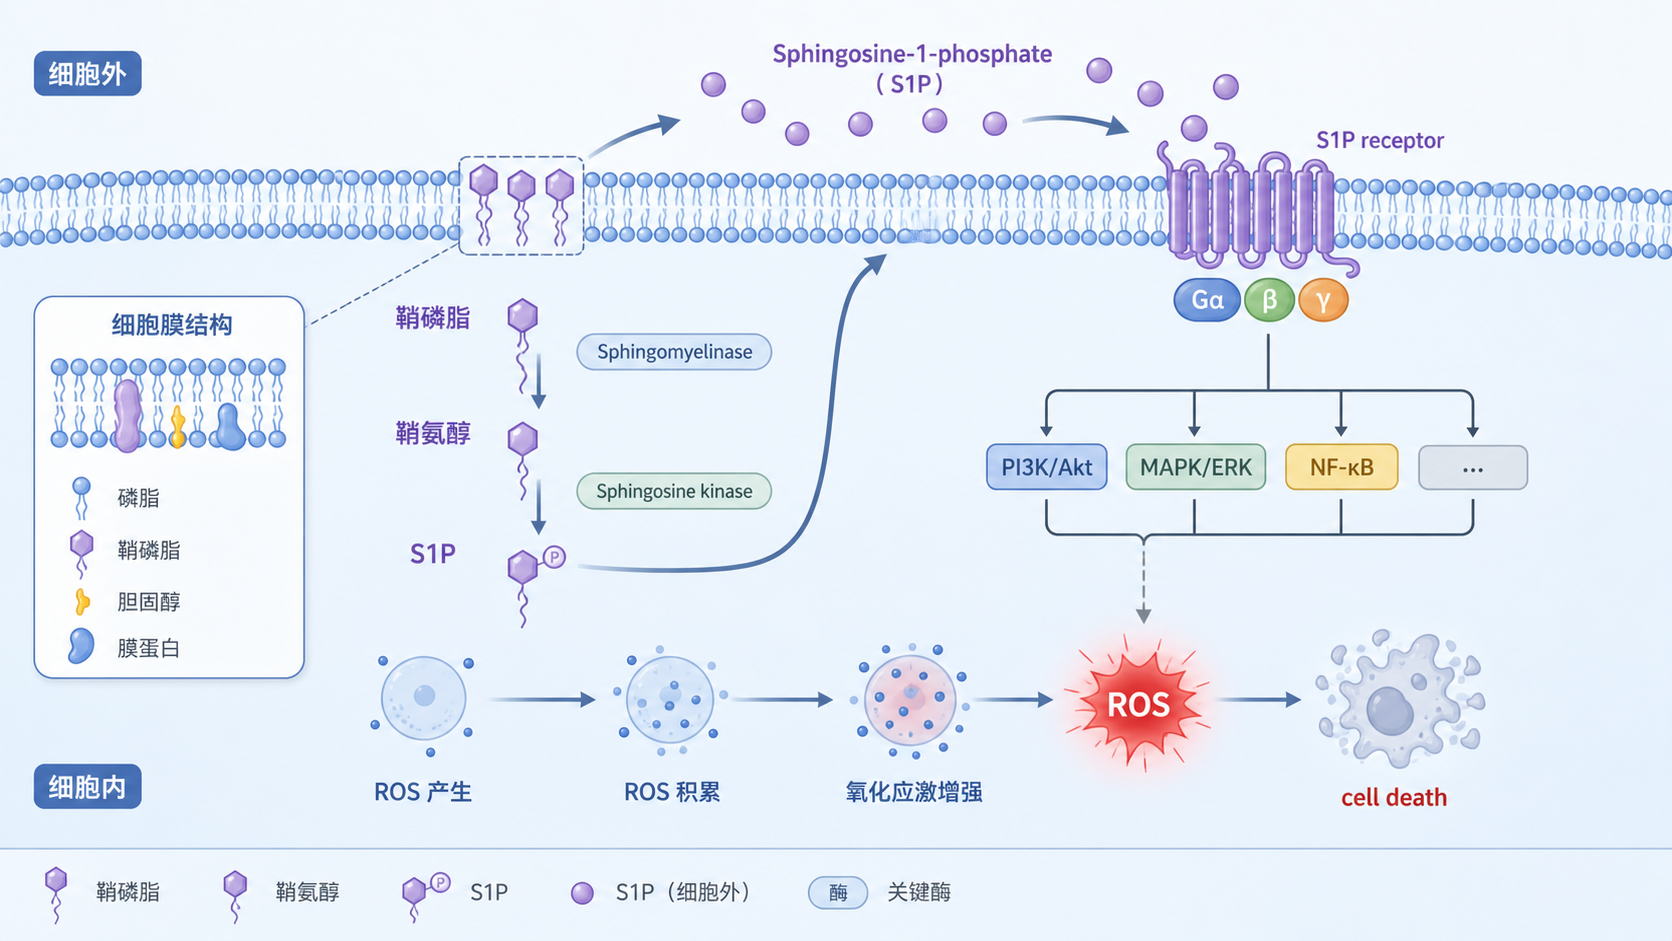
氧死亡,通常指在氧化应激背景下,ROS异常积累引发的一类细胞损伤与死亡过程。对医学生和科研人员来说,真正难点不是“知道有ROS”,而是理解信号脂质如何把氧化应激转化为可测、可干预的死亡表型 。
1. 鞘氨醇-1-磷酸通路的基本框架
1.1 从鞘脂代谢到信号转导
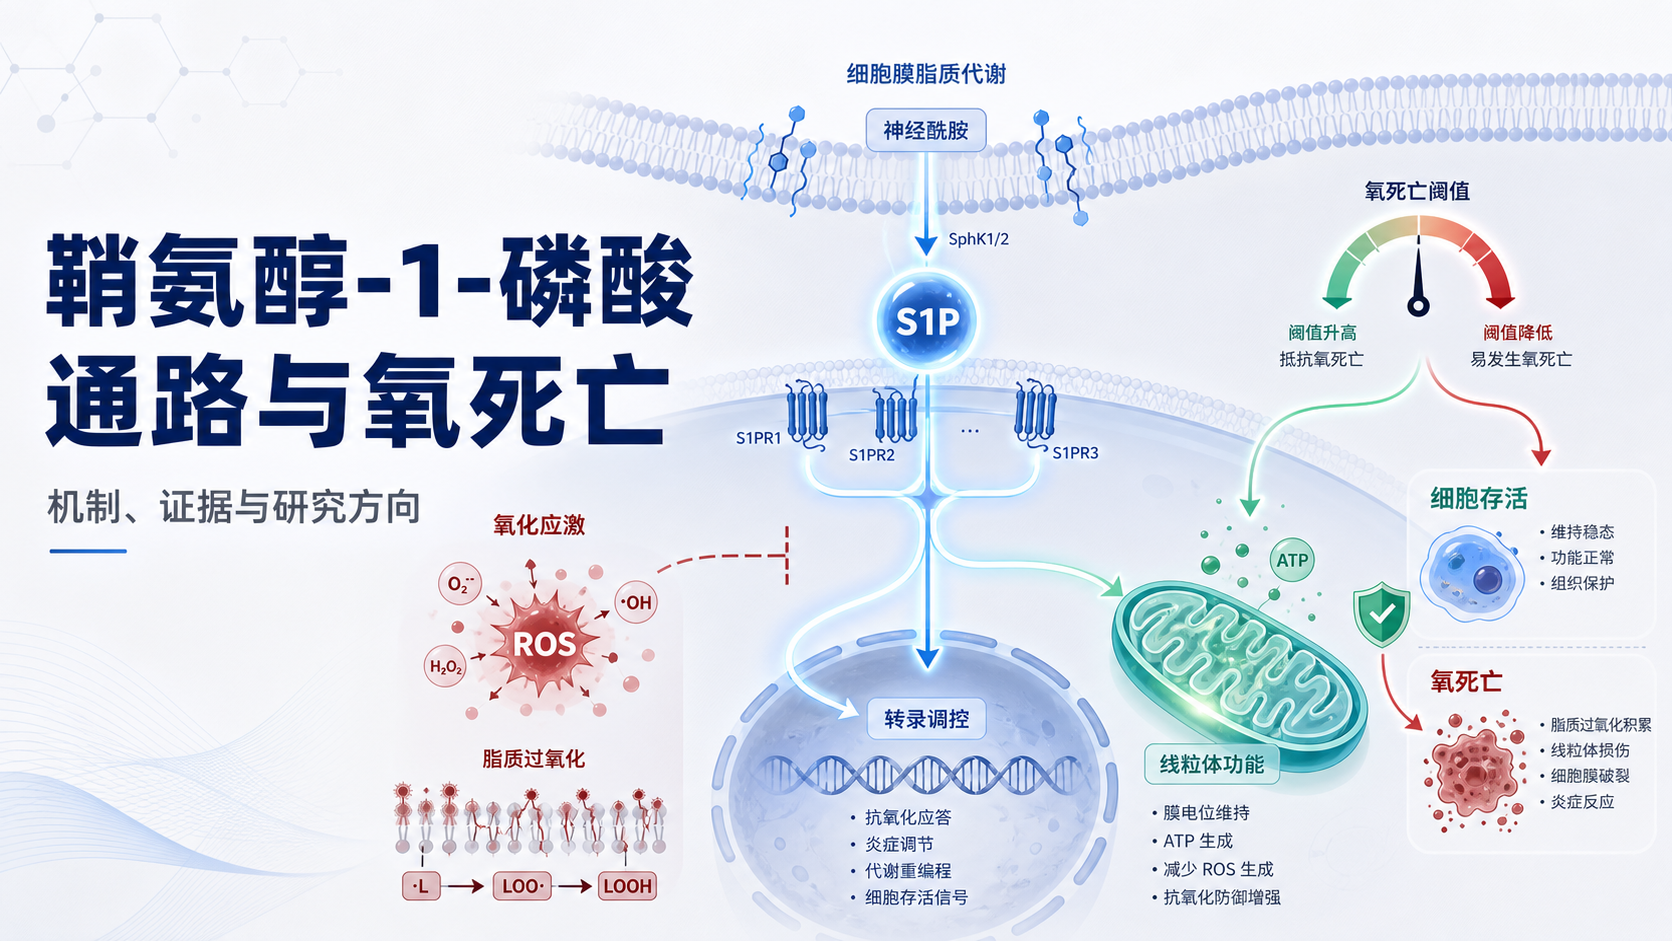
鞘氨醇-1-磷酸,简称S1P,是鞘脂代谢中的关键活性分子。它由鞘氨醇在鞘氨醇激酶1和2,SphK1/2,催化下生成。随后,S1P可以被S1P磷酸酶和S1P裂解酶进一步代谢,决定其细胞内外水平。
这条通路的核心不是“单一代谢反应”,而是“代谢与信号双重属性”。 S1P既能在细胞内发挥作用,也能通过膜受体S1PR1到S1PR5介导旁分泌和自分泌信号。
1.2 S1P为何与细胞存活相关
大量研究显示,S1P通常与增殖、迁移、血管生成和抗凋亡相关。相较之下,神经酰胺和鞘氨醇更常被视为促死亡分子。这个“生存-死亡平衡”被称为鞘脂风筝模型的核心思想。
对氧化应激研究而言,这一点很重要。因为S1P水平变化,往往会重塑细胞对ROS的耐受性 。在不同细胞类型中,这种效应可通过线粒体功能、抗氧化酶表达和膜受体信号共同实现。
1.3 与氧化还原稳态的连接点
S1P通路与氧化还原稳态至少有三层连接。
- 通过SphK1/2影响应激反应。
- 通过S1PR相关信号调节PI3K-AKT、ERK和NF-κB。
- 通过线粒体相关机制影响ROS生成和清除。
这意味着,S1P不是单纯“旁观者”,而是氧化应激网络中的调节器。
2. 氧死亡的研究视角与判定逻辑
2.1 氧死亡不是“所有氧化损伤”的总称
氧死亡相关研究中,一个常见误区是把ROS升高直接等同于细胞死亡。实际上,ROS只是上游事件,真正决定表型的是是否出现膜损伤、脂质过氧化、线粒体功能失衡和死亡程序激活。
研究氧死亡,必须回答三个问题。
- ROS是否持续升高。
- 细胞膜和线粒体是否出现可重复损伤。
- 这种损伤能否被特定干预逆转。
2.2 常用实验判断要点
在基础研究中,通常会结合以下指标:
- DCFH-DA或MitoSOX检测ROS。
- C11-BODIPY评估脂质过氧化。
- JC-1或TMRE观察线粒体膜电位。
- Annexin V/PI区分死亡类型。
- 结合铁死亡、凋亡、坏死性凋亡抑制剂做排除实验。
如果没有排除实验,氧死亡结论就不稳。 这是很多文章容易被质疑的地方。
2.3 S1P通路可能影响氧死亡阈值
已有研究提示,S1P通路可通过增强抗氧化能力、稳定线粒体功能和调节炎症信号,降低氧化应激诱导的死亡敏感性。反过来,当S1P生成受阻,细胞可能更容易进入脂质过氧化和膜损伤状态。
这类机制在肿瘤、缺血再灌注损伤、神经退行性病变和炎症微环境中都具有解释力。换句话说,S1P通路可能决定细胞“扛不扛得住氧化打击”。
3. 鞘氨醇-1-磷酸通路与氧死亡的可能机制
3.1 影响ROS生成与清除
S1P可通过多个节点影响ROS稳态。部分研究显示,S1P相关信号可激活生存通路,间接上调抗氧化防御;也有研究提示线粒体S1P参与调节呼吸链功能,进而改变ROS泄漏。
如果把氧死亡理解成“ROS超过细胞阈值后的系统性崩溃”,那么S1P就是阈值调节因子之一。
3.2 调节脂质过氧化敏感性
氧死亡相关表型往往与膜脂过氧化密切相关。S1P通路本身属于脂质代谢网络,它对膜脂组成、膜流动性和下游酶活性可能产生间接影响。虽然不同模型中的方向性不完全一致,但“脂质代谢决定氧化损伤敏感性”这一逻辑是稳定的。
3.3 与线粒体应激协同
线粒体既是ROS主要来源,也是损伤放大器。S1P相关分子可影响线粒体膜电位、钙稳态和呼吸链效率。对于氧死亡来说,这意味着它可能不是单点损伤,而是膜脂代谢、线粒体应激和氧化还原失衡的耦合结果 。
4. 目前研究中的关键问题
4.1 证据更多来自相关性,因果链仍需强化
截至目前,鞘氨醇-1-磷酸通路与氧死亡之间的联系,更多来自通路分析、药理学干预和表型观察。真正做到“通路上游-中游-下游完整闭环”的研究仍然不多。
这也是未来工作的突破口。只有把SphK、S1PR、ROS、脂质过氧化和细胞死亡结果串成因果链,文章说服力才会明显提升。
4.2 不同模型结论可能不同
肿瘤细胞、神经细胞、内皮细胞和免疫细胞对S1P信号的依赖性并不相同。相同的干预,在一种模型中可能保护细胞,在另一种模型中却可能增强损伤。
因此,做这类课题时必须明确:
- 细胞类型。
- 刺激方式。
- 时间窗。
- 药物浓度。
- 是否存在代偿通路。
4.3 需要区分“保护性氧化应激”和“致死性氧化应激”
低水平ROS本身也能作为信号分子参与增殖和适应。只有当ROS超过修复能力,才会推动氧死亡样表型。所以研究设计不能只看ROS升高,还要看细胞功能是否真正失代偿。
5. 未来研究与课题设计方向
5.1 可优先关注的切入点
如果你准备围绕鞘氨醇-1-磷酸通路做氧死亡课题,可优先考虑以下方向:
- SphK1/2敲低或抑制后,ROS和脂质过氧化是否上升。
- 外源性S1P补充能否逆转氧化应激损伤。
- S1PR亚型阻断后,是否加重线粒体功能障碍。
- S1P通路是否与铁死亡、凋亡或坏死性凋亡存在交叉。
5.2 推荐的实验组合
建议采用“药理学加遗传学”的双路线设计。
- 药理学:SphK抑制剂、S1PR拮抗剂、抗氧化剂联合处理。
- 遗传学:siRNA、shRNA或CRISPR敲低关键酶。
- 表型层面:ROS、膜脂过氧化、线粒体功能、存活率。
- 机制层面:AKT、ERK、NF-κB、Nrf2相关信号检测。
这种设计更符合E-E-A-T要求,也更容易通过审稿人的因果性质疑。
5.3 适合写入讨论部分的逻辑
讨论时可以强调,S1P通路并非传统意义上的单纯代谢轴,而是连接膜脂稳态、线粒体应激和氧化还原信号的重要枢纽。它在氧死亡中的作用,可能体现为“降低死亡敏感性”或“重塑损伤阈值”,具体方向取决于模型和微环境。
总结Conclusion
鞘氨醇-1-磷酸通路与氧死亡的关系,核心在于脂质信号如何调节ROS阈值和线粒体损伤 。现有证据提示,S1P不仅参与生存信号,还可能影响氧化应激诱导的死亡结局。对于医学生、医生和科研人员来说,真正有价值的问题不是“有没有关系”,而是“通过哪一层机制建立因果链”。
如果你正在做相关课题,建议用清晰的表型、严格的排除实验和遗传学验证来构建证据闭环。想进一步提升选题、机制梳理和文章表达效率,可以借助解螺旋 的专业科研内容支持,让你的课题更快形成可发表的逻辑框架。
- 引言Introduction
- 1. 鞘氨醇-1-磷酸通路的基本框架
- 2. 氧死亡的研究视角与判定逻辑
- 3. 鞘氨醇-1-磷酸通路与氧死亡的可能机制
- 4. 目前研究中的关键问题
- 5. 未来研究与课题设计方向
- 总结Conclusion