17
 分享
引言Introduction
Raptor/mTORC1通路是营养感知、自噬抑制和细胞生长调控的核心轴。对医学生、医生和科研人员来说,真正难点不在“知道mTOR”,而在于理解Raptor如何决定mTORC1活性、如何影响ULK1与自噬起始,以及实验中该怎么读懂结果。
1. Raptor/mTORC1通路是什么
1.1 mTORC1的组成与Raptor的定位
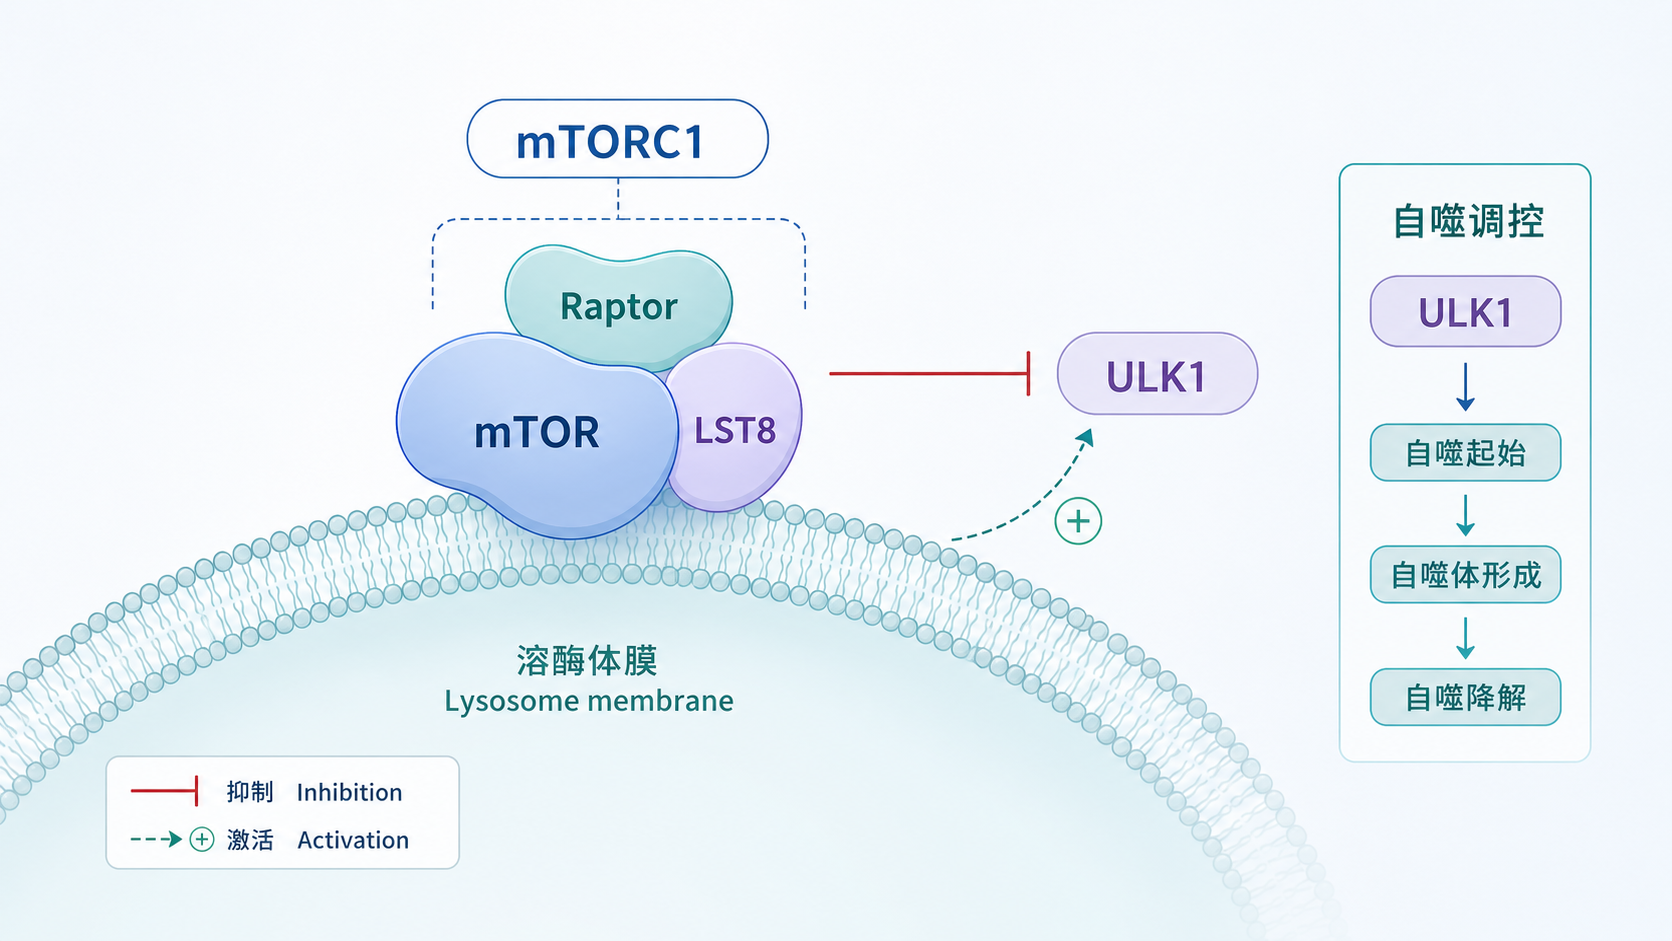
mTOR是丝氨酸/苏氨酸激酶,属于PIKK家族。它可形成两个复合物,mTORC1和mTORC2。Raptor是mTORC1的关键支架蛋白,也是mTORC1识别底物的重要组成部分。
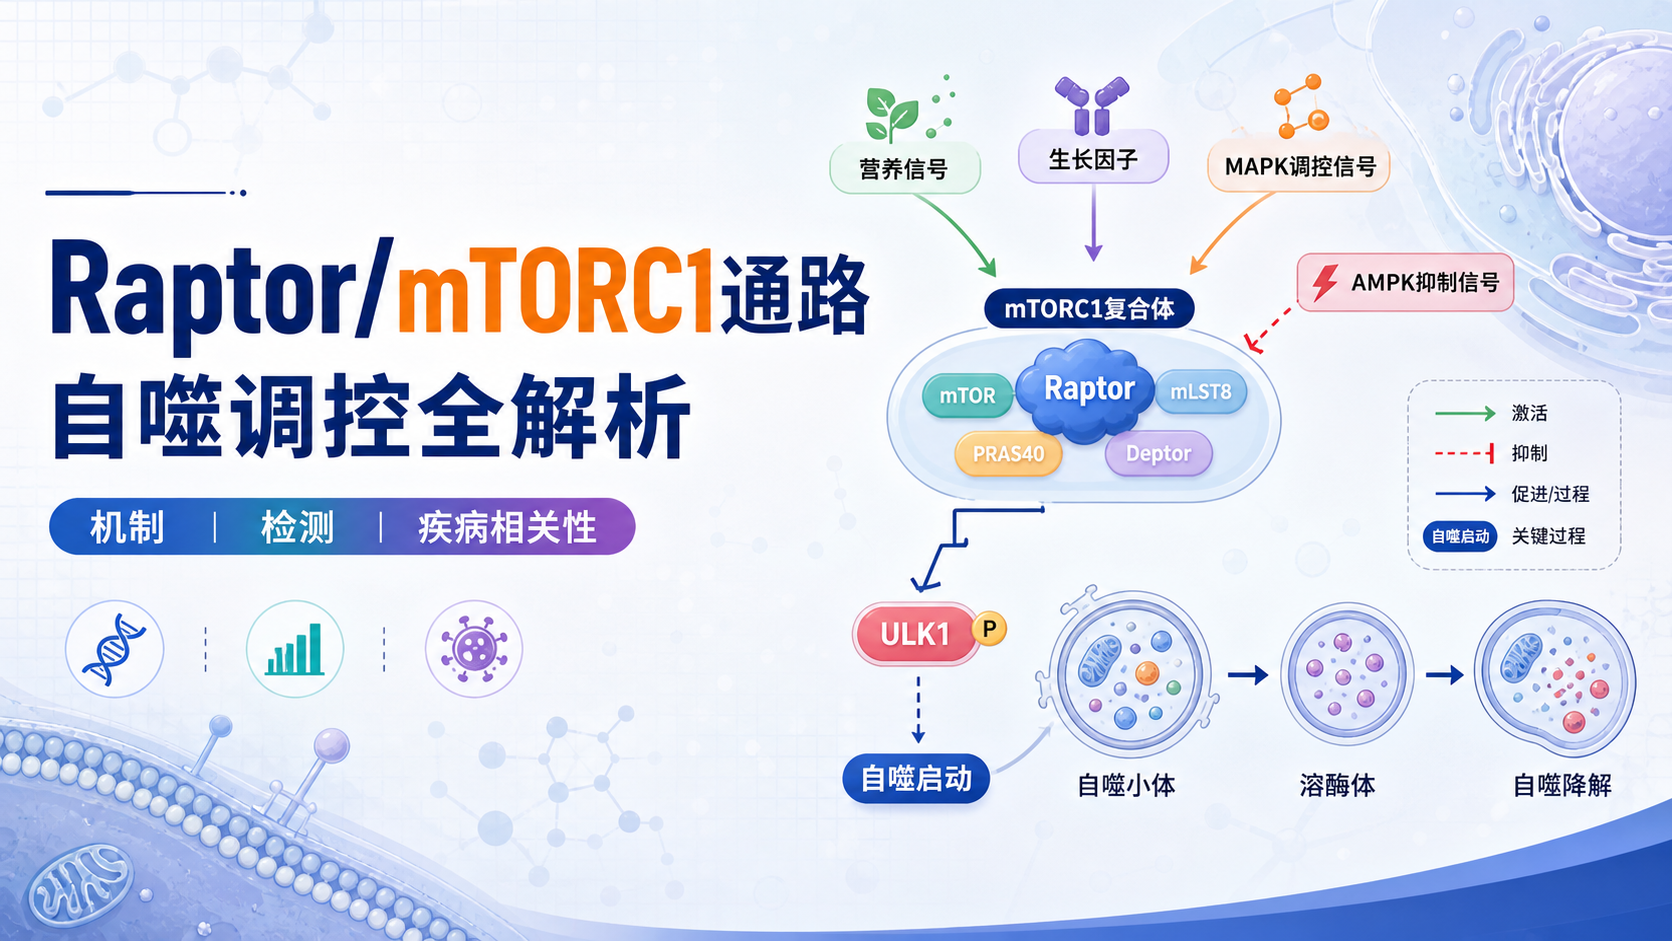
mTORC1通常由mTOR、Raptor、PRAS40、mLST8和DEPTOR组成。这个复合物对雷帕霉素敏感。相比之下,mTORC2由mTOR、Rictor、SIN1、Protor-1、mLST8和DEPTOR组成,急性雷帕霉素处理一般不敏感。
Raptor的意义在于两点。
- 维持mTORC1复合物稳定。
- 帮助mTORC1招募并磷酸化下游底物,如S6K1、4E-BP1和ULK1。
没有Raptor,mTORC1的“信号整合”和“底物选择”能力都会明显下降。
1.2 mTORC1为什么与自噬直接相关
mTORC1是自噬的经典负调控因子。营养充足时,mTORC1活跃,直接抑制ULK1复合物。饥饿或应激时,mTORC1活性下降,ULK1解除抑制,自噬启动。
已知mTORC1可通过磷酸化ULK1的Ser637和Ser757,以及Atg13的Ser258,抑制自噬起始。这意味着Raptor/mTORC1通路不是“旁观者”,而是自噬开关的上游核心。
在肿瘤、代谢病和神经退行性疾病研究中,这条通路都非常重要,因为它同时牵动蛋白合成、能量代谢、细胞存活和细胞清除系统。
2. Raptor如何接收上游信号
2.1 生长因子和营养信号如何激活mTORC1
mTORC1不是恒定开启的。它需要整合多种信号。最典型的是生长因子、氨基酸和能量状态。
生长因子和胰岛素样信号主要通过I类PI3K-AKT轴调节mTORC1。AKT抑制TSC1/TSC2复合物,解除其对mTORC1的抑制。这样,mTORC1活性上升。这一步常是肿瘤细胞高增殖表型的重要分子基础。
氨基酸则主要通过RAG小GTP酶异二聚体促进mTORC1在溶酶体膜定位。定位正确后,mTORC1更容易被激活。也就是说,营养不仅“供能”,还负责把mTORC1送到正确的位置。
2.2 AMPK、MAPK和其他通路如何抑制或增强Raptor/mTORC1
能量不足时,AMPK被激活。AMPK可通过磷酸化TSC2抑制mTORC1,也可直接磷酸化Raptor,降低mTORC1活性。这是细胞在低ATP状态下避免过度合成代谢的保护机制。
此外,RAS/MAPK通路也可促进mTORC1激活。Hippo和Wnt通路同样参与调控。实际研究中,mTORC1往往不是单一路径驱动,而是多个网络叠加的结果。
因此,看到mTORC1升高时,不能只盯着mTOR本身,还要同步考虑Raptor、TSC1/2、RAG、AMPK和AKT的状态。
3. Raptor/mTORC1如何调控自噬
3.1 ULK1复合物是自噬启动的第一道门
自噬启动依赖ULK1复合物。该复合物包含ULK1、Atg13、FIP200和Atg101。营养充足时,mTORC1与ULK1复合物作用,抑制其激酶活性。饥饿和应激时,mTORC1活性下降,ULK1通过自磷酸化激活,随后磷酸化Atg13、FIP200和Atg101,自噬开始。
所以,Raptor/mTORC1对自噬的控制,本质上是对ULK1复合物“开或关”的控制。
这一步之后,自噬过程继续进入成核、延伸和闭合阶段。mTORC1还能影响PI3KC3复合体I、WIPI2、LC3脂化和TFEB转录程序,因此它的调控并不止于起始阶段。
3.2 成核、延伸和溶酶体生物发生也受mTORC1影响
mTORC1可通过磷酸化Atg14、AMBRA1和NRBF2,直接抑制PI3KC3-CI活性,从而影响自噬体成核。它还可通过WIPI2和p300调节自噬体延伸及LC3膜结合。
更重要的是,mTORC1还能调控TFEB。TFEB是溶酶体生物发生和自噬基因转录的关键因子。当mTORC1活跃时,TFEB相关转录程序被压制,自噬和溶酶体系统整体降档。
这解释了为什么Raptor/mTORC1通路异常时,细胞内蛋白稳态、线粒体质量控制和溶酶体功能都会同时受影响。
4. 研究中如何检测Raptor/mTORC1通路
4.1 常用检测指标
做机制研究时,不能只看“mTOR表达量”。更关键的是看活性和下游效应。
常用指标包括:
- Raptor蛋白水平和复合物状态。
- p-mTOR。
- p-S6K1和p-4E-BP1。
- p-ULK1。
- LC3-II/LC3-I比值。
- p62水平。
- TFEB定位或相关基因表达。
其中,LC3-II升高和p62下降通常提示自噬增强,但必须结合通量实验判断。
4.2 结果解读要避免的常见误区
很多初学者会把“LC3-II升高”直接解释为“自噬增强”。这并不完整。LC3-II升高也可能来自自噬体降解受阻。
更稳妥的判断方式是:
- 同时检测p62。
- 结合自噬抑制剂或溶酶体抑制剂做通量分析。
- 观察ULK1、p-S6K1、p-4E-BP1等上游与下游节点。
- 必要时加入电镜或GFP-LC3斑点观察。
只有把“生成”和“降解”两个环节都看清,才能真正解释Raptor/mTORC1通路对自噬的影响。
5. 研究前沿与疾病相关性
5.1 肿瘤、代谢病和神经疾病中的意义
Raptor/mTORC1通路在肿瘤研究中最受关注。原因很直接。它控制细胞生长、蛋白合成、脂质合成和营养适应。很多肿瘤细胞依赖mTORC1维持高代谢和高增殖。
在代谢病中,mTORC1长期异常激活与胰岛素抵抗、脂代谢紊乱相关。
在神经系统疾病中,自噬失衡会影响错误折叠蛋白和受损线粒体清除。因此,Raptor/mTORC1通路的研究价值,已经远超单纯的“自噬通路”本身。
5.2 当前研究热点
近年的研究重点主要集中在以下几个方向:
- mTORC1在溶酶体膜上的空间调控。
- Raptor与底物识别机制。
- mTORC1和mTORC2的交叉调控。
- 代谢重编程与自噬通量的耦合。
- 雷帕霉素及新型mTOR抑制剂的选择性和耐药问题。
其中,Raptor并不是简单“附属蛋白”,而是决定mTORC1信号精确性的关键节点。 未来如果能解析Raptor介导的底物招募和构象变化,将有助于解释许多“同样抑制mTOR,却产生不同生物学结果”的现象。
5.3 从论文设计角度看,怎样把通路做扎实
对于科研人员来说,Raptor/mTORC1通路文章最好具备三层证据。
- 第一层,表达变化。Raptor、p-mTOR、p-S6K1、p-ULK1是否变化。
- 第二层,功能变化。自噬、增殖、迁移、凋亡是否变化。
- 第三层,因果验证。用雷帕霉素、MHY1458、3-MA等进行回补或逆转。
只有把“分子变化、表型变化、救援实验”三者连起来,文章说服力才够强。
在实际选题和写作中,解螺旋可帮助研究者梳理Raptor/mTORC1通路的证据链,快速建立从机制到表型的完整逻辑,减少实验设计走偏和结果解读不清的问题。
总结Conclusion
Raptor/mTORC1通路是连接营养感知、细胞生长和自噬抑制的关键枢纽。Raptor负责组织mTORC1复合物并影响底物识别,mTORC1则通过ULK1、PI3KC3复合体和TFEB等节点,系统性压制自噬。理解这条通路,核心不是背概念,而是掌握“上游信号、复合物装配、下游效应、实验验证”四个层次。
如果你正在做自噬、肿瘤代谢或mTOR相关研究,建议从Raptor、p-mTOR、p-ULK1、LC3和p62这条主线切入,先建立清晰因果链,再扩展到机制深挖。想进一步提升选题质量、机制图规范性和论文表达效率,可以借助解螺旋进行系统梳理与内容优化。
- 引言Introduction
- 1. Raptor/mTORC1通路是什么
- 2. Raptor如何接收上游信号
- 3. Raptor/mTORC1如何调控自噬
- 4. 研究中如何检测Raptor/mTORC1通路
- 5. 研究前沿与疾病相关性
- 总结Conclusion