21
 分享
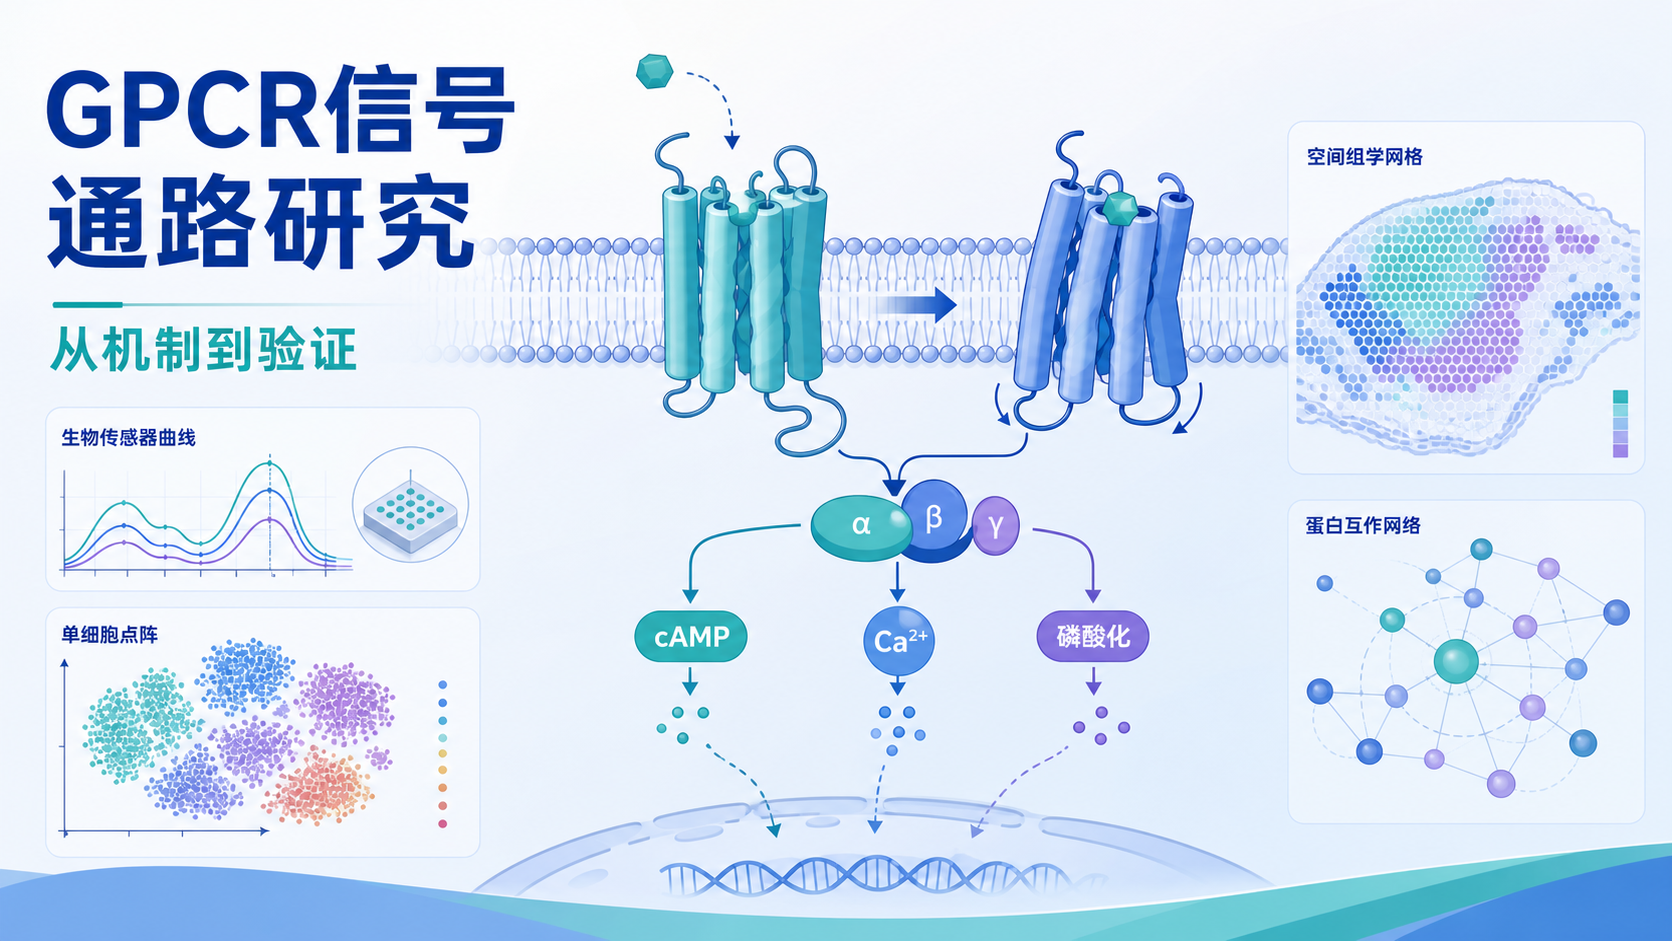
引言Introduction
G蛋白偶联受体通路是药理学、肿瘤学和神经科学中的高频研究对象,但很多项目卡在“信号有变化,却说不清机制”。真正的难点不在于观察到表型,而在于准确定位受体、G蛋白、下游效应器之间的因果链条。 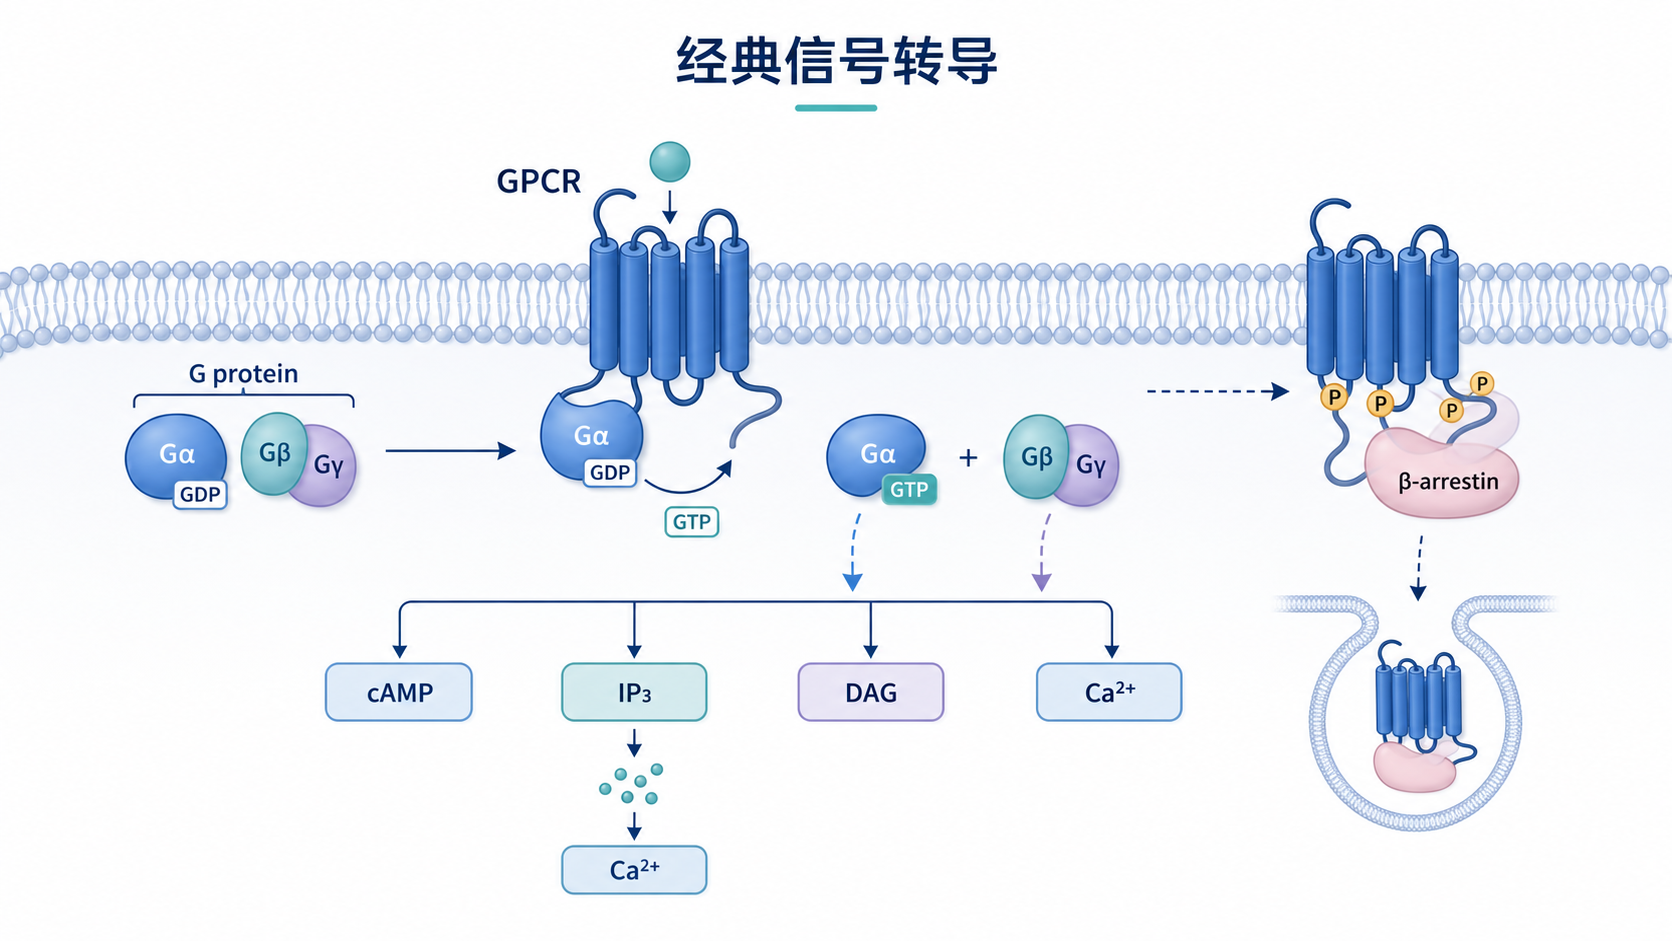
1. G蛋白偶联受体通路为什么值得研究
1.1 它是经典的膜信号转导入口
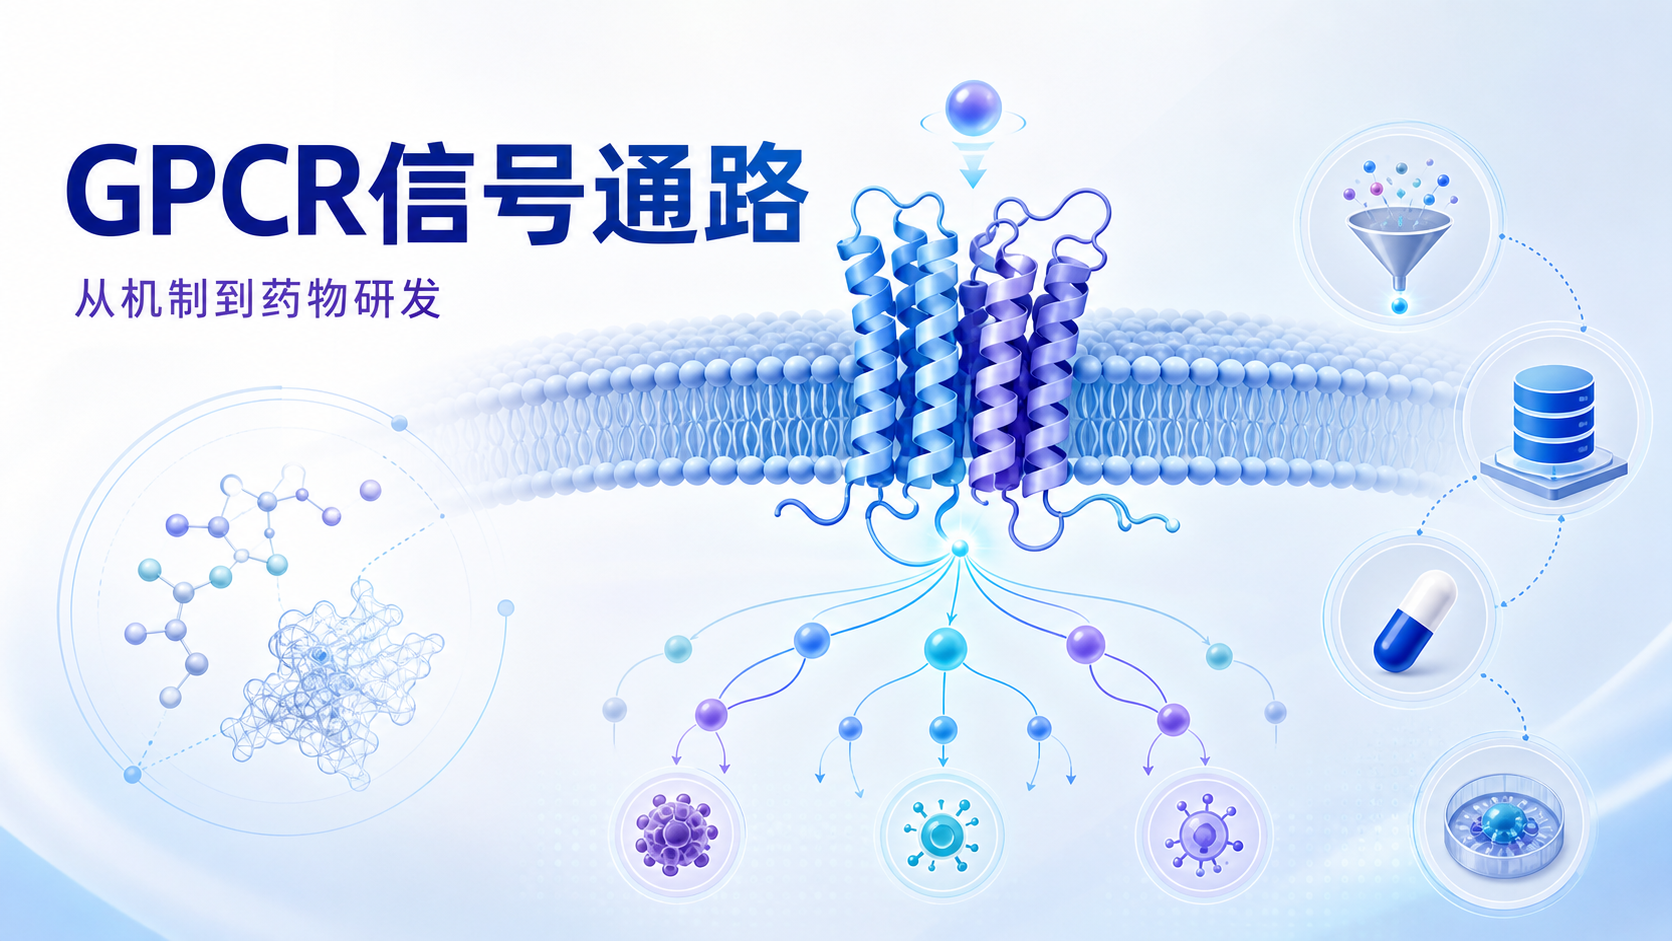
G蛋白偶联受体,GPCR,是细胞膜上最重要的信号入口之一。它们能感知激素、神经递质、趋化因子、脂质分子和部分代谢物。从受体激活到下游cAMP、IP3、DAG、钙离子和MAPK变化,GPCR几乎覆盖了大多数细胞应答场景。
从研究设计角度看,GPCR的优势很明确。
- 场景广泛。 神经、免疫、代谢、肿瘤、心血管都能用。
- 机制通用。 可连接G蛋白、β-arrestin、第二信使和转录改变。
- 转化价值高。 这是药物开发最成熟的靶点家族之一。
1.2 它适合做机制而不只是相关性
很多课题只停留在“受体高表达,表型增强”层面。这样的故事不够完整。GPCR研究的关键,是把“刺激、受体激活、G蛋白耦联、效应器变化、表型输出”串起来。 这样文章才具备机制闭环。
对医学生和科研人员来说,GPCR研究尤其适合用于解释:
- 配体刺激后为何出现快速反应。
- 信号放大为何能引起明显表型。
- 同一受体为何在不同细胞中产生不同结果。
2. GPCR通路的核心机制框架
2.1 从受体构象变化到G蛋白激活
GPCR通常由7次跨膜螺旋构成。配体结合后,受体构象改变,促进异源三聚体G蛋白活化。随后Gα亚基与Gβγ亚基解离,分别调控下游通路。这是GPCR通路最基础、也是最常被验证的第一步。
常见G蛋白亚型包括:
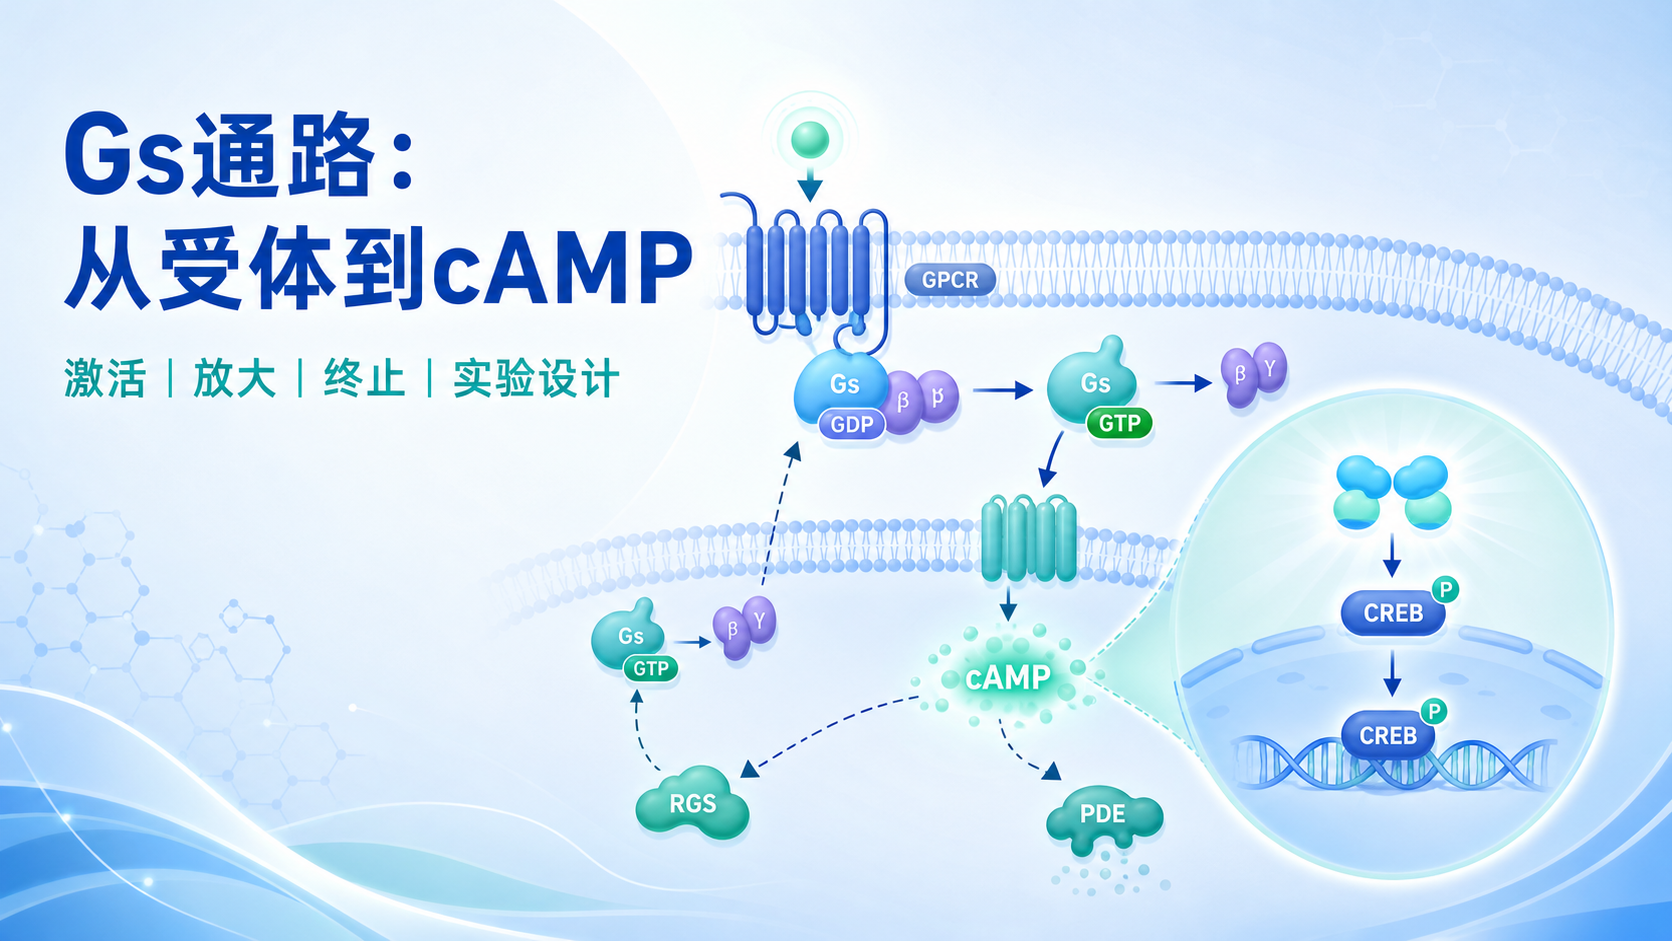
- Gs,促进腺苷酸环化酶活性,上调cAMP。
- Gi/o,抑制腺苷酸环化酶,降低cAMP。
- Gq/11,激活PLCβ,生成IP3和DAG。
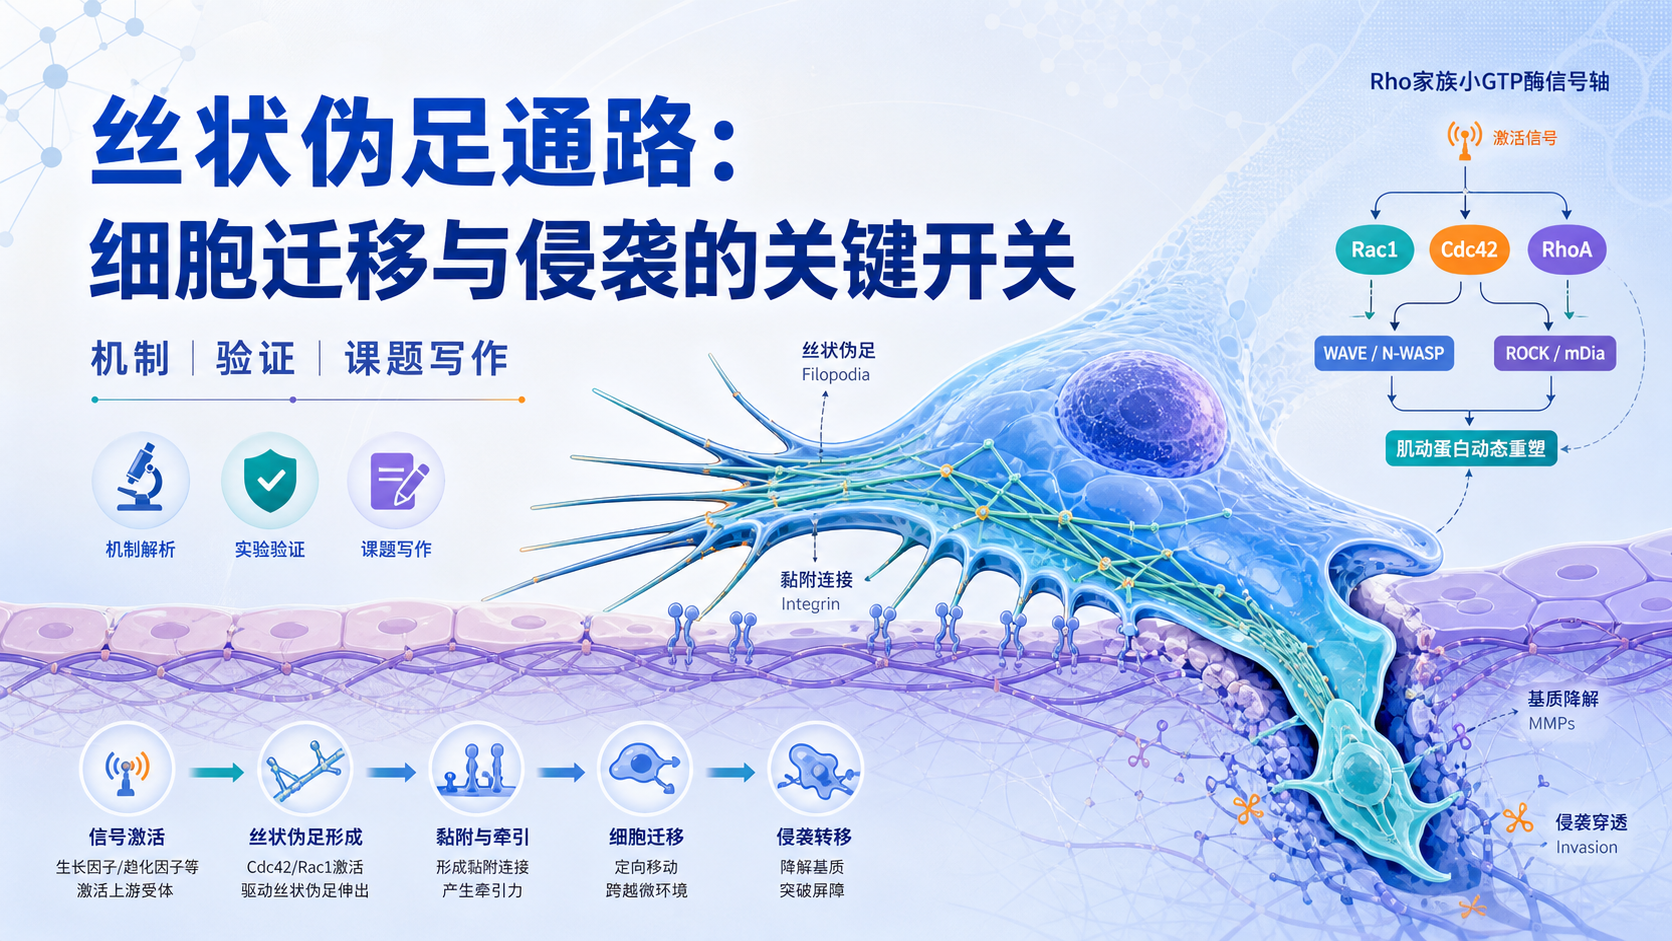
- G12/13,常与Rho家族小GTP酶相关。
2.2 经典第二信使与偏向性信号
GPCR并不只走单一路径。同一受体可在不同细胞背景下偏向激活不同效应器。 这就是偏向性信号转导,也是近年药理研究的重要方向。
常见读出包括:
- cAMP水平变化。
- 胞内Ca2+瞬时升高。
- PKA、PKC、ERK磷酸化。
- β-arrestin募集。
- 受体内吞和再循环。
这意味着,只测一个下游指标,往往不足以证明GPCR通路被完整激活。 至少需要同时考虑受体、G蛋白和效应器三层证据。
3. 经典技术:如何证明GPCR通路真的被激活
3.1 配体刺激和药理学阻断
最基础的方法是配体刺激实验。加入激动剂或拮抗剂后,观察细胞反应是否符合预期。若要提高可信度,通常还要加入以下设计:
- 剂量梯度。
- 时间梯度。
- 拮抗剂竞争实验。
- 受体敲低或敲除实验。
- 空载体或阴性对照。
只有“刺激有效”不够,必须证明这种效应依赖目标受体。
3.2 cAMP、钙流和磷酸化检测
针对不同GPCR亚型,检测策略不同。
- Gs/Gi通路,可测cAMP。
- Gq通路,可测Ca2+流。
- 下游整合反应,可测ERK、AKT、CREB磷酸化。
常用方法包括ELISA、荧光探针、发光报告系统和Western blot。对于时间分辨要求高的场景,发光和活细胞成像通常优于终点法。因为GPCR信号往往是秒到分钟级别的动态变化。
3.3 受体表达与定位验证
GPCR研究容易出现“信号变了,但其实是表达量变了”的问题。为了避免逻辑混乱,至少要补充:
- qPCR或Western验证受体表达。
- 免疫荧光观察膜定位。
- 细胞表面生物素化检测膜蛋白水平。
- 流式或ELISA检测表面受体。
如果受体没有正确定位到细胞膜,再强的刺激也难以解释为真实的GPCR通路激活。
4. 前沿技术:从“有没有反应”走向“谁在参与”
4.1 生物传感器让动态信号可视化
近年来,GPCR研究越来越依赖实时传感器。典型方向包括cAMP传感器、Ca2+探针、β-arrestin招募系统和G蛋白活化报告系统。它们的优势是可以把原来静态的终点检测,升级为动态轨迹分析。
这类技术的价值在于,它能区分信号峰值、持续时间和恢复速度。 而这些参数,往往比单次检测更能说明机制差异。
4.2 单细胞与空间组学帮助解释异质性
GPCR通路的一个现实问题是细胞异质性。相同配体刺激后,不同细胞可能出现不同幅度的cAMP或pERK变化。单细胞RNA测序、空间转录组和高内涵成像,可以帮助解释这种差异。
在科研设计中,这类技术适合回答:
- 哪一类细胞真正响应刺激。
- 受体高表达是否等于功能活化。
- 通路激活是否伴随特定细胞状态转变。
4.3 蛋白组学和互作组学用于找机制
如果课题已经确认GPCR通路被激活,但不知道关键中介是谁,就需要做机制扩展。此时蛋白组学和互作组学非常有价值。它们能帮助你从“已知受体”走向“未知效应器”。
可关注的方向包括:
- 受体磷酸化位点。
- β-arrestin相关复合物。
- 下游激酶网络变化。
- 蛋白互作重塑。
对于这类研究,若要进一步提高数据质量,建议结合免疫共沉淀、质谱和功能回补实验。这样可以把“相关”推进到“直接互作”和“功能必需”。
5. 设计GPCR课题时最容易犯的错误
5.1 只看表达,不看功能
很多文章只证明受体升高,随后就直接推断通路激活。这个逻辑是不够的。GPCR是功能受体,关键在于活化状态,不是单纯表达量。
至少要回答三个问题。
- 受体是否表达。
- 受体是否在膜上。
- 受体是否真的激活了下游信号。
5.2 只做单一指标
只测pERK,不能证明全部GPCR通路。只测cAMP,也不能解释所有受体亚型。不同受体耦联的G蛋白不同,实验设计必须与受体类型匹配。
5.3 忽略细胞背景
同一个GPCR在不同细胞中会有不同输出。原因包括:
- G蛋白表达谱不同。
- GRK和β-arrestin水平不同。
- 膜脂环境不同。
- 下游激酶网络不同。
这也是为什么GPCR研究要强调模型选择。细胞系不是越常见越好,而是要与问题匹配。
6. 如何把GPCR研究做成完整故事
6.1 推荐的研究路径
一个更稳妥的课题框架通常是:
- 先确认受体与表型相关。
- 再证明配体刺激后通路激活。
- 接着验证G蛋白亚型。
- 然后找到下游效应器。
- 最后用抑制剂、突变体或敲除实验做因果验证。
这个顺序符合E-E-A-T意义上的“证据递进”。每一步都在缩小不确定性。
6.2 数据组合比单一结果更有说服力
高质量GPCR文章通常不会只放一张信号图,而是会同时提供:
- 表达证据。
- 定位证据。
- 动态信号证据。
- 机制阻断证据。
- 表型恢复证据。
当这些数据彼此一致时,通路故事才是闭合的。
7. 借助专业工具提高GPCR研究效率
7.1 研究中的核心痛点
GPCR课题常见的痛点有三个。
- 受体类型多,信号分支复杂。
- 实验指标多,但很难快速筛到关键路径。
- 数据零散,难以形成完整故事。
7.2 解螺旋如何帮助快速搭建研究框架
如果你正在做GPCR通路研究,前期最耗时的往往不是实验本身,而是文献梳理、机制定位和数据链条设计。解螺旋可以帮助研究者更快梳理受体亚型、信号分支和实验路径,减少走弯路。 对于医学生、医生和科研人员来说,这类工具尤其适合用于课题立项、开题和文章设计。
总结Conclusion
G蛋白偶联受体通路之所以经典,是因为它兼具基础研究价值和临床转化潜力。要做出高质量研究,不能只停留在表达变化,而要围绕“受体活化、G蛋白耦联、第二信使、下游效应器和表型”构建完整证据链。把经典实验与前沿动态监测、组学和互作分析结合起来,才更容易产出有机制深度的成果。 如果你希望更高效地搭建GPCR研究框架,欢迎使用解螺旋 ,让选题、设计和文献梳理更快一步。

- 引言Introduction
- 1. G蛋白偶联受体通路为什么值得研究
- 2. GPCR通路的核心机制框架
- 3. 经典技术:如何证明GPCR通路真的被激活
- 4. 前沿技术:从“有没有反应”走向“谁在参与”
- 5. 设计GPCR课题时最容易犯的错误
- 6. 如何把GPCR研究做成完整故事
- 7. 借助专业工具提高GPCR研究效率
- 总结Conclusion