15
 分享
引言Introduction
伪足形成是细胞迁移、侵袭和免疫应答中的核心过程,但其分子机制复杂,涉及骨架重塑、膜动力学和多条信号通路。对医学生、医生和科研人员而言,真正的难点不在于“知道有伪足”,而在于如何把表型准确对应到关键通路和核心分子 。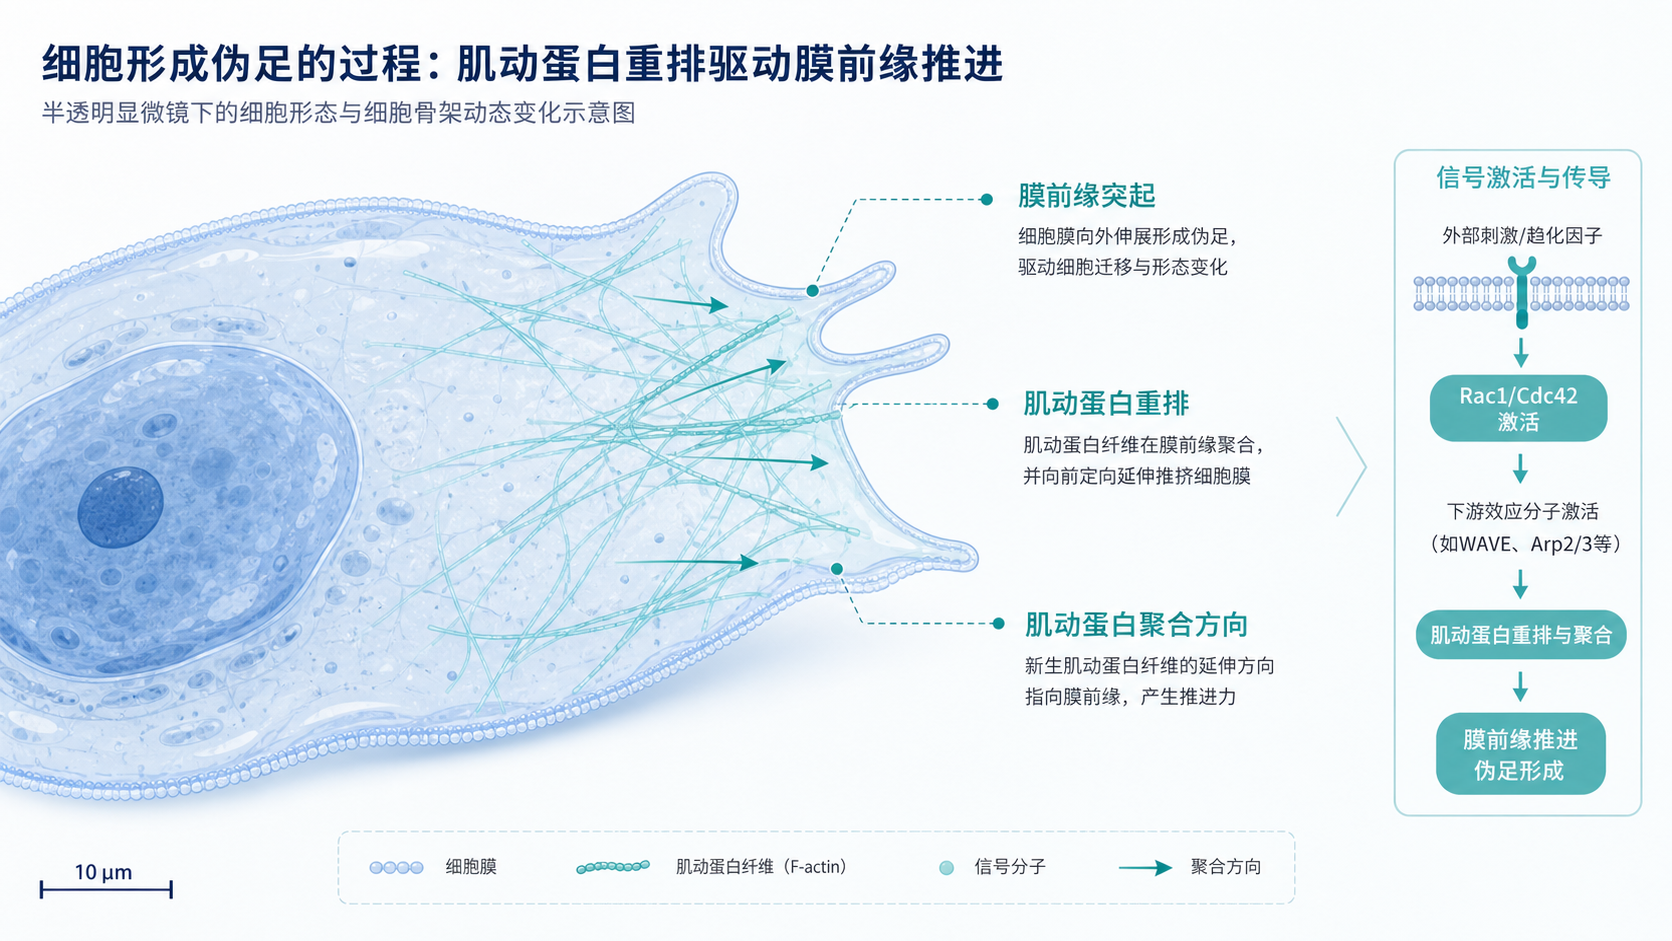
1. 伪足形成的基础概念与研究价值
1.1 伪足是什么
伪足是细胞在运动、吞噬、黏附和环境感知时形成的膜性突起结构。常见类型包括片状伪足、丝状伪足和侵袭性伪足。它们并非独立器官,而是细胞骨架、膜脂和信号网络协同作用的结果 。
从研究视角看,伪足不是单一分子现象,而是典型的“表型-通路-分子”链条。一个细胞是否形成伪足,往往取决于上游受体是否被激活,Rho家族小GTP酶是否切换到活化状态,以及下游肌动蛋白装配是否被启动。
1.2 为什么伪足研究重要
伪足形成与肿瘤转移、免疫细胞趋化、神经元迁移和组织修复密切相关。尤其在肿瘤中,伪足样结构常提示细胞获得更强的运动能力和侵袭能力。因此,伪足形成通路研究不仅是细胞生物学问题,也是疾病机制研究的重要切口。
对实验设计而言,伪足表型常可作为机制探索的入口。先观察细胞是否出现突起、铺展或迁移增强,再结合通路抑制剂、RNA干扰或磷酸化检测,通常能较快锁定候选机制。
2. 伪足形成的核心分子机制
2.1 肌动蛋白重塑是结构基础
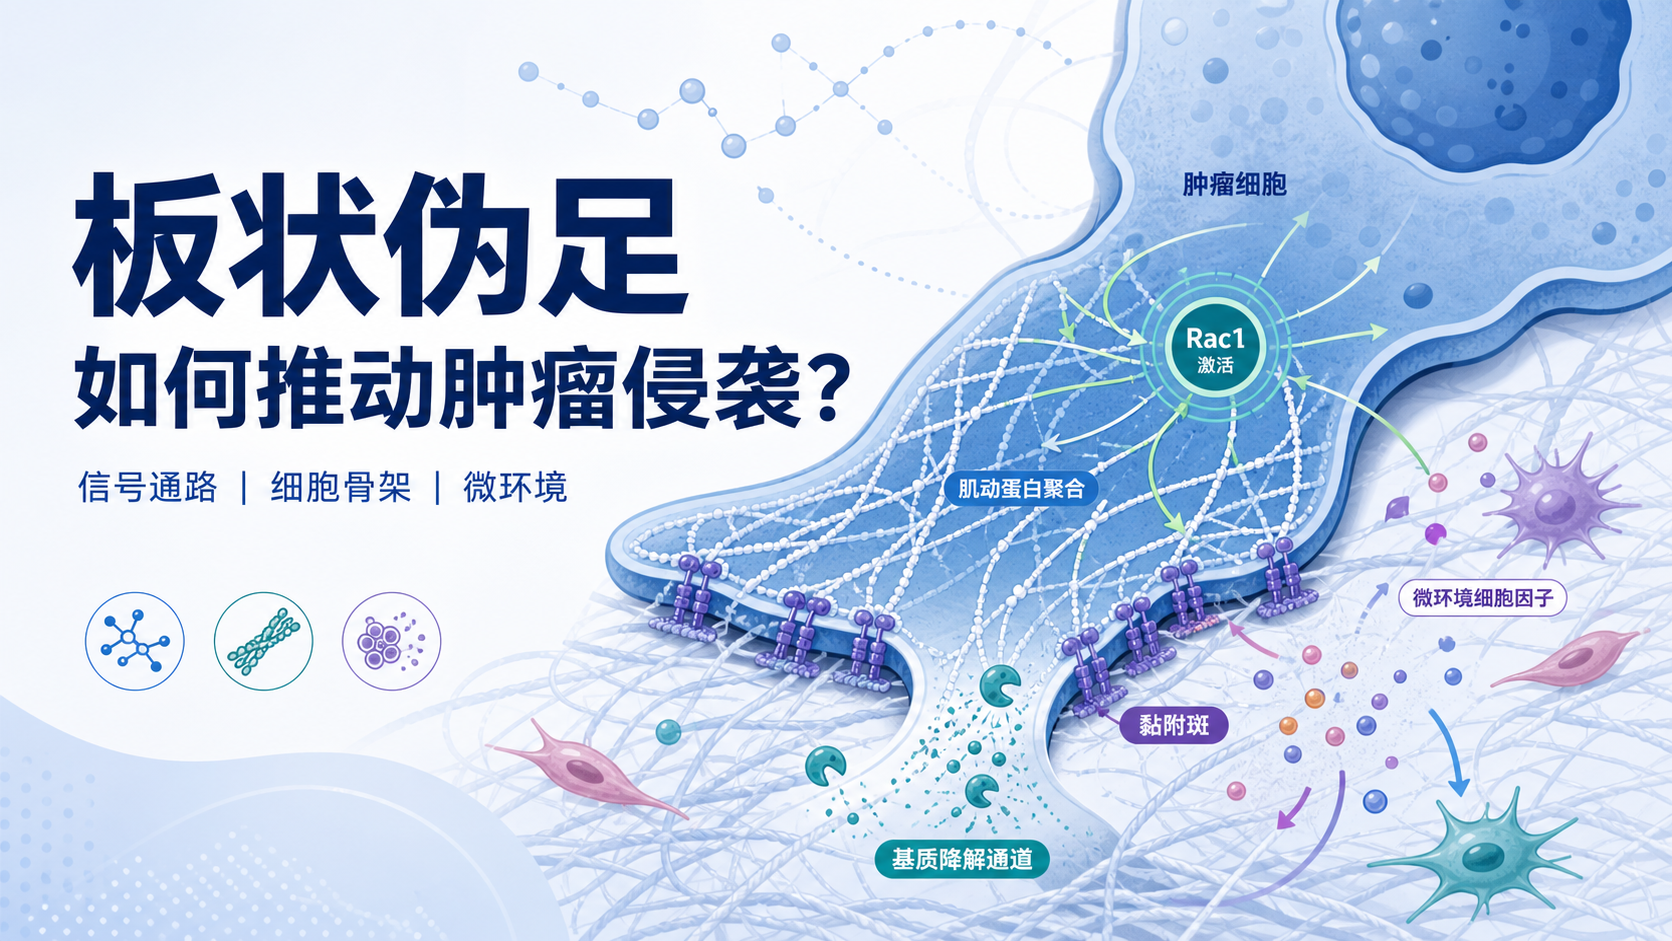
伪足形成的直接执行者是肌动蛋白骨架。前缘膜下肌动蛋白快速聚合,推动细胞膜向外延伸。这个过程依赖两类关键事件。
- 肌动蛋白单体的快速聚合。
- 骨架分支与解聚的动态平衡。
其中,Arp2/3复合体、WASP/N-WASP、cofilin、profilin等分子参与最广。Arp2/3促进分支状肌动蛋白网络形成,cofilin则通过切割和解聚旧纤维,提供新的聚合位点。两者配合,决定了伪足前缘是否足够“活跃”。
2.2 Rho家族小GTP酶是上游开关
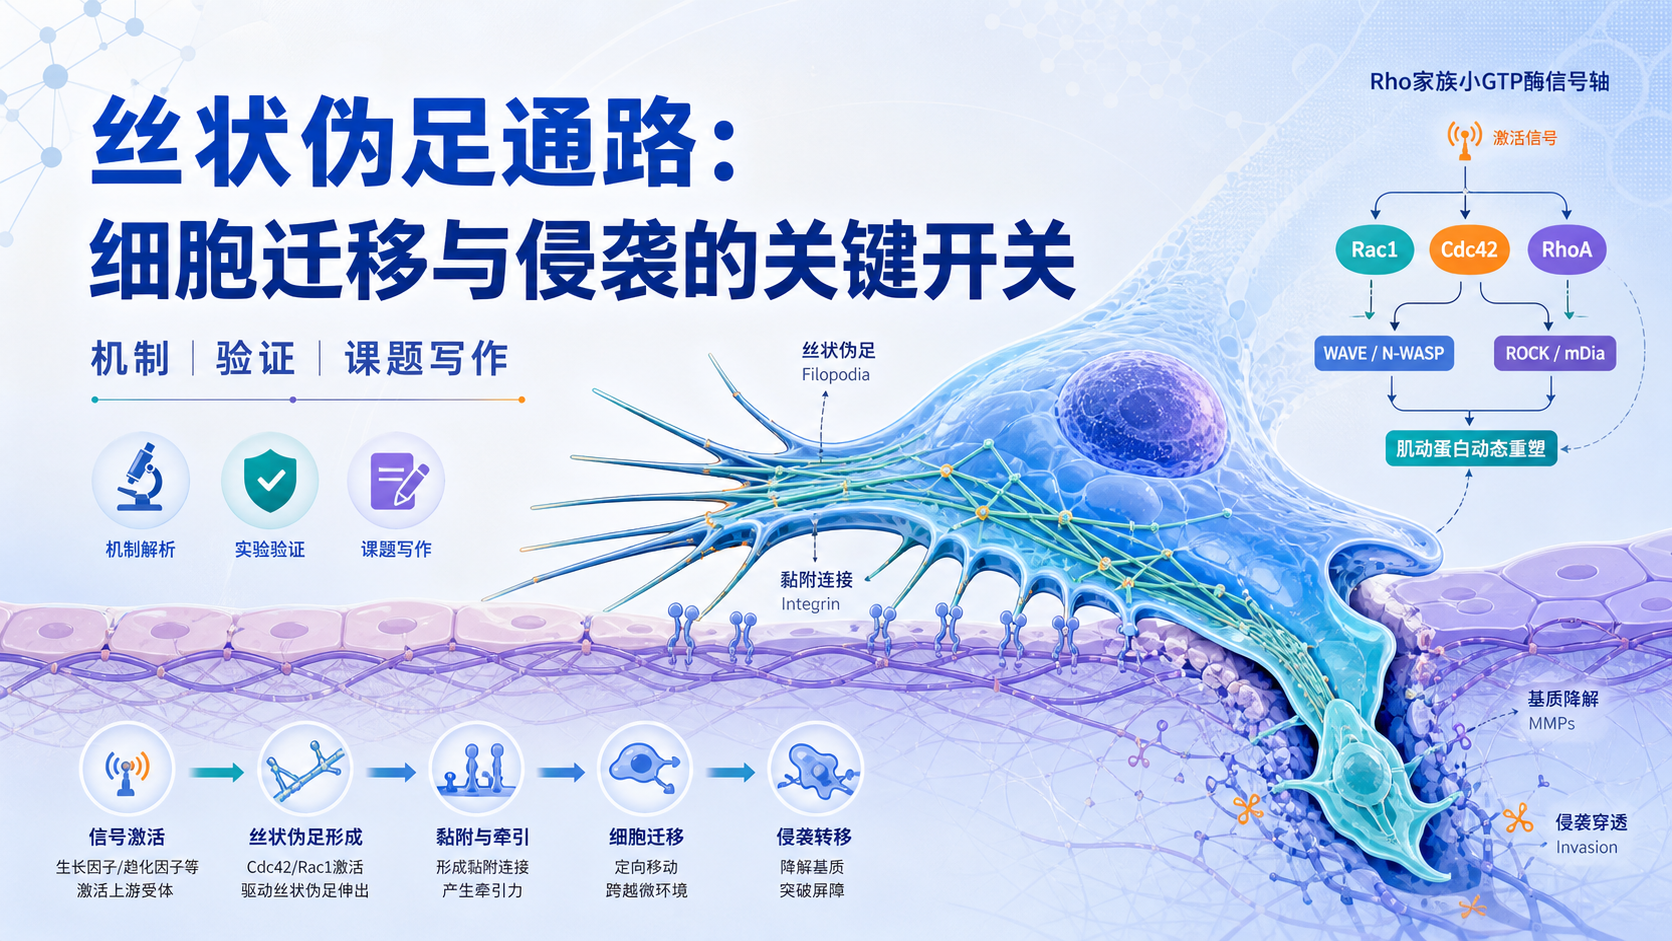
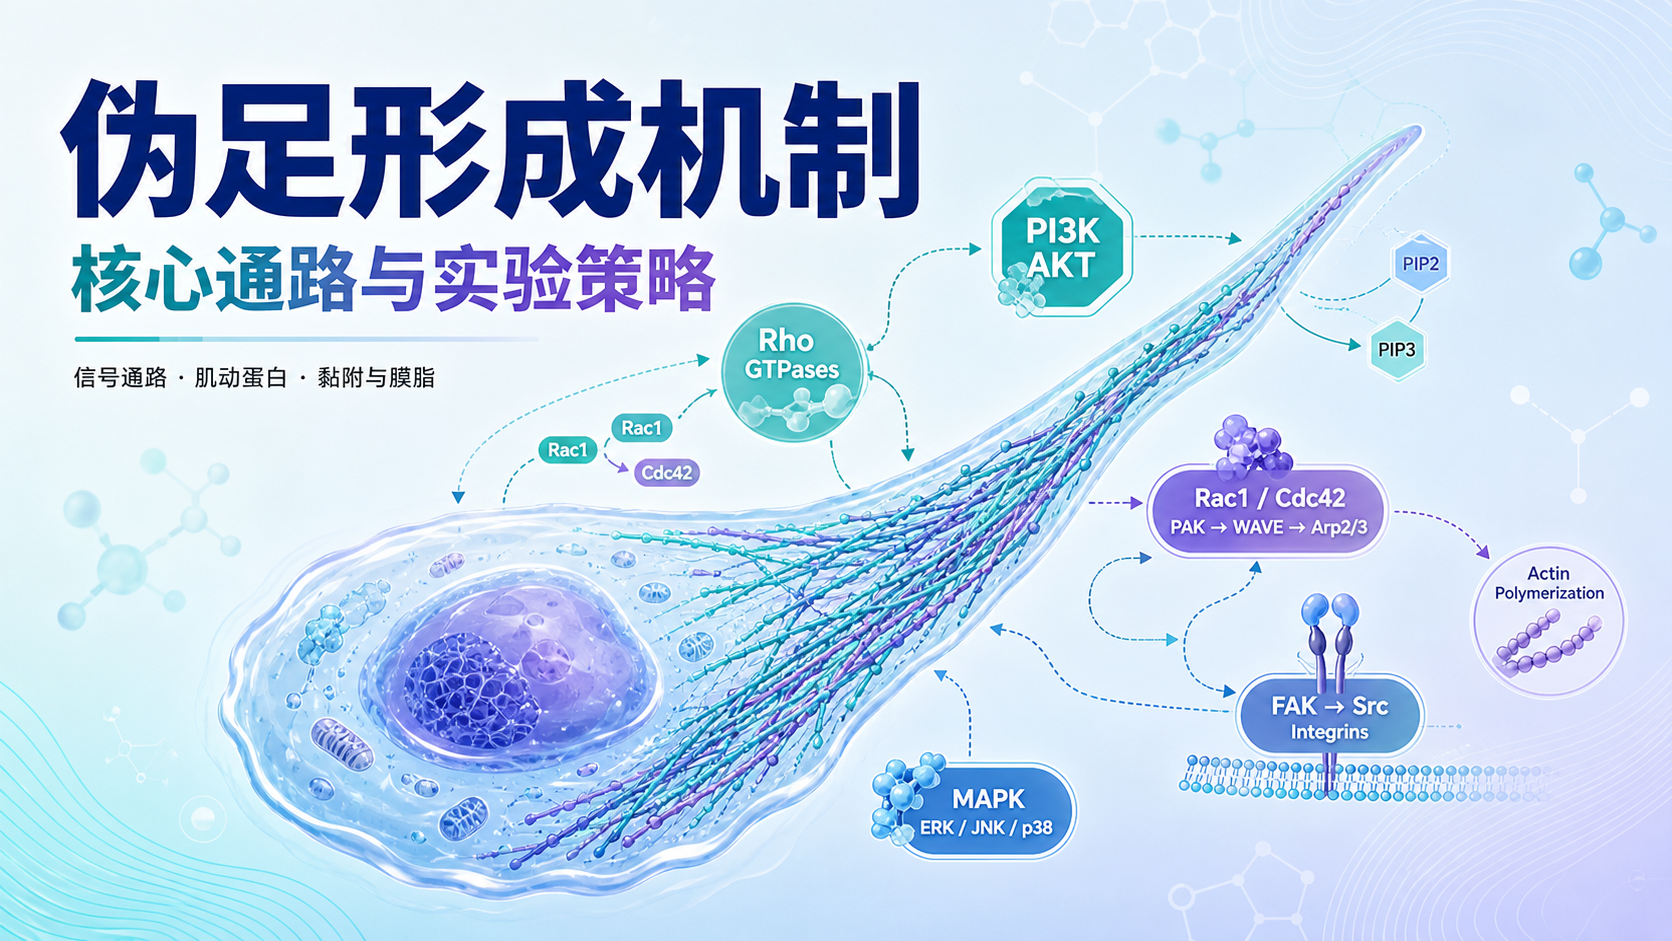
伪足形成最经典的上游调控来自Rho家族小GTP酶,尤其是Rac1、Cdc42和RhoA。它们是细胞迁移研究中的高频核心分子。
- Rac1 多与片状伪足和膜褶皱形成相关。
- Cdc42 常参与丝状伪足和细胞极性的建立。
- RhoA 更多影响应力纤维和黏附斑成熟。
这些分子并不是孤立工作的。它们通过GEF、GAP和GDIs实现精细调控。一旦Rac1或Cdc42被激活,肌动蛋白装配就会被迅速放大,伪足前缘开始形成。
2.3 黏附与膜脂同样关键
伪足不仅需要“伸出去”,还需要“粘得住”。整合素介导的细胞外基质黏附,是伪足稳定与迁移持续进行的前提。FAK、Src、Paxillin等黏附斑蛋白参与黏附信号转导,并与Rho GTP酶形成反馈回路。
同时,膜磷脂,尤其是PIP2和PIP3,在伪足前缘富集。PI3K将PIP2转化为PIP3后,可招募含PH结构域的效应蛋白,进一步促进Rac1活化和局部骨架重构。这说明伪足形成本质上是“膜信号”和“骨架信号”耦合的结果。
3. 伪足形成相关的信号通路研究进展
3.1 PI3K-AKT通路
PI3K-AKT通路是伪足形成研究中最常见的上游轴之一。受体酪氨酸激酶、整合素或趋化因子受体被激活后,可启动PI3K生成PIP3,进而促进AKT及其相关效应分子募集到膜上。
在迁移和侵袭过程中,这条通路的作用常体现在以下几个方面:
- 增强前缘膜信号聚集。
- 促进Rac1活化。
- 增加细胞存活和运动持续性。
当伪足形成增强时,PI3K-AKT轴常伴随磷酸化水平升高。 因此,p-PI3K、p-AKT常被用于判断该通路是否参与表型变化。
3.2 Rac1/Cdc42-PAK-WAVE轴
这是伪足形成最具代表性的经典通路之一。Rac1活化后,可通过WAVE复合体激活Arp2/3,推动片状伪足和膜前缘扩展。Cdc42则更常通过N-WASP影响丝状伪足与极性建立。
PAK作为下游效应激酶,在其中起到桥梁作用。它既能调节骨架,也能影响黏附斑动态。如果研究目标是“细胞是否形成更多伪足”,Rac1-Cdc42-PAK轴几乎是必须优先考虑的通路。
3.3 FAK-Src-整合素通路
细胞与基质的相互作用,会直接影响伪足的稳定性和方向性。整合素激活后,可募集FAK和Src,形成黏附斑信号中心,并进一步放大细胞运动相关信号。
这条通路的意义在于,它不只是“黏住细胞”,而是决定伪足是否能持续推进。许多实验中会观察到:
- FAK磷酸化增强。
- Src活化升高。
- Paxillin定位于前缘增强。
这些变化往往与伪足延伸、细胞铺展和迁移速度升高一致。
3.4 MAPK通路与转录重编程
MAPK家族,尤其是ERK、JNK和p38,也常参与伪足相关过程。它们一方面可影响骨架调控蛋白,另一方面可通过转录层面改变迁移相关基因表达。
在肿瘤细胞和炎症细胞中,MAPK通路常与PI3K-AKT、FAK-Src形成交叉调控。这意味着伪足形成很少由单一路径单独完成,而是多个通路共同塑造。
4. 伪足形成研究的常用实验策略
4.1 先看表型,再找通路
伪足研究最怕一开始就盲目堆分子。更合理的策略是先从表型入手,再回到通路。
常见步骤如下:
- 观察细胞形态变化,记录伪足数量、长度和方向性。
- 结合Transwell、划痕实验或3D基质侵袭模型,确认迁移/侵袭变化。
- 通过WB、IF或共聚焦检测关键通路分子的表达和定位。
- 用抑制剂或敲降验证因果关系。
4.2 关键检测指标
研究伪足形成时,常见检测指标包括:
- F-actin染色,观察骨架重排。
- Rac1、Cdc42、RhoA活性检测。
- p-FAK、p-Src、p-AKT、p-ERK水平变化。
- Arp2/3、WAVE、N-WASP、cofilin表达或定位。
- 细胞边缘膜褶皱与前缘突起数量。
如果只有迁移增强而缺少通路证据,结论通常不够完整。 反之,如果通路变化明确,并能被抑制剂逆转,机制链条就更有说服力。
4.3 如何避免机制研究“空转”
伪足研究中常见问题是只描述形态,不解释机制;或者只报通路,不验证表型。更稳妥的做法是建立闭环:
- 刺激或基因干预导致伪足增多。
- 候选通路被激活。
- 抑制后伪足减少。
- 功能实验同步下降。
这样才能把“相关”推进到“因果”。
5. 伪足形成通路研究中的常见难点
5.1 通路交叉太多
伪足形成不是单通路事件。PI3K、FAK、Rac1、MAPK之间存在明显串扰。很多实验结果看起来都“像机制”,但如果没有时间顺序、剂量梯度和阻断实验,难以判断谁在上游,谁在下游。
5.2 表型异质性大
不同细胞类型的伪足模式差异明显。肿瘤细胞、巨噬细胞、成纤维细胞和神经细胞,其伪足形态和依赖通路并不完全相同。因此,不能把某一细胞系的结论简单外推到所有模型。
5.3 需要更强的数据整合
随着组学技术普及,伪足研究越来越依赖RNA-seq、蛋白组和磷酸化组学来筛选候选通路。对于医学生和科研人员来说,真正高效的做法不是堆实验,而是把组学结果和经典通路验证结合起来。
这也是为什么很多团队会借助专业平台做文献梳理、通路筛选和机制图构建。像解螺旋 这类科研服务平台,能够帮助研究者更快整理伪足形成通路线索,减少试错成本,把更多精力放在关键验证上。
总结Conclusion
伪足形成分子机制的核心,可以概括为三层。第一层是肌动蛋白骨架重塑。第二层是Rac1、Cdc42、RhoA等小GTP酶开关。第三层是PI3K-AKT、FAK-Src、MAPK等信号通路的协同放大。伪足形成通路研究的本质,是把“形态变化”转化为“可验证的分子链条”。
对科研设计而言,建议遵循“先表型,后通路,再分子”的思路。先确认伪足是否真的发生改变,再筛选关键通路,最后用抑制剂、敲降和磷酸化检测完成闭环验证。若你希望更高效地完成通路梳理、机制框架搭建和图示表达,可以借助解螺旋 提供的科研支持,让伪足形成相关研究更快进入可发表、可转化的轨道。

- 引言Introduction
- 1. 伪足形成的基础概念与研究价值
- 2. 伪足形成的核心分子机制
- 3. 伪足形成相关的信号通路研究进展
- 4. 伪足形成研究的常用实验策略
- 5. 伪足形成通路研究中的常见难点
- 总结Conclusion