23
 分享
引言Introduction
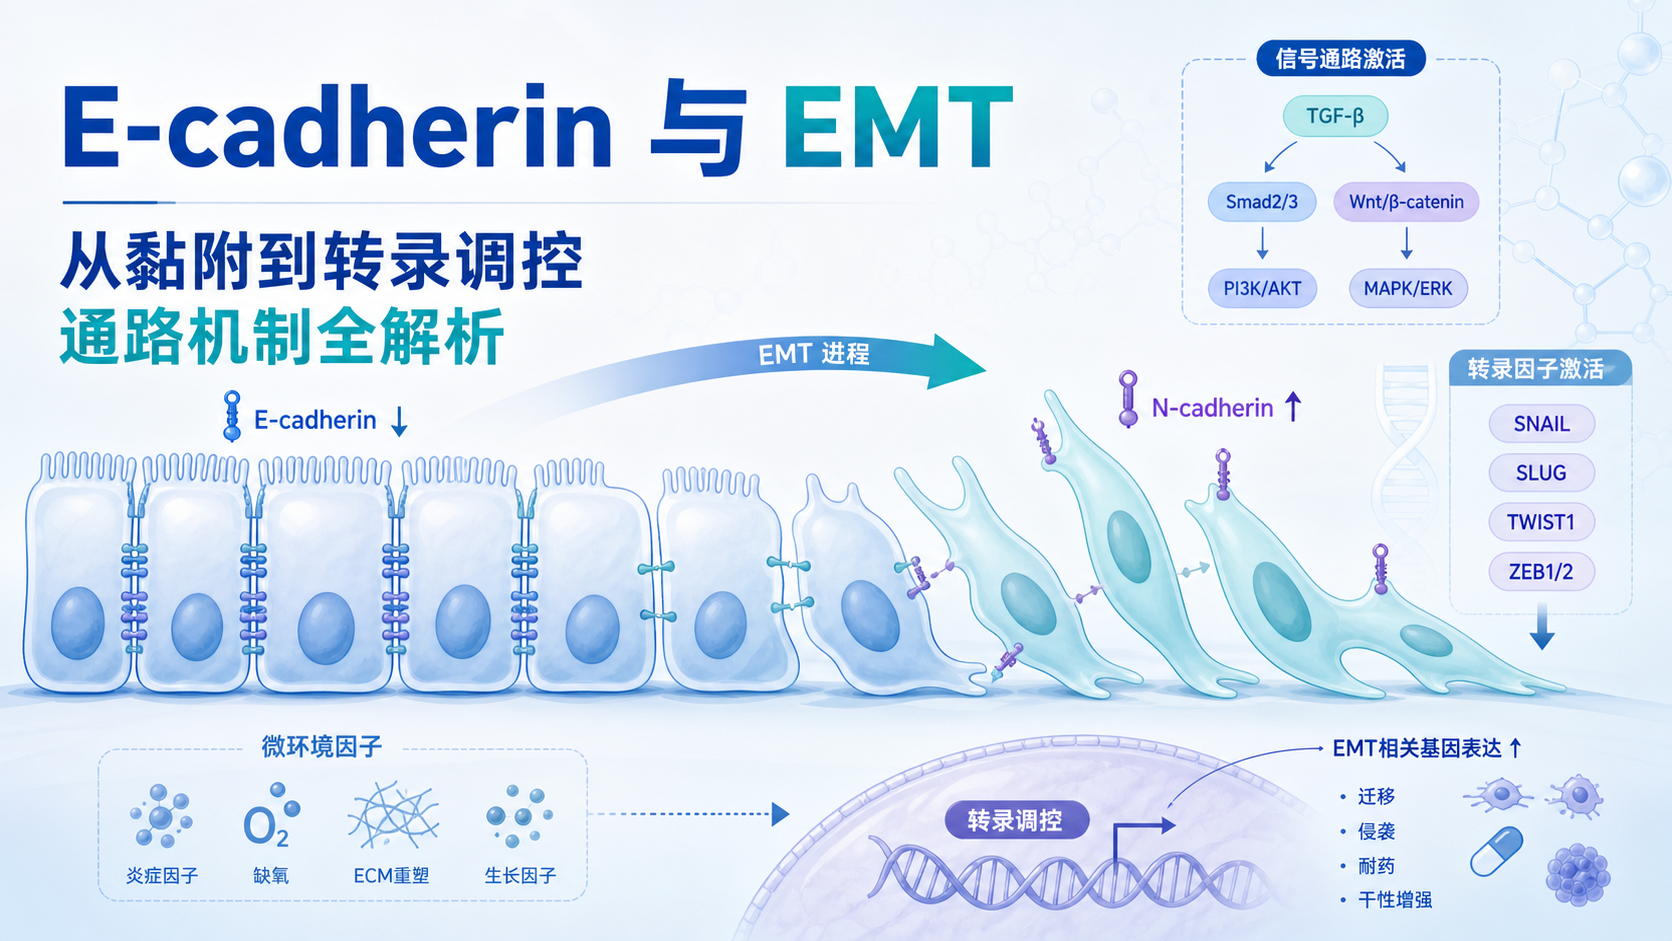
E-cadherin是EMT研究中的核心分子。它不仅决定细胞黏附,也影响肿瘤侵袭、转移和纤维化进程。对医学生、医生和科研人员来说,真正的难点不在于“知道它重要”,而在于如何把E-cadherin通路与EMT机制、实验标志物和课题设计连接起来 。
1. E-cadherin与EMT的基本关系
1.1 E-cadherin为何是EMT的核心标志物
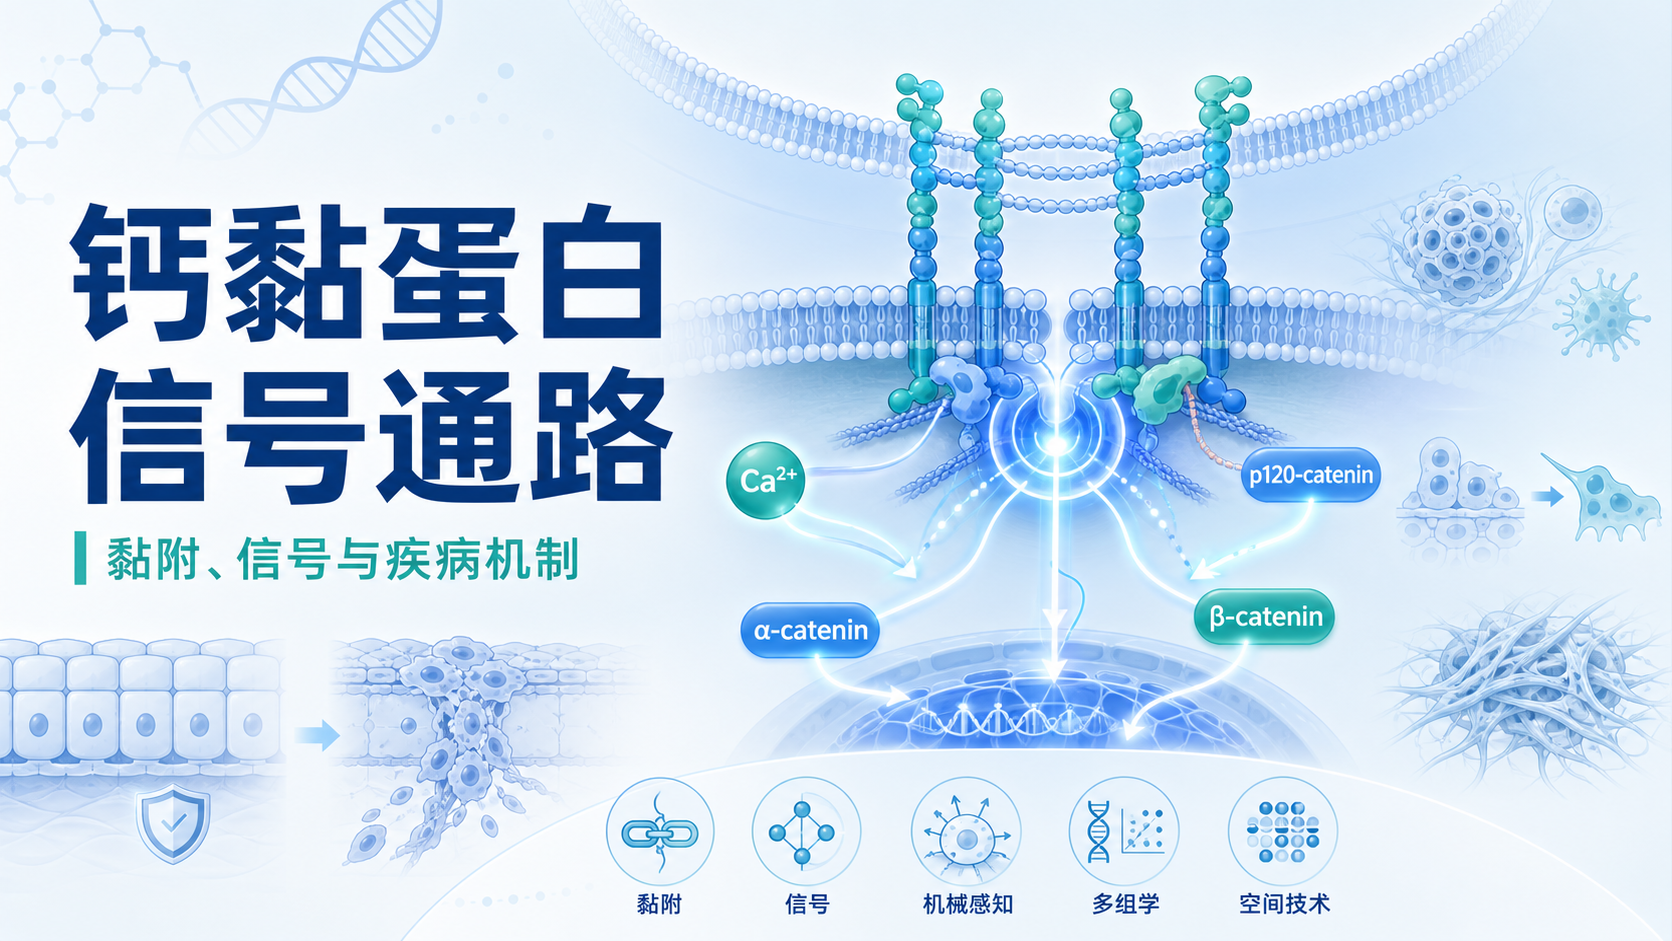
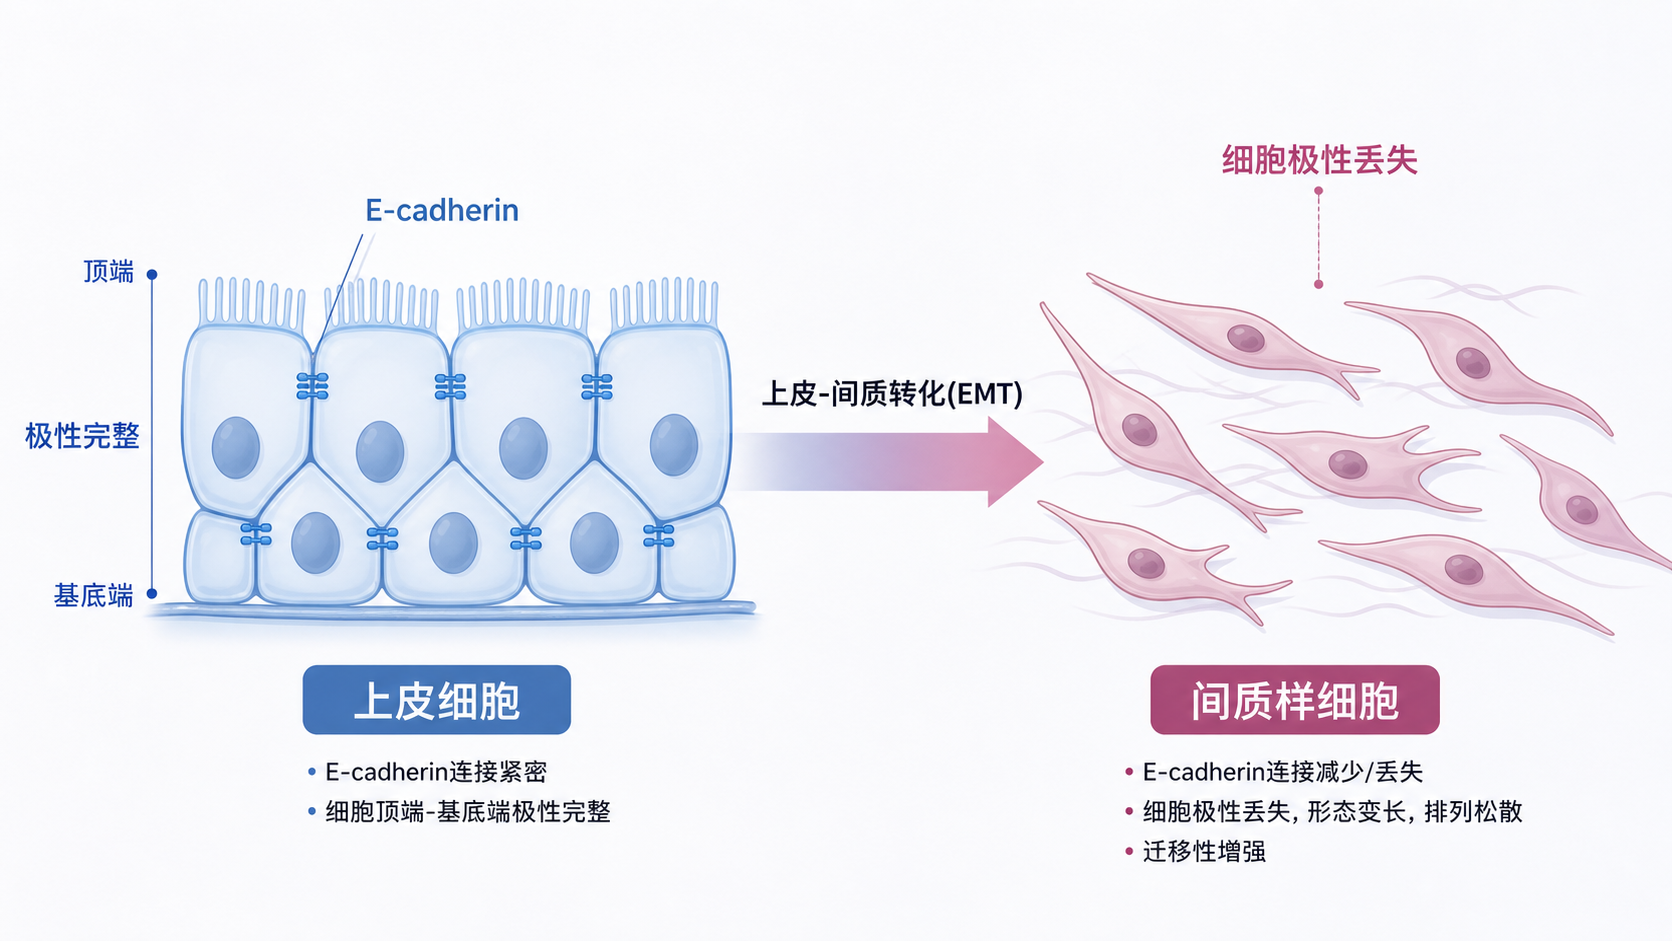
E-cadherin是一种钙离子依赖的跨膜糖蛋白 ,广泛表达于上皮细胞膜表面。它通过细胞外结构域介导细胞间黏附,并在细胞内与β-catenin、alpha-actinin 等分子连接,维持上皮组织的完整性。
在EMT过程中,最典型的变化之一就是E-cadherin表达下降 。这意味着细胞间连接减弱,细胞极性丢失,细胞骨架重排,迁移能力上升。对肿瘤而言,这一步往往是局部浸润和远处转移的起点。
因此,E-cadherin常被视为上皮表型维持的“刹车分子”。 一旦它被抑制,细胞就更容易获得间质样特征。
1.2 EMT不是单一事件,而是渐进过程
EMT不是“开”或“关”的简单切换,而是一个连续谱。尤其在3型EMT中,肿瘤细胞常处于部分上皮、部分间质 的混合状态。
这类细胞往往更具适应性,也更容易在肿瘤边缘获得侵袭优势。
从病理与实验角度看,研究EMT时不能只看单个标志物。通常需要联合评估:
- 上皮标志物,如E-cadherin、β-catenin、ZO-1
- 间质标志物,如vimentin、N-cadherin、fibronectin
- 转录因子,如Snail、Slug、Twist、ZEB1/2
其中,E-cadherin下降和N-cadherin上升,是最常用的EMT判断组合之一。
2. E-cadherin通路如何驱动EMT
2.1 从细胞黏附到信号调控
E-cadherin并不只是“结构蛋白”。它参与黏附连接的稳定,也影响细胞内信号传递。
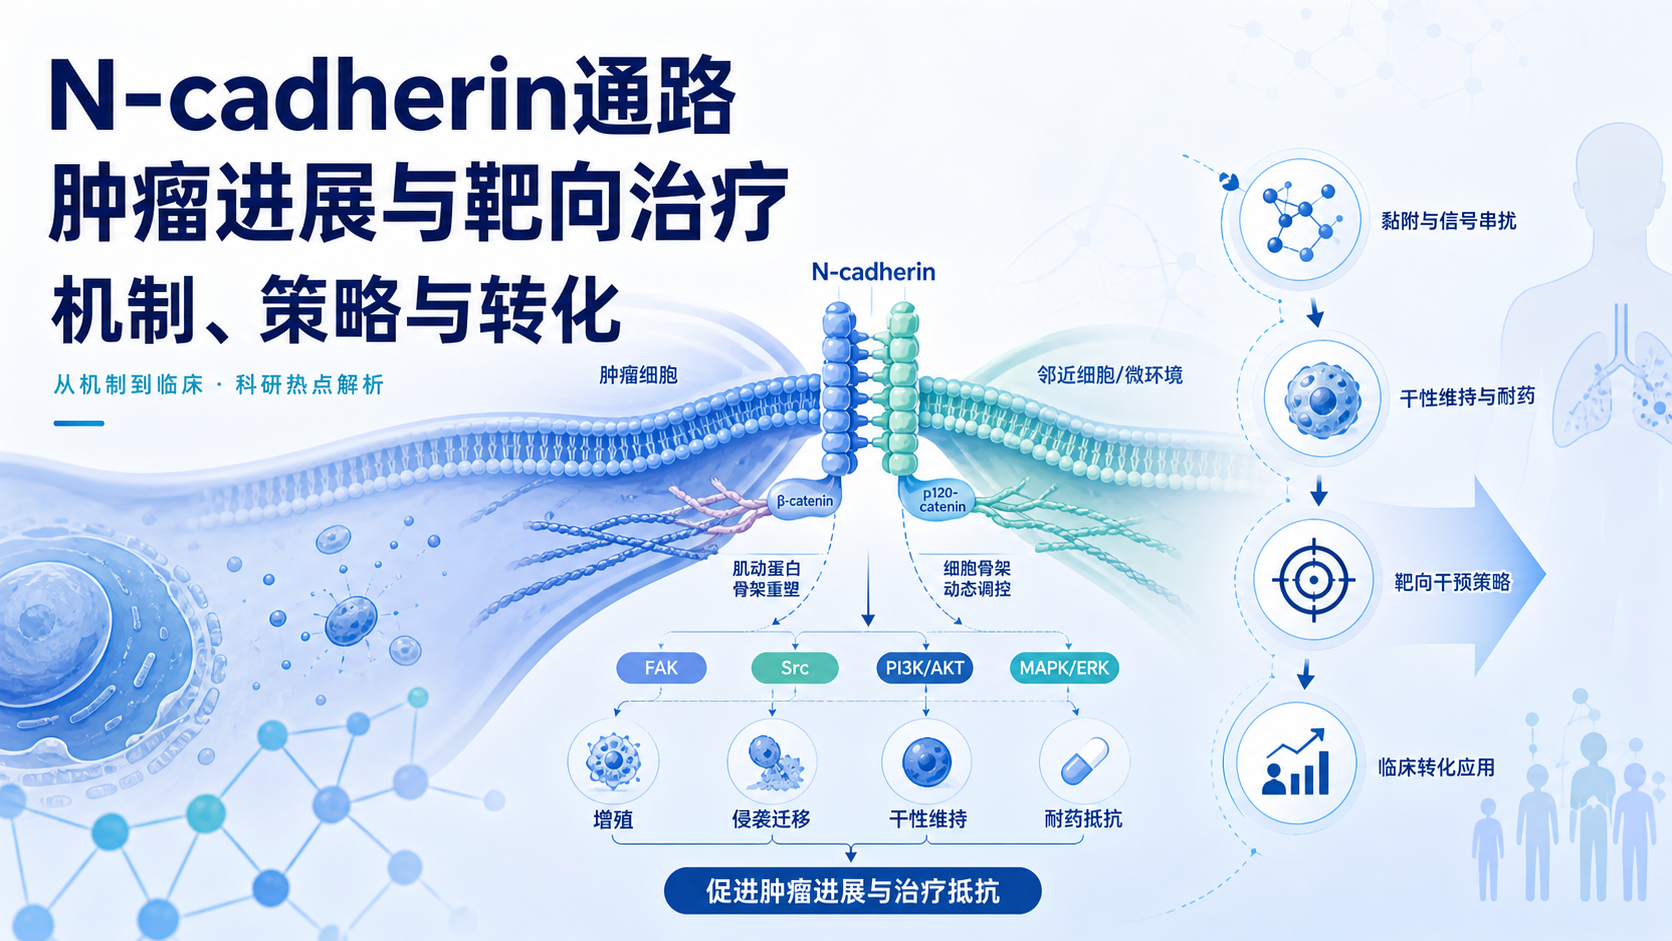
在上皮细胞中,E-cadherin与β-catenin形成复合物,有助于维持膜上的黏附状态。若E-cadherin减少,这一平衡被打破,β-catenin的定位和功能也会随之改变。
需要注意的是,β-catenin升高并不总是意味着上皮特征增强 。因为它同时是Wnt通路的重要节点,其变化可能反映信号激活,而不只是黏附状态改变。
2.2 转录因子是E-cadherin被抑制的执行者
在EMT中,真正直接压制E-cadherin转录的,往往是转录因子。常见包括:
- Snail
- Slug
- Twist
- ZEB1/2
这些因子可结合E-cadherin启动子区域的E-box序列,直接抑制其转录。
这也是为什么E-cadherin下降常与迁移、侵袭增强同步出现。
Twist和ZEB家族在肿瘤、胚胎发育和纤维化中都十分重要。比如Twist可直接抑制E-cadherin表达,并促进上皮样细胞向间质样形态转变。ZEB1/2也能通过类似机制抑制E-cadherin,并进一步推动vimentin、N-cadherin等分子上调。
2.3 E-cadherin与N-cadherin转换的意义
EMT中一个非常经典的现象,是cadherin switch 。即E-cadherin下降,N-cadherin上升。
这不仅是标志物变化,更代表细胞黏附方式的重编程。
在肿瘤中,这种转换与以下过程相关:
- 细胞黏附减弱。
- 细胞迁移能力增强。
- 基底膜穿透能力上升。
- 局部浸润和远处转移风险增加。
对于科研写作而言,cadherin switch是连接E-cadherin通路与EMT表型的最清晰证据链之一。
3. 上游诱导因素与关键信号网络
3.1 微环境是EMT启动的重要背景
EMT的发生与微环境密切相关。常见诱导因素包括:
- 细胞外基质变化
- 缺氧
- 炎症反应
- 肿瘤相关巨噬细胞
- 肿瘤细胞与间质细胞相互作用
这些因素并不是孤立作用,而是通过多个信号通路共同调控EMT。常见通路包括TGF-β/Smad、Wnt、Notch、MAPK、NF-κB、PI3K/AKT 等。
其中TGF-β是研究最广泛的EMT诱导因子之一。 它既可通过Smad依赖通路,也可通过非Smad通路激活Snail、Slug等转录因子,最终抑制E-cadherin。
3.2 这些通路如何落到E-cadherin上
从机制上看,多数EMT诱导通路最终都会汇聚到一个结果:E-cadherin转录下调 。
例如:
- TGF-β 激活Smad或MAPK相关通路,促进EMT转录程序
- Wnt/β-catenin 改变β-catenin核转位和转录活性
- NF-κB 参与炎症驱动的EMT
- PI3K/AKT 与细胞存活、迁移、EMT协同
- Notch 参与发育、肿瘤和纤维化相关转化
因此,E-cadherin通路在很多文章里,实际上是一个“终点读出”。真正上游的驱动信号,常常隐藏在TGF-β、Wnt、NF-κB等网络中。
3.3 1型、2型、3型EMT的研究语境
EMT按生物学场景可分为三种类型:
- 1型EMT :胚胎植入、发育、器官形成
- 2型EMT :组织再生、损伤修复、器官纤维化
- 3型EMT :肿瘤相关EMT,与侵袭和转移密切相关
对肿瘤研究而言,最常讨论的是3型EMT。
而在纤维化研究中,更多关注2型EMT。两者都可能出现E-cadherin下降,但研究问题不同,解释方式也不同。
4. 实验研究中如何评估E-cadherin通路
4.1 常用检测策略
研究E-cadherin通路时,通常不会只测一个蛋白,而是联合检测多个层面:
- qPCR :观察E-cadherin、N-cadherin、vimentin等mRNA变化
- Western blot :检测蛋白表达
- 免疫荧光 :观察E-cadherin膜定位和细胞形态变化
- Transwell迁移/侵袭实验 :验证功能变化
- 划痕实验 :观察细胞迁移能力
- 核蛋白检测 :如β-catenin核转位
如果只看到E-cadherin下降,而没有迁移、侵袭和间质标志物上升,EMT证据是不完整的。
4.2 典型的指标组合
在很多研究中,常见的组合是:
- 上皮标志物:E-cadherin、β-catenin、ZO-1
- 间质标志物:vimentin、N-cadherin
- 转录因子:Twist、Snail、ZEB1/2
其中,E-cadherin是最经典的上皮标志物。vimentin是间质表型的重要代表。N-cadherin则是cadherin转换的关键指标。
这组指标能较完整地反映EMT是否真正发生。
4.3 研究中要避免的误区
一个常见误区是,把“E-cadherin下降”直接等同于“EMT完成”。实际上,EMT是动态过程,不同细胞可能处于不同阶段。
另一个误区是,忽视β-catenin的双重含义。它既参与黏附,也参与Wnt信号。单独解释其变化时,必须结合定位和上下游信号一起判断。
因此,判断E-cadherin通路时,最好同时看表达量、定位变化和功能学结果。
5. 研究进展对课题设计的启发
5.1 从“单分子”走向“通路链条”
当前关于E-cadherin通路的研究,已经从简单观察表达变化,逐步转向完整的机制链条。一个更有说服力的课题设计,通常包含:
- 上游刺激因素
- 信号通路激活
- 转录因子上调
- E-cadherin下调
- EMT表型与功能变化
这样的逻辑链,更符合E-E-A-T要求,也更利于SCI写作和结果解释。
5.2 解螺旋式的思路:从表型倒推机制
对初学者来说,最有效的方法不是先背通路,而是先明确表型。
如果研究的是迁移、侵袭、转移或纤维化,就优先考虑EMT;如果看到E-cadherin下降,再倒推上游是否涉及TGF-β、Wnt、NF-κB或PI3K/AKT。
这种从表型到通路的思路,能显著提高课题设计效率。
5.3 借助专业平台提高选题和写作效率
如果你正在做E-cadherin通路、EMT或肿瘤转移相关课题,最费时间的往往不是做实验,而是找切入点、梳理逻辑、组织结果。
这时候,像解螺旋 这样的专业科研与写作支持平台,可以帮助你更快建立“表型-通路-标志物-验证实验”的完整框架,减少试错成本,把有限时间投入到最关键的实验设计和论文表达中。
总结Conclusion
E-cadherin是EMT研究中的核心节点。它不仅是上皮表型的标志物,也连接着细胞黏附、信号转导和转录调控。E-cadherin下降,往往意味着EMT程序被启动,细胞获得更强的迁移和侵袭能力。
从研究角度看,真正有价值的不是只观察一个分子的变化,而是把E-cadherin与TGF-β、Wnt、NF-κB、Twist、ZEB1/2等因素串联起来,形成完整机制链。这样才能更准确解释肿瘤转移、纤维化和组织重塑。
如果你正在做相关课题,建议从表型出发,结合标志物和功能实验建立证据链。也欢迎借助解螺旋 提升选题、写作和实验设计效率,让E-cadherin通路研究更快落地。

- 引言Introduction
- 1. E-cadherin与EMT的基本关系
- 2. E-cadherin通路如何驱动EMT
- 3. 上游诱导因素与关键信号网络
- 4. 实验研究中如何评估E-cadherin通路
- 5. 研究进展对课题设计的启发
- 总结Conclusion