40
 分享
引言Introduction
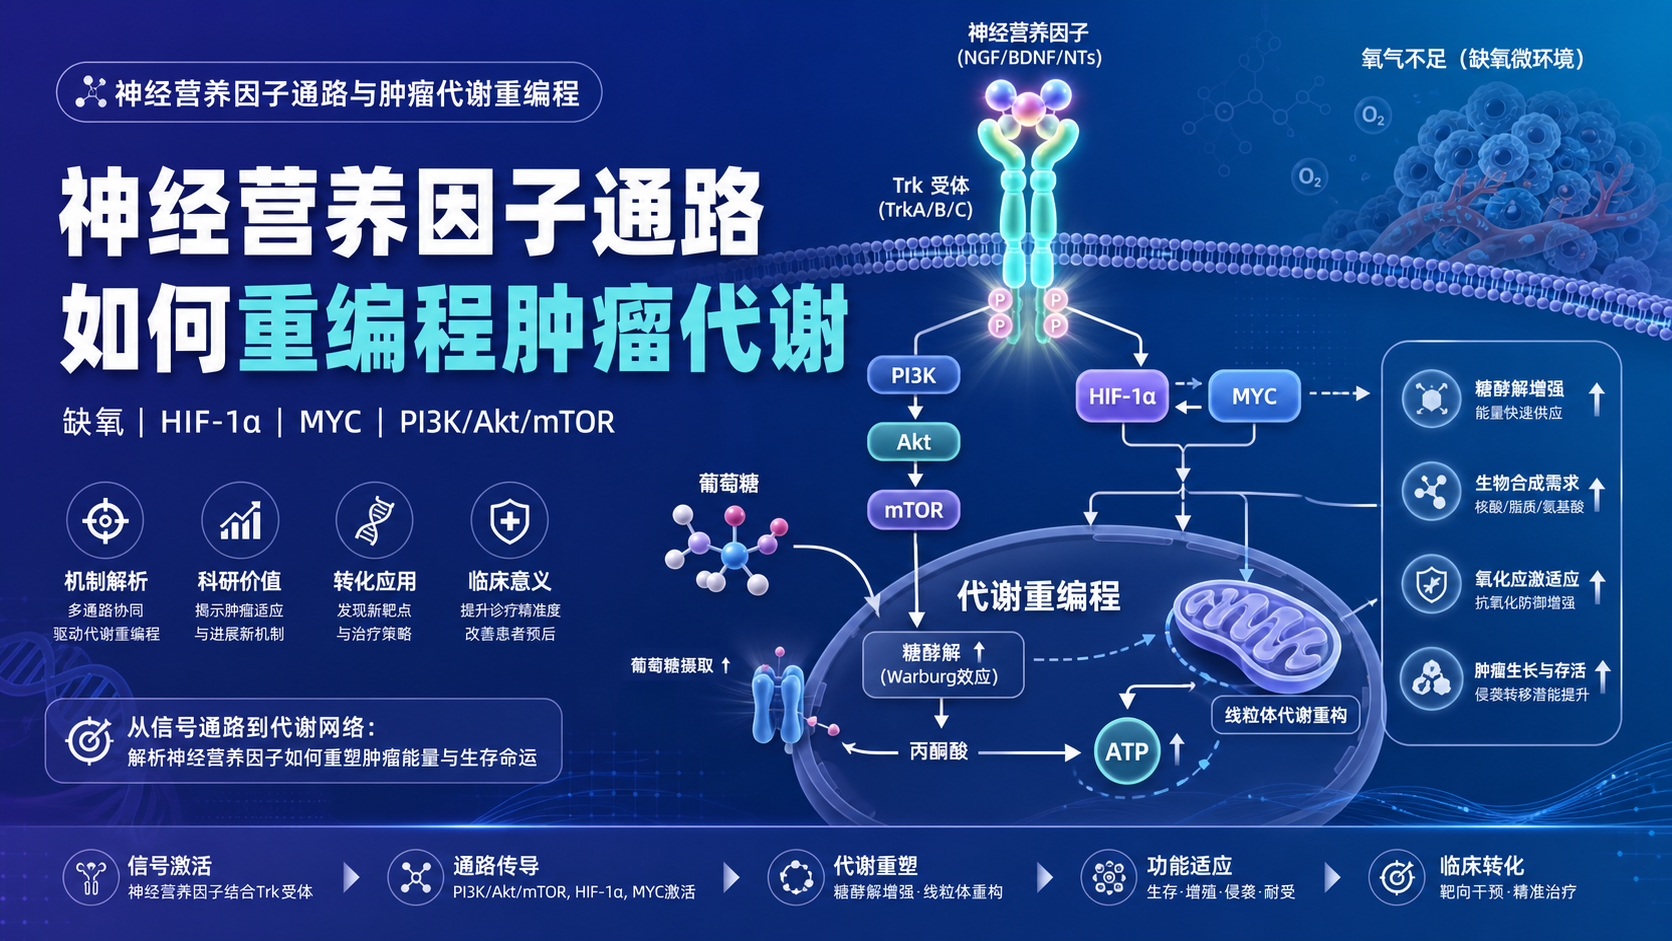
肿瘤代谢重编程不只是“吃糖多”。它还会改写信号网络,甚至借用神经营养因子通路来支持增殖、侵袭和耐受缺氧。对医学生和科研人员来说,真正的难点不是记概念,而是把通路、代谢和表型连起来。理解这条轴线,才能看懂肿瘤为何更会“活下去”。
1. 神经营养因子通路为何会进入肿瘤代谢研究
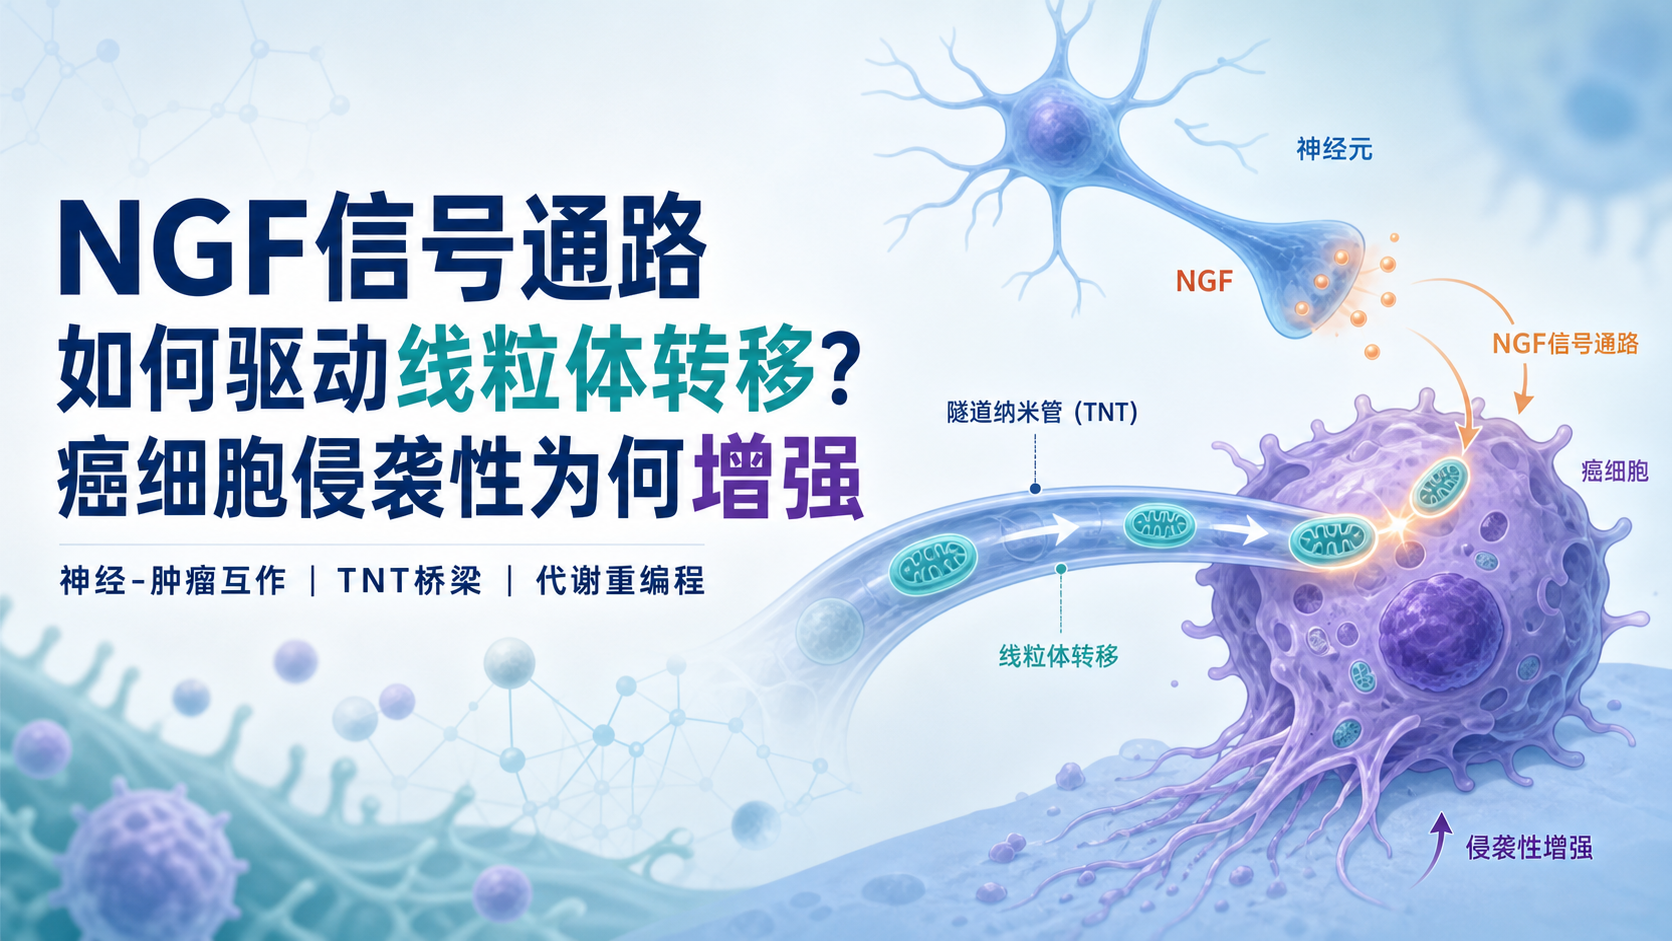
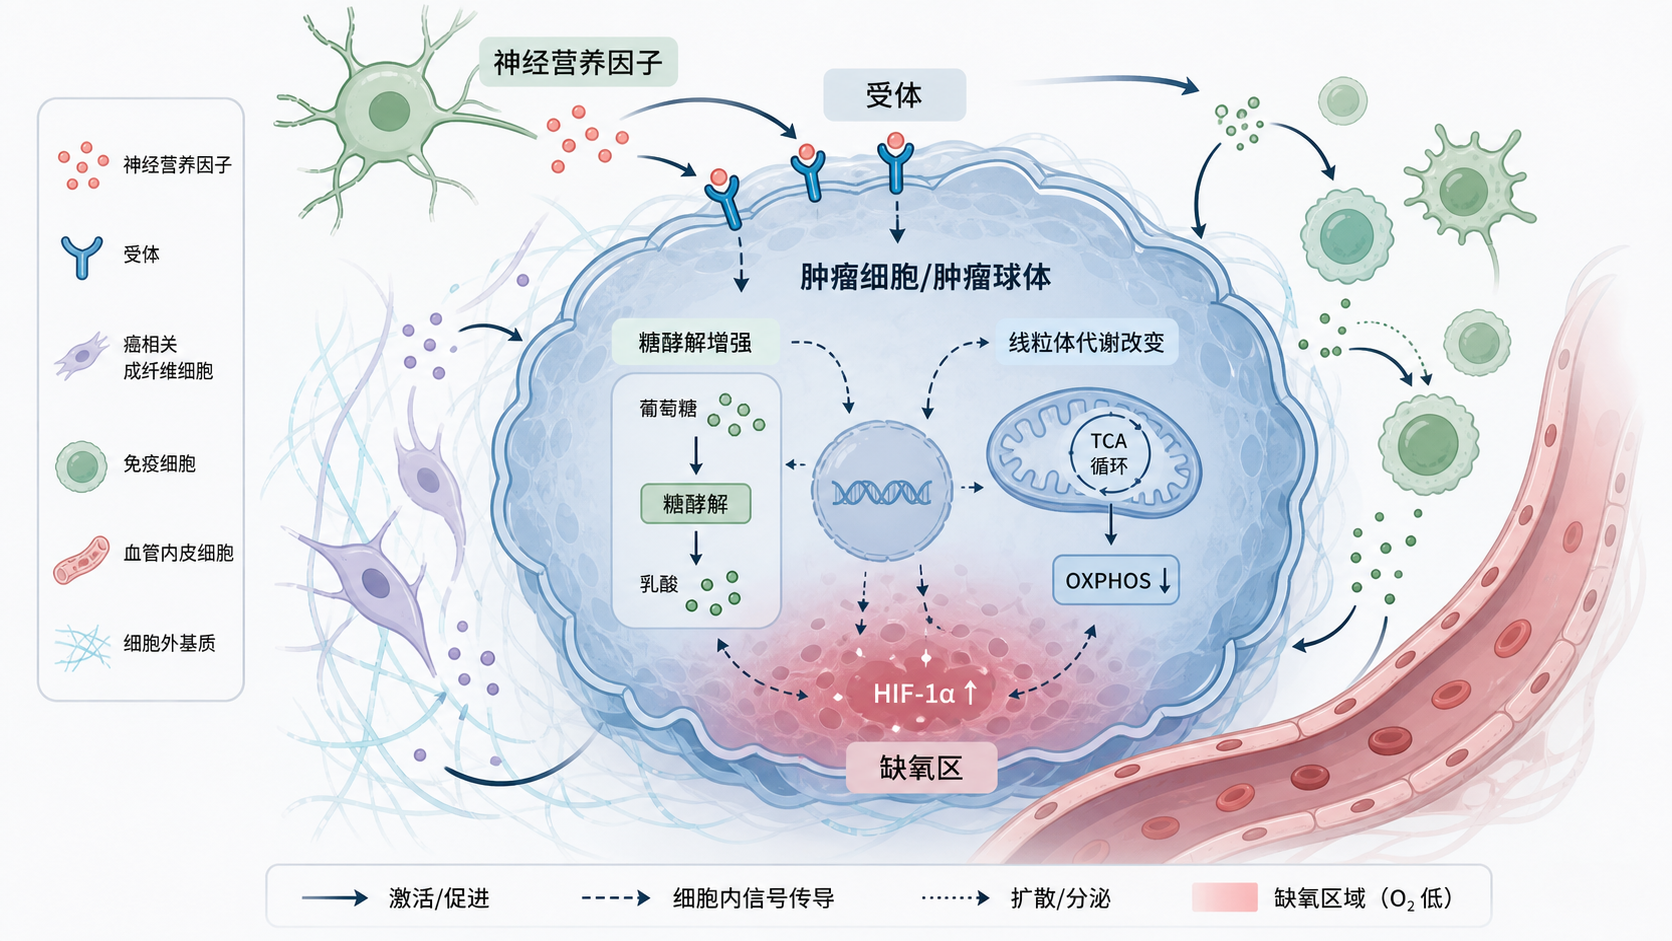
神经营养因子最初被放在神经系统语境里讨论,但后来研究发现,它们在肿瘤中同样活跃。常见成员包括 NGF、BDNF、NT-3 和 NT-4/5。它们通过 Trk 家族受体以及 p75NTR 触发下游信号,影响细胞生存、迁移和代谢状态。
肿瘤并不是单纯“长得快”,而是需要持续重塑能量分配。 当肿瘤细胞进入缺氧、营养波动和免疫压力并存的环境时,生长信号会和代谢信号交叉耦合。神经营养因子通路正是这种耦合的代表之一。
从研究视角看,这条通路的价值在于它连接了三个层面。
- 细胞表面受体激活。
- 经典生存通路放大。
- 代谢表型发生偏移。
这意味着它不仅是“信号通路”,也是代谢重编程的上游调节器。
1.1 受体激活如何把外界刺激转成代谢指令
神经营养因子与 Trk 受体结合后,可激活 PI3K/Akt、RAS/MAPK 和 PLCγ 等通路。它们的共同特点是,不只促进存活,还会提高葡萄糖摄取、增强生物合成,并帮助细胞适应低氧环境。
在肿瘤细胞中,这种改变常表现为更强的营养摄入和更高的合成需求。简单说,受体被打开后,细胞不只是“收到生长命令”,还会同步切换到“供能和造材模式”。
1.2 为什么这条通路会与肿瘤表型同步出现
临床和基础研究都提示,神经营养因子通路异常活跃时,肿瘤往往更容易表现出侵袭性、神经周围浸润和治疗耐受。原因在于它既影响增殖,也影响细胞骨架、迁移和代谢适应。
对科研设计而言,这类通路尤其值得关注,因为它可能同时解释多个表型。如果一个肿瘤既增殖快,又耐缺氧,还更易转移,就要考虑它是否存在上游信号驱动的代谢重编程。
2. 神经营养因子通路如何推动代谢重编程
肿瘤代谢重编程的核心,不是单一通路升高,而是碳流、能量与合成底物重新分配。神经营养因子通路介入后,往往会把细胞从“效率优先”推向“快速生长优先”。
2.1 促进葡萄糖摄取和糖酵解
在肿瘤中,神经营养因子信号可通过 PI3K/Akt 相关轴增强葡萄糖转运与糖酵解。结果是,葡萄糖更快进入细胞,丙酮酸更多转向乳酸生成,而不是完全进入线粒体氧化。
这与 Warburg 效应高度一致。即使氧气并不完全缺乏,肿瘤细胞也会偏向糖酵解,以更快获得代谢中间产物。 这些中间产物可用于核酸、脂质和氨基酸合成。
值得注意的是,糖酵解增强并不意味着 ATP 产量一定最高。它的优势在于速度快、适应性强,且能为快速增殖提供原料。
2.2 连接生物大分子合成需求
肿瘤细胞增殖需要 DNA、RNA、蛋白质和膜脂的大量合成。神经营养因子信号通过增强葡萄糖代谢和相关酶表达,可帮助细胞把碳源导向核苷酸和脂质合成。
这类代谢重编程的本质,是把“供能”变成“供材”。 细胞不只是为了活着,而是为了持续复制。
如果将这一过程量化,可以这样理解。
- 葡萄糖进入后,部分碳流被导向糖酵解。
- 糖酵解中间产物可进入磷酸戊糖途径。
- 磷酸戊糖途径提供核糖和 NADPH。
- NADPH 支持抗氧化和脂质合成。
这也是神经营养因子通路在肿瘤代谢研究中值得深入的原因。
2.3 影响线粒体功能与氧化应激适应
肿瘤代谢重编程并不等于线粒体失活。很多肿瘤仍依赖线粒体完成 TCA 循环补料、还原力平衡和部分生物合成。神经营养因子通路可通过下游效应影响线粒体稳态和抗氧化能力,使细胞更能承受氧化应激。
在转移、缺氧和治疗压力下,这种能力尤其重要。能否维持氧化还原平衡,往往决定肿瘤细胞是否能跨过生存瓶颈。
3. 与缺氧、HIF-1α和MYC的关系
神经营养因子通路不是孤立工作的。它常与 HIF-1α、c-Myc 以及 PI3K/Akt/mTOR 网络共同构成代谢调控层。
3.1 缺氧环境放大神经营养因子效应
实体瘤内部常存在局部缺氧。缺氧会稳定 HIF-1α,使其不易降解。HIF-1α 可上调多种糖酵解相关基因,并促进葡萄糖转运、乳酸生成和抑制丙酮酸进入线粒体。
当缺氧和神经营养因子信号同时存在时,肿瘤细胞更容易形成“高糖酵解、低氧化”的代谢状态。 这类状态有利于快速适应局部微环境,也与侵袭性增强相关。
3.2 c-Myc把生长信号转成代谢增益
c-Myc 是细胞周期和代谢重编程中的关键转录因子。它能促进细胞从 G1 进入 S 期,也能调控核苷酸合成、氨基酸代谢和糖代谢相关基因。
神经营养因子信号若增强 c-Myc 活性,就可能同时提升增殖速度和代谢供给。这不是单点增强,而是“生长程序”整体加速。 对肿瘤来说,这种耦合非常危险。
3.3 PI3K/Akt/mTOR是常见汇合点
无论是神经营养因子,还是其他生长因子,很多信号最终都会汇聚到 PI3K/Akt/mTOR。该通路能促进蛋白质合成、脂质合成和细胞生长。
因此,在实验设计中,观察神经营养因子通路时,不能只看受体表达,还要看下游代谢标志物。建议至少关注以下指标。
- GLUT1、HK2、LDHA。
- p-Akt、p-mTOR。
- HIF-1α、c-Myc。
- 乳酸生成与葡萄糖摄取。
4. 研究与转化中应关注的关键问题
对于医学生和科研人员来说,真正有价值的问题不是“有没有这条通路”,而是“它在什么条件下被激活,又能解释什么表型”。
4.1 如何验证这条通路参与了代谢重编程
常用思路是从“表达、功能、阻断”三步走。
- 检测神经营养因子及受体表达。
- 观察葡萄糖摄取、乳酸释放、OCR 和 ECAR。
- 用抑制剂或敲低手段验证因果关系。
只有把通路激活和代谢读数放在同一实验框架里,才算真正证明了“介导”关系。
4.2 为什么它可能成为治疗切入点
如果肿瘤依赖神经营养因子通路维持代谢适应,那么阻断该通路可能同时削弱增殖、迁移和耐受性。理论上,这会比只打一个单一代谢酶更有效,因为它切断的是上游驱动。
但需要保持谨慎。不同癌种、不同微环境、不同突变背景下,通路依赖性并不相同。因此,转化价值需要建立在分层研究和功能验证之上。
最后,若想系统掌握神经营养因子通路如何与肿瘤代谢重编程交叉,建议结合文献精读和机制图谱训练。解螺旋提供的课程与资料,适合把零散知识串成可用于论文、课题和答辩的完整逻辑框架。
总结Conclusion
神经营养因子信号介导的肿瘤代谢重编程,本质上是把外界生长刺激转化为能量重分配、物质合成和应激适应。它可通过 Trk/p75NTR 相关轴,联动 PI3K/Akt/mTOR、HIF-1α 和 c-Myc,推动糖酵解增强、生物大分子合成和缺氧适应。对研究者而言,抓住这条通路,就更容易解释肿瘤为何更会生长、更会转移,也更难被治疗压制。 如果你希望进一步系统梳理这类机制,欢迎关注解螺旋。
- 引言Introduction
- 1. 神经营养因子通路为何会进入肿瘤代谢研究
- 2. 神经营养因子通路如何推动代谢重编程
- 3. 与缺氧、HIF-1α和MYC的关系
- 4. 研究与转化中应关注的关键问题
- 总结Conclusion