55
 分享
引言Introduction
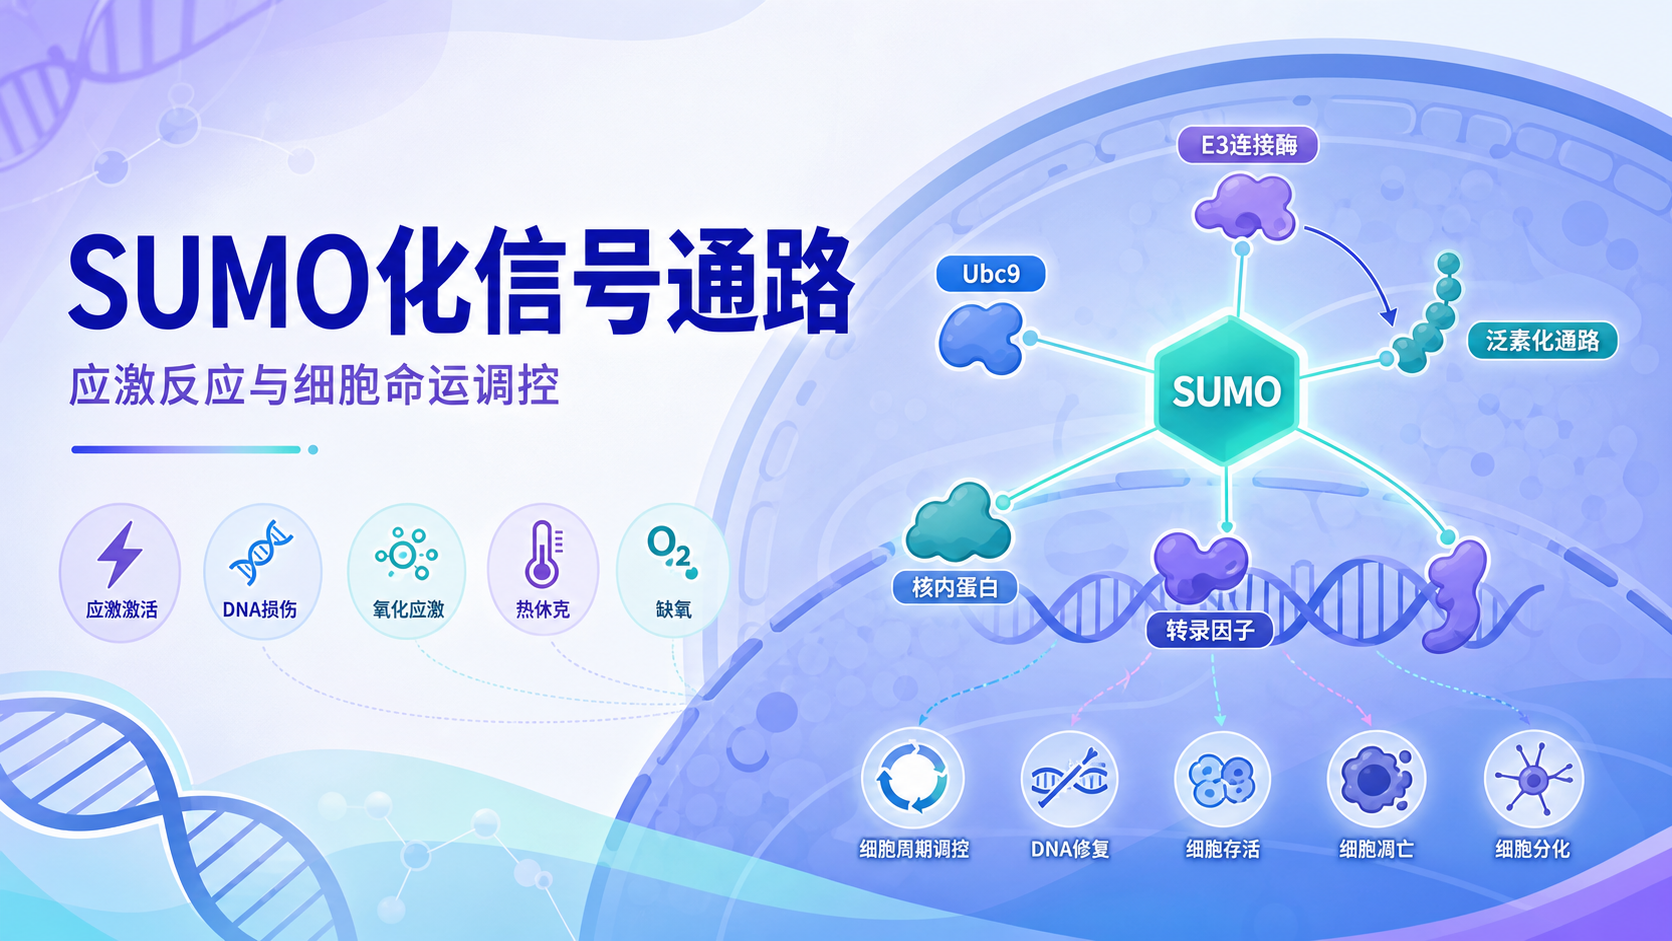
细胞每天都要面对缺氧、氧化应激、DNA损伤和热休克。真正决定其能否存活的,不只是“有没有损伤”,而是能否快速重编程蛋白功能。SUMO化信号通路正是这一应激应答中的关键调控轴。 
1. SUMO化信号通路的基础框架
1.1 SUMO化不是降解信号,而是功能重塑信号
SUMO是Small Ubiquitin-like Modifier的缩写。它是一类小型泛素样蛋白,常见成员包括SUMO1、SUMO2和SUMO3。SUMO化的核心作用,不是像泛素那样直接标记蛋白降解,而是改变底物蛋白的定位、稳定性、活性和相互作用。
这一点对细胞应激尤其重要。因为应激状态下,细胞往往需要迅速调整转录、修复和运输系统,而不是简单“清除”蛋白。SUMO化能够在短时间内改变蛋白网络的工作方式,让细胞更快进入保护状态。
1.2 SUMO化的三级酶级联决定其时空精确性
SUMO化反应与泛素化类似,也依赖E1、E2和E3酶级联完成。其基本步骤包括:
- E1激活酶 ,由Uba2和Aos1组成,先在ATP参与下激活SUMO。
- SUMO转移到E2连接酶Ubc9 。
- 在E3连接酶帮助下,SUMO连接到底物蛋白赖氨酸残基上。
这一过程形成异肽键,是典型的可逆蛋白修饰。可逆性是SUMO系统适合应激调控的关键原因。 当刺激消失,SENP家族去SUMO化酶可快速逆转修饰,恢复稳态。
2. 细胞应激中SUMO化如何被快速激活
2.1 应激会提高SUMO化总水平
在热休克、氧化应激、渗透压变化和DNA损伤条件下,细胞内SUMO化水平常出现上升。研究中常观察到,SUMO2/3相关修饰在应激后更明显增加,而SUMO1更多参与基础稳态和特定转录调节。
这种快速升高并不意味着所有蛋白都被随机修饰。 相反,SUMO化更像一套“定向重分配”机制。它优先作用于转录因子、染色质蛋白、DNA修复因子和核内支架蛋白,从而迅速改变细胞核内的功能布局。
2.2 Ubc9和E3连接酶决定底物选择
SUMO通路的选择性主要来自Ubc9识别序列和E3连接酶的辅助作用。常见E3包括PIAS家族、RanBP2和MMS21等。在应激环境下,不同E3会把SUMO化导向不同底物,决定细胞是优先修复DNA,还是抑制转录,或重塑细胞周期。
这也是为什么SUMO化信号通路常被视为“细胞应激的分流器”。同样的刺激,不同细胞类型、不同时间点,SUMO化的底物谱可能完全不同。
3. SUMO化如何参与典型应激应答
3.1 DNA损伤应答中的SUMO化
DNA损伤是SUMO化研究最清楚的场景之一。双链断裂、复制压力和紫外线损伤都会触发SUMO化增强。其作用主要体现在三个层面:
- 促进DNA修复蛋白募集到损伤位点。
- 调控修复复合体装配与解离。
- 协调检查点信号,避免错误复制。
在这一过程中,SUMO化常与泛素化协同。某些底物先被SUMO化,再被SUMO识别泛素连接酶进一步修饰,形成级联反应。这类“SUMO-泛素串联”能把短期修复信号放大成可执行的蛋白清除或重定位指令。
3.2 氧化应激和热休克中的SUMO化
氧化应激会改变蛋白折叠状态,并损伤核酸和膜结构。热休克则容易导致蛋白构象异常。此时SUMO化常通过以下方式发挥作用:
- 稳定应激相关转录因子。
- 抑制非必要转录,节省能量。
- 保护关键蛋白不被错误降解。
- 重塑细胞核内蛋白分布。
对细胞而言,SUMO化相当于一种“暂时性刹车系统”。 它能让细胞先停止部分高耗能活动,再集中资源处理损伤。
3.3 缺氧和代谢压力中的SUMO化
缺氧会影响ATP生成,也会影响蛋白修饰网络。由于SUMO化本身需要ATP参与激活步骤,因此细胞在缺氧时对该通路的调控更显重要。已有研究显示,缺氧条件下SUMO化会参与调节转录因子和代谢相关蛋白的功能,帮助细胞适应低氧环境。
对于肿瘤细胞、缺血组织和炎症微环境来说,这一点尤其关键。SUMO化不仅是应激反应的一部分,也可能影响细胞在病理环境中的生存优势。
4. SUMO化在核内转录和细胞周期中的核心作用
4.1 通过核受体和转录因子调控基因表达
SUMO化对核受体的调控很重要,尤其是雌激素受体、雄激素受体等。SUMO化可影响这些受体与共激活子或共抑制子的结合,进而改变靶基因转录强度。
在应激状态下,这种调节意义更大。细胞并不需要持续维持所有基因高表达。SUMO化能够快速切换转录程序,让细胞从“生长模式”转入“防御模式”。
4.2 细胞周期停滞是应激保护的重要结果
细胞周期调控是SUMO化的另一核心场景。SUMO化可影响周期蛋白、CDK以及周期抑制因子的活性,从而改变G1/S或G2/M转换。对于DNA损伤细胞,这通常意味着暂时停滞。
这一策略的生物学意义很明确。先停下来,再修复。 如果损伤未修复就继续复制,突变和染色体不稳定风险会显著上升。对于科研和病理研究而言,SUMO化与细胞周期耦联是理解肿瘤耐受和放疗反应的重要切入点。
5. SUMO化与其他信号通路的交叉调控
5.1 与泛素化的协同和拮抗
SUMO化与泛素化并不是孤立存在的。它们可以在同一底物上发生竞争,也可以依次发生形成级联。这种交叉调控决定了蛋白最终是稳定、转位,还是被降解。
在蛋白稳态调控中,这种关系尤其重要。SUMO化可能先改变蛋白构象,再决定其是否更容易被泛素系统识别。反过来,某些蛋白也会因SUMO化而阻断泛素化位点,延长半衰期。
5.2 与应激信号网络形成动态耦联
SUMO化不仅影响单一蛋白,还会影响更高层级的信号网络。它和DNA损伤应答、转录应答、蛋白稳态和免疫相关通路之间存在广泛交叉。这意味着SUMO化不是末端修饰,而是上游调度机制。
对医学研究者来说,这一点非常重要。因为很多疾病并不是单一通路异常,而是应激应答网络失衡。SUMO化恰好位于这一网络的枢纽位置。
6. SUMO化信号通路的检测思路与研究价值
6.1 常用检测指标
研究SUMO化时,常见检测对象包括:
- SUMO1、SUMO2、SUMO3
- Uba2、Aos1
- Ubc9
- PIAS、RanBP2、MMS21
- SENP1、SENP2、SENP3
常用实验方法包括Western blot、免疫荧光和Co-IP。其中,Western blot适合观察整体SUMO化水平变化,Co-IP更适合验证特定底物是否发生SUMO化。 免疫荧光则常用于观察核内定位变化。
6.2 研究中的关键难点
SUMO化研究的难点主要有三个:
- 变化快,时间窗短。
- 底物多,背景复杂。
- 与泛素化交叉强,解释要谨慎。
因此,实验设计时应尽量结合时间梯度、底物特异性抗体和多种验证方法。单一指标很难完整反映SUMO化通路状态。
7. 面向科研应用的策略选择
7.1 抑制剂研究提示通路可干预性
目前已有一些SUMO通路抑制剂被用于研究,例如E1激活酶抑制剂ML-792、ML-793,以及E2相关抑制剂2-D08。SENP相关抑制剂也常用于解析去SUMO化过程。这说明SUMO化信号通路具有明确的可干预性。
在疾病模型中,调控SUMO化有望影响细胞应激耐受、增殖和修复能力。不过,现阶段大多数研究仍处于基础和转化探索阶段,临床应用需要更多证据支持。
7.2 如何借助解螺旋提高研究效率
如果你正在做SUMO化信号通路相关课题,常会遇到文献筛选慢、靶点整理散、图表制作耗时的问题。解螺旋可以帮助你更快完成通路梳理、靶点归纳和科研写作初稿,减少重复检索成本。 对于医学生、医生和科研人员来说,这类工具能把更多时间留给实验设计和结果解释。
总结Conclusion
SUMO化信号通路是细胞应激应答中的重要调控机制。它通过E1、E2、E3级联完成可逆修饰,快速改变蛋白定位、活性和互作。它在DNA损伤、氧化应激、热休克、缺氧和细胞周期停滞中都发挥核心作用。对医学研究而言,理解SUMO化,就是理解细胞如何在压力下重新分配资源、维持生存。
如果你正在撰写相关综述、课题标书或论文结果部分,建议从底物、酶级联、应激场景和交叉通路四个层面搭建逻辑框架。需要更高效地整理SUMO化相关文献和写作思路,可以进一步使用解螺旋,帮助你把复杂机制快速转化为可发表的科研表达。
- 引言Introduction
- 1. SUMO化信号通路的基础框架
- 2. 细胞应激中SUMO化如何被快速激活
- 3. SUMO化如何参与典型应激应答
- 4. SUMO化在核内转录和细胞周期中的核心作用
- 5. SUMO化与其他信号通路的交叉调控
- 6. SUMO化信号通路的检测思路与研究价值
- 7. 面向科研应用的策略选择
- 总结Conclusion