46
 分享
引言Introduction
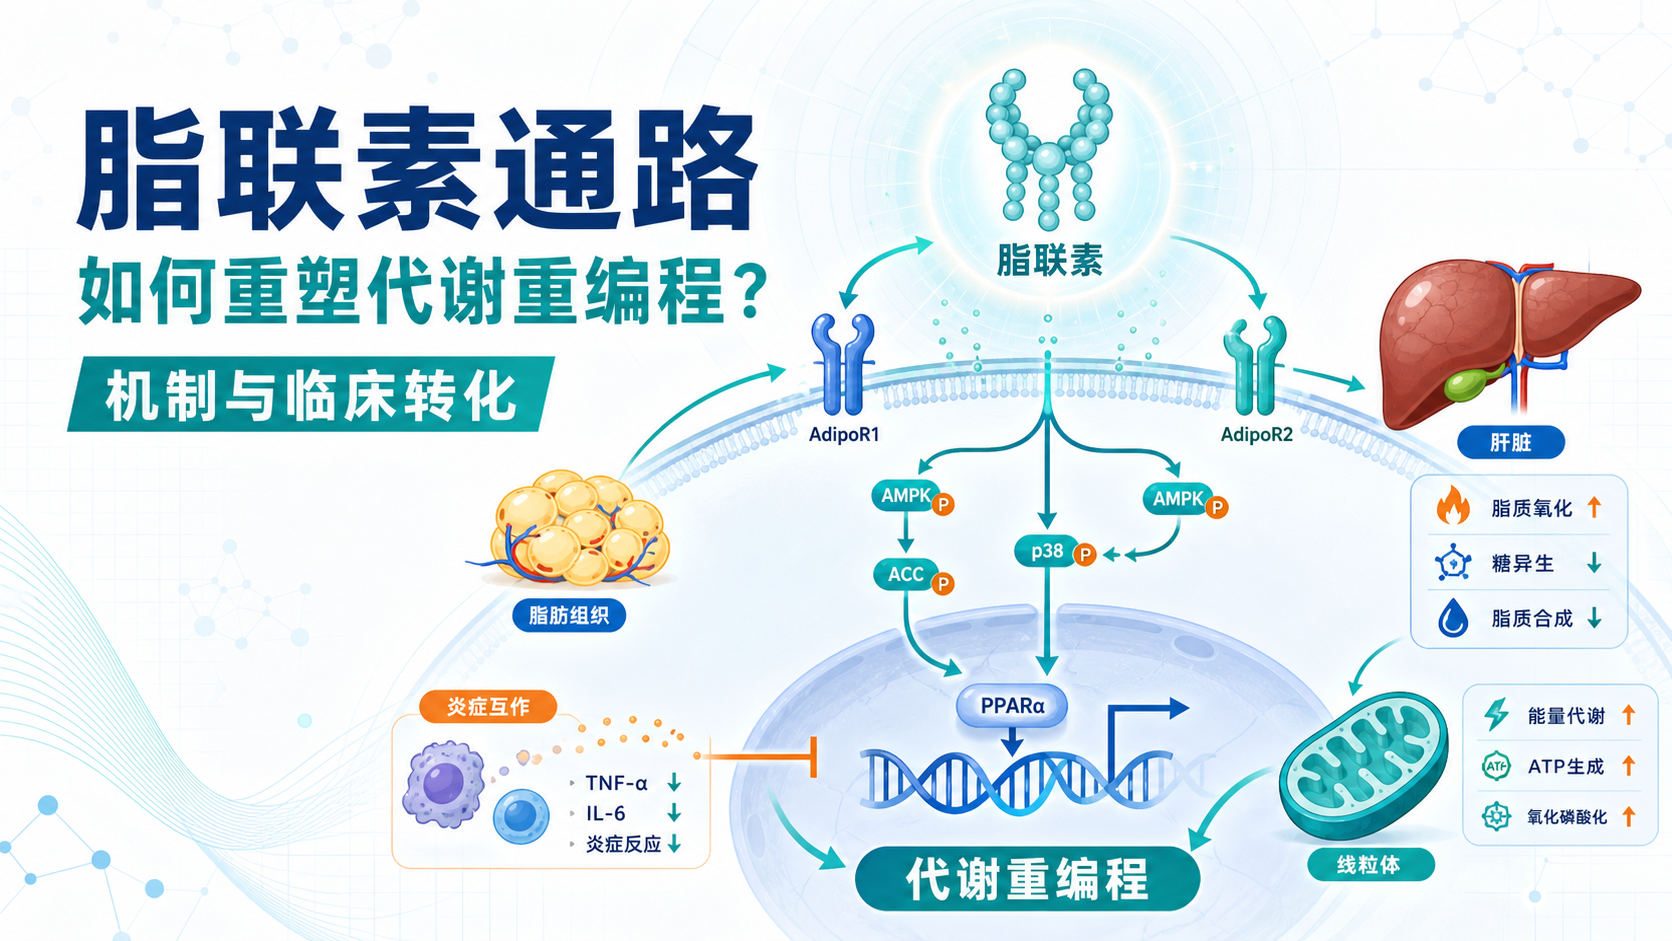
代谢重编程是肥胖、糖尿病和脂肪肝研究中的高频难点。很多文章只看到表型变化,却讲不清上游信号如何把“脂联素通路”连到脂代谢、炎症和线粒体功能上。真正有价值的问题是,脂联素如何通过受体、磷酸化和转录调控,重塑细胞代谢状态。
1. 脂联素通路为什么能影响代谢重编程
1.1 脂联素不是单纯的脂肪因子
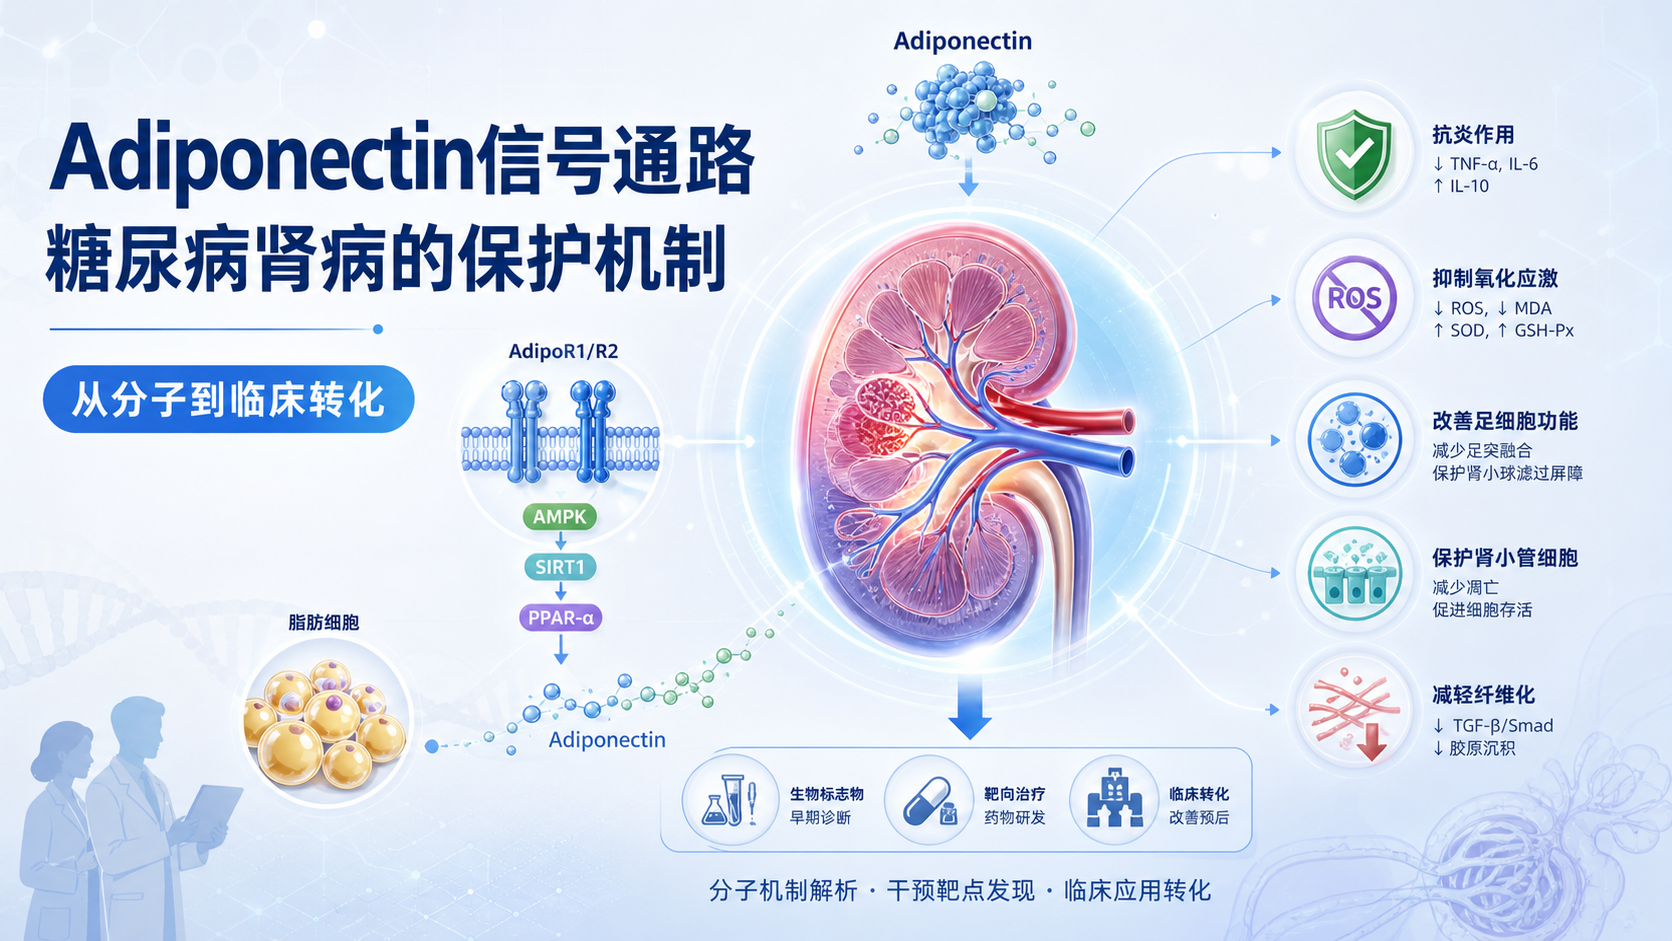
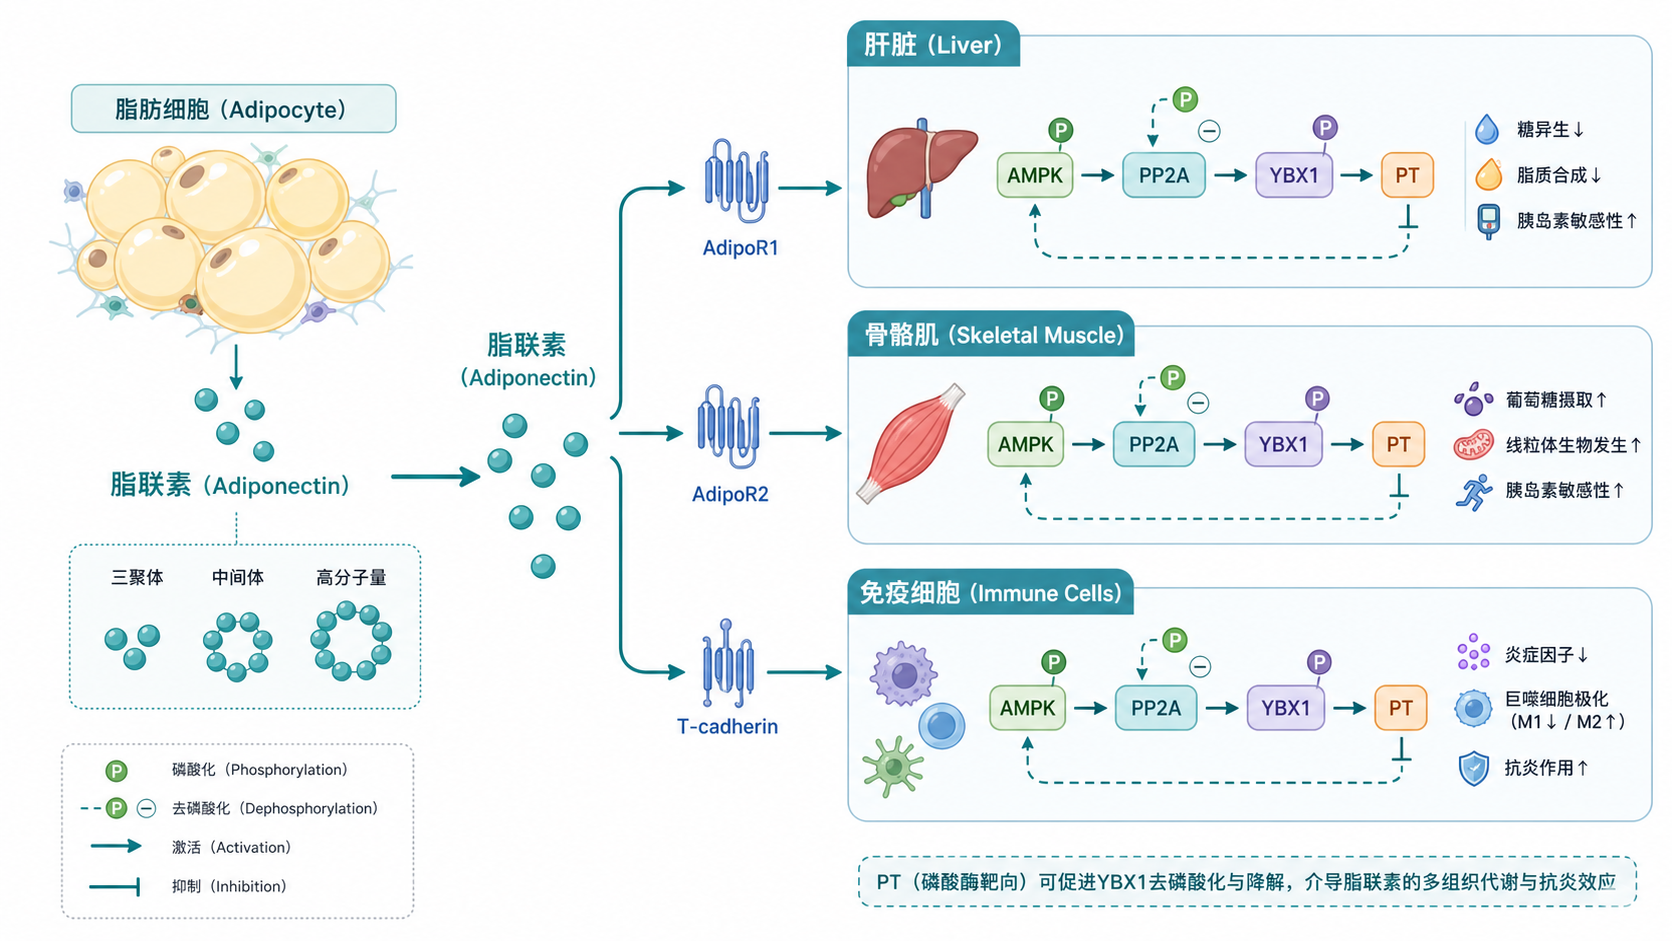
脂联素由脂肪细胞分泌,但作用范围远不止脂肪组织本身。它可通过AdipoR1、AdipoR2及相关下游网络,影响肝脏葡萄糖生成、脂肪酸氧化和胰岛素敏感性。因此,脂联素通路本质上是一个连接脂肪组织与全身能量代谢的信号轴。
在代谢病状态下,脂联素水平常与胰岛素抵抗、内脏肥胖和脂肪肝严重程度相关。对科研设计而言,这意味着脂联素不仅是标志物,也可能是因果节点。研究重点不应只停留在“表达升高或降低”,而要追问它如何改写细胞能量利用方式。
1.2 代谢重编程的核心是“通路重置”
代谢重编程常表现为糖酵解、脂肪酸氧化、脂质合成和线粒体氧化磷酸化之间的重新分配。脂联素通路之所以重要,是因为它能同时影响多条代谢支路。
例如,在胰岛素抵抗背景下,脂联素信号增强通常伴随:
- AMPK活化增加。
- 脂肪酸氧化增强。
- 肝脏糖异生下降。
- 炎症信号减弱。
这些变化共同构成“代谢重编程”的分子基础,而不是单一基因表达波动。
2. 脂联素通路调控代谢重编程的关键机制
2.1 受体层面决定信号入口
脂联素通路的第一步,是脂联素与受体结合。不同受体的组织分布不同,决定了其代谢效应的组织特异性。肝脏、骨骼肌和脂肪组织对脂联素的响应并不完全相同,这也是该通路研究长期受关注的原因。
受体层面的差异,直接决定后续信号强度和代谢输出。 如果实验只看总脂联素水平,而不分析受体表达和活性,就容易误判通路状态。对于论文设计,建议同时检测:
- 受体表达。
- 下游磷酸化水平。
- 代谢终点,如葡萄糖摄取、脂肪酸氧化和甘油三酯含量。
2.2 磷酸化与去磷酸化是信号放大器
在上游受体之外,脂联素通路的调控常落在磷酸化网络上。已有研究提示,脂联素可通过影响AMPK等节点,改变细胞能量感知状态。你提供的知识库也指出,α4可通过与PP2A和YBX1形成三元复合物,降低YBX1磷酸化水平,从而减少PTP1B表达,进而激活胰岛素信号通路。
这一逻辑非常关键,因为它说明脂联素相关效应并不只是“开或关”,而是通过磷酸化水平改变,重塑转录因子功能和胰岛素敏感性。对于代谢重编程而言,这种调控会进一步影响:
- 脂滴形成与分解。
- 线粒体功能。
- 细胞存活与凋亡。
- 炎症因子表达。
2.3 转录调控把短期信号转成长期表型
代谢重编程不是瞬时反应,而是持续性状态改变。脂联素通路若要驱动稳定表型,必须进入转录层面。知识库中提到,随着脂肪量减少,脂肪细胞标志物表达下降,提示分化所需转录过程被抑制。这说明上游信号可以通过转录程序,决定脂肪组织的生成与修复。
从研究角度看,这一层最值得关注的指标包括:
- 脂肪生成相关转录因子。
- 炎症相关趋化因子。
- 线粒体生物发生相关基因。
- 细胞凋亡与再生标志物。
3. 从脂肪组织到肝脏,脂联素通路如何重塑全身代谢
3.1 脂肪组织是起点,但不是终点
知识库中关于α4敲除模型的结果提示,脂肪组织变化会迅速外溢到全身代谢。随着脂肪组织减少,小鼠出现体重变化、肝脏增大、肝甘油三酯累积增加和炎症上升。这说明脂联素相关通路的失衡,会把局部脂肪表型扩展成系统性代谢紊乱。
这一点对临床研究尤其重要。脂肪组织不是被动储能器官,而是内分泌器官。脂联素通路异常后,肝脏往往首先表现为:
- 脂质堆积。
- 糖异生异常。
- 炎症浸润。
- 纤维化风险增加。
3.2 线粒体功能是代谢重编程的执行端
代谢重编程最终要落到线粒体。脂联素通路若增强脂肪酸氧化并改善胰岛素敏感性,通常会伴随线粒体功能优化。相反,如果通路受损,细胞更容易转向脂质合成和炎症状态。
因此,评估脂联素通路时,不能只看血糖和体重。 还应结合:
- 线粒体呼吸链相关指标。
- 氧化应激水平。
- 脂滴大小和数量。
- UCP1等能量耗散标志物。
知识库中提到,在脂肪组织损伤后,特定模型可出现再生恢复,且冷暴露耐受性逐步恢复。这个现象提示,脂联素相关信号可能不仅影响代谢强度,也影响组织修复和功能恢复速度。
3.3 炎症与代谢重编程是互相放大的
代谢病研究中,炎症不是并行事件,而是代谢重编程的重要组成。知识库显示,随着脂肪组织和肝脏病理改变,CCL2、IL-1β、TGF-β1等炎症因子升高,Iba-1阳性细胞浸润增加。这说明脂联素通路若失衡,会同时推动炎症放大和代谢失代偿。
机制上,这种过程常表现为:
- 脂肪组织分泌谱改变。
- 免疫细胞募集增加。
- 胰岛素信号受抑。
- 肝脏和脂肪组织代谢进一步恶化。
这就是典型的“炎症-代谢正反馈”。
4. 研究脂联素通路时,怎样把机制讲完整
4.1 先搭建因果链,再验证节点
高质量机制文章通常要回答四件事:
- 上游刺激是什么。
- 脂联素通路如何被激活。
- 关键中间节点是谁。
- 最终表型是什么。
如果只证明相关性,不证明必要性和充分性,故事就不完整。
建议在实验设计中同时加入:
- 敲除或过表达模型。
- 药理抑制或激活。
- 互作验证。
- 表型救援实验。
4.2 结合组织学和分子学数据
代谢重编程研究不能只依赖qPCR或WB。需要组织学证据支撑。比如脂肪细胞体积变化、肝脏脂滴沉积、炎症浸润和纤维化程度,都是非常重要的终点。
理想的证据链应包括:
- 分子层:受体、磷酸化、转录因子。
- 细胞层:分化、凋亡、脂滴变化。
- 组织层:脂肪组织结构、肝脏病理。
- 整体层:血糖、胰岛素、体重和耐糖试验。
4.3 临床转化要看“能否解释患者差异”
脂联素通路的研究价值,不只在于机制清晰,还在于能否解释患者差异。例如,为什么同样肥胖,有的人更易出现脂肪肝和胰岛素抵抗,有的人则相对耐受。若脂联素通路中某一节点异常,可能就是这种表型分化的分子基础。
这也是为什么科研写作中要把通路、表型和临床场景连起来。这样文章更容易获得审稿人认可。
总结Conclusion
脂联素通路之所以值得持续研究,是因为它不仅调控脂肪细胞功能,还能通过受体、磷酸化、转录和炎症网络,推动全身代谢重编程。其核心价值在于把局部脂肪信号转化为肝脏、肌肉和免疫系统的系统性代谢变化。
如果你正在做代谢病、脂肪肝或胰岛素抵抗方向的课题,建议优先围绕“脂联素通路-关键互作节点-代谢表型”构建因果链。这样更符合E-E-A-T导向的高质量研究表达。
如果你希望进一步把这条机制链写成论文框架、基金假说或图示逻辑,可以借助解螺旋 完成选题拆解、机制梳理和写作优化,让脂联素通路的故事更完整、更容易发表。
- 引言Introduction
- 1. 脂联素通路为什么能影响代谢重编程
- 2. 脂联素通路调控代谢重编程的关键机制
- 3. 从脂肪组织到肝脏,脂联素通路如何重塑全身代谢
- 4. 研究脂联素通路时,怎样把机制讲完整
- 总结Conclusion