34
 分享
引言Introduction
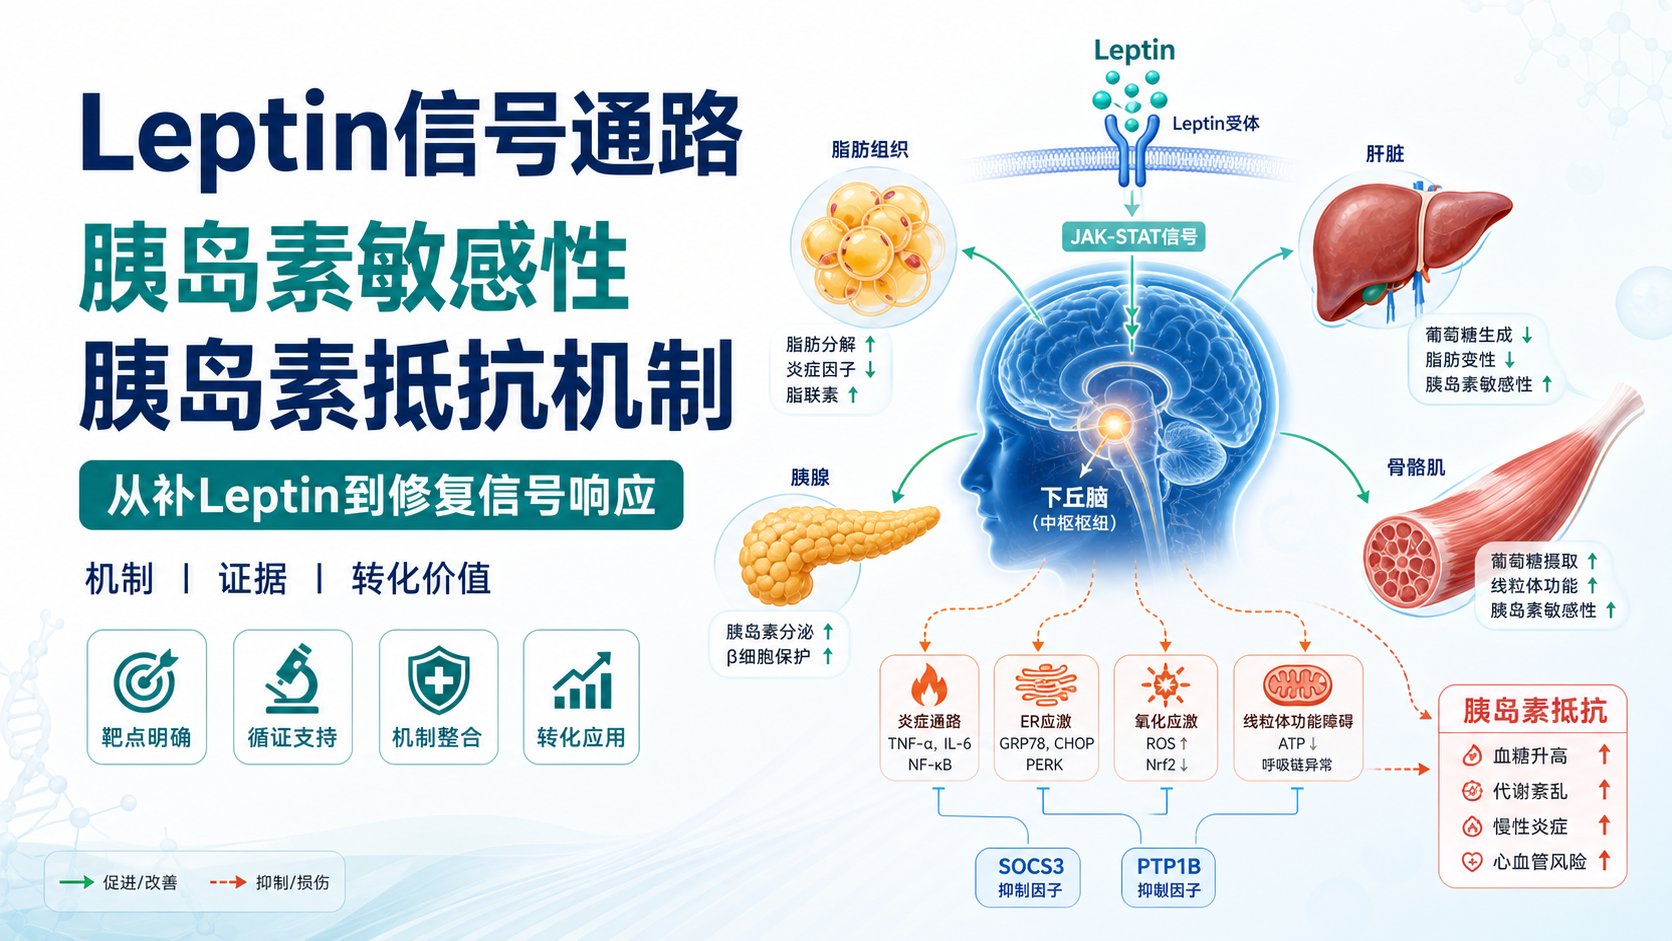
Leptin不仅调控食欲,还深度参与能量稳态和胰岛素敏感性。当Leptin信号失衡时,肥胖、炎症和胰岛素抵抗往往同时出现。 对医学生、医生和科研人员而言,真正的难点不是“知道Leptin存在”,而是厘清它如何在中枢和外周共同推动代谢紊乱。
1. Leptin信号通路的基础框架
1.1 Leptin的来源与受体分布
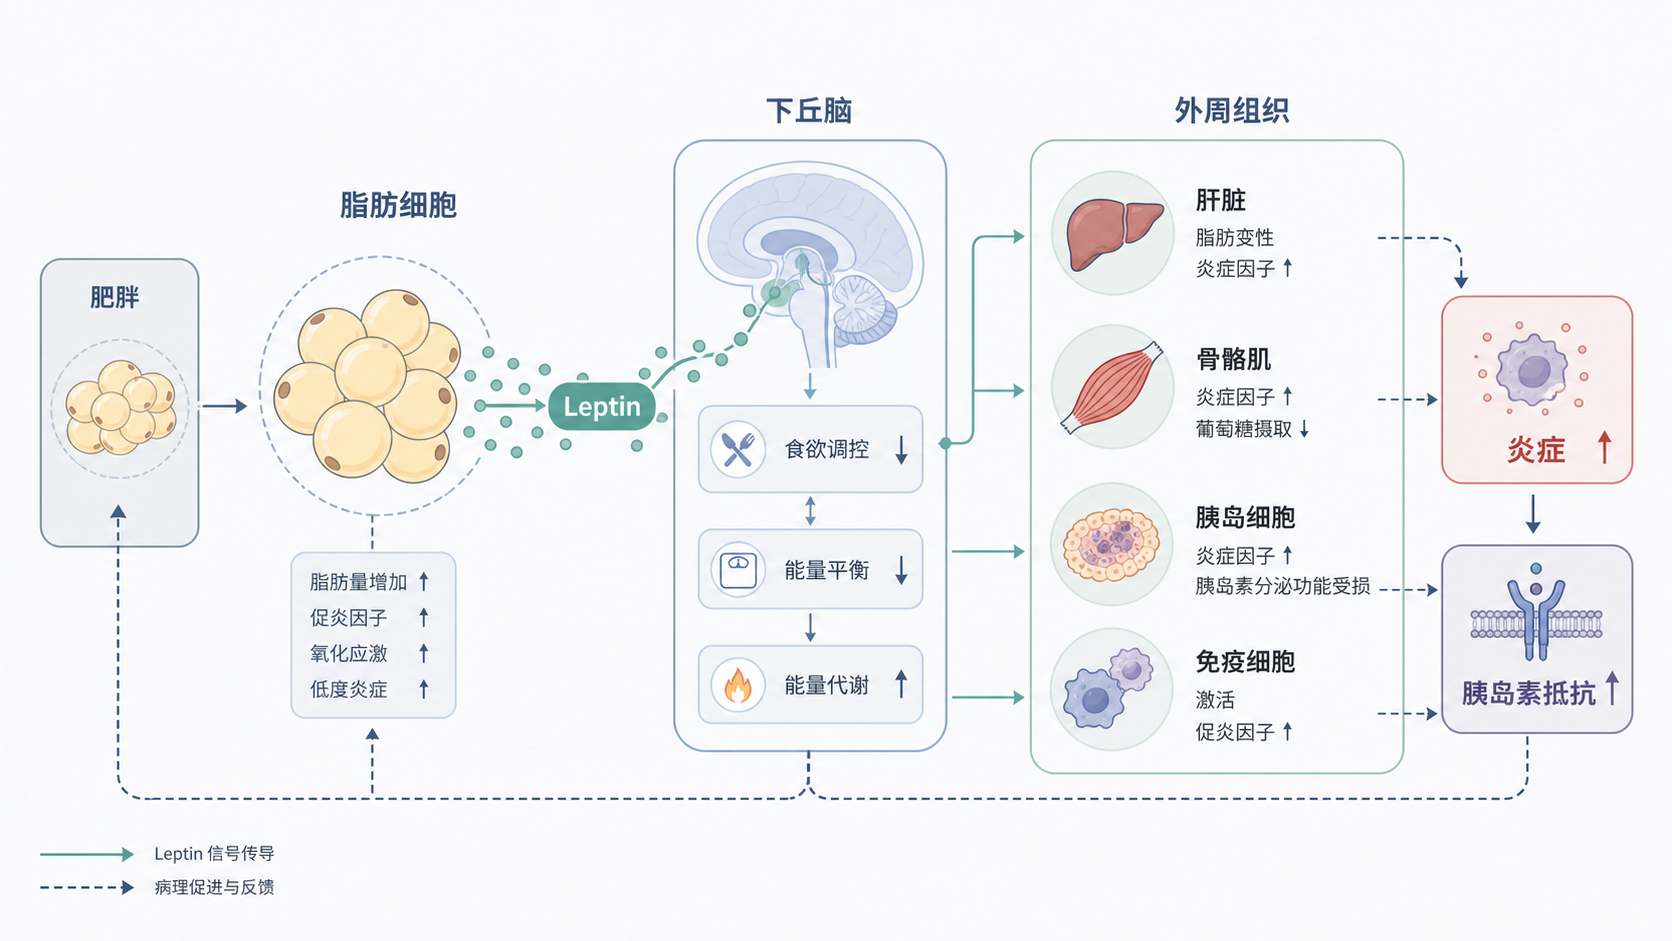
Leptin主要由白色脂肪组织分泌。脂肪储量增加时,Leptin水平通常升高。它通过结合Leptin受体Ob-R发挥作用,尤其是长亚型Ob-Rb,具有完整的细胞内信号转导能力。
Leptin信号通路的核心不是单一分子,而是“受体-激酶-转录因子”的级联放大。 经典下游包括JAK2/STAT3、PI3K/AKT和MAPK通路。这些通路共同影响食欲、能量消耗、糖脂代谢和胰岛素反应。
1.2 经典信号轴与负反馈
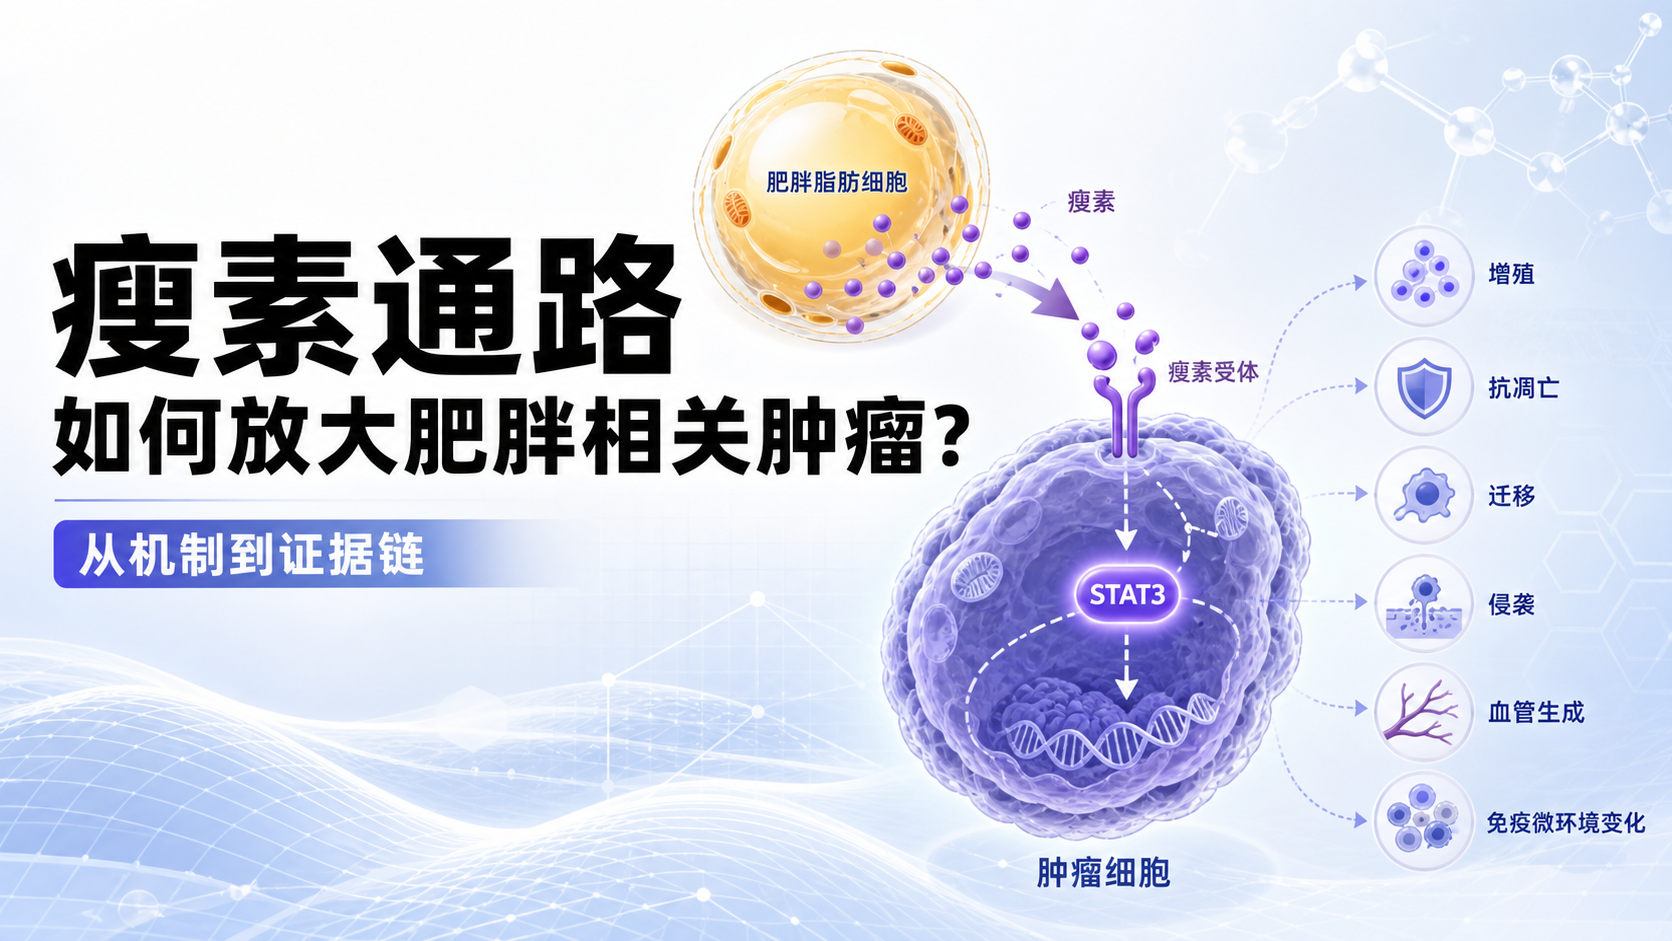
Leptin与Ob-Rb结合后,JAK2被激活,进一步促进STAT3磷酸化并入核,调控SOCS3、POMC等基因表达。同时,PI3K/AKT通路可影响葡萄糖转运和代谢酶活性。
但这一系统存在明显负反馈。SOCS3、PTP1B和ER stress相关分子都可抑制Leptin信号。 在肥胖状态下,这些抑制因素常被上调,导致“高Leptin水平但低生物学效应”的Leptin抵抗。
2. Leptin信号通路如何影响胰岛素敏感性
2.1 中枢作用:下丘脑是关键枢纽
Leptin最早被认识的作用位点是下丘脑。它可抑制摄食、促进能量消耗,并通过神经内分泌网络影响外周胰岛素敏感性。
当Leptin信号受损时,下丘脑对能量状态的感知失真,交感神经输出、食欲调控和肝糖输出都会发生改变。 这会间接加重高胰岛素血症和外周胰岛素抵抗。
更重要的是,中枢Leptin抵抗常与肥胖同步出现。临床上常见“血清Leptin升高,但体重继续增加”,这提示信号通路并非缺失,而是响应下降。
2.2 外周作用:肝、肌肉和脂肪组织
在外周组织中,Leptin可影响脂肪酸氧化、葡萄糖摄取和脂质沉积。正常情况下,Leptin有助于降低脂毒性负担,改善胰岛素作用。
但在肥胖和慢性炎症背景下,Leptin信号常被重编程。Leptin升高不再代表保护,反而与炎症放大、脂肪组织纤维化和胰岛素抵抗并存。
例如,在肝脏中,Leptin异常可促进脂质代谢紊乱和炎症反应。在骨骼肌中,胰岛素刺激下的葡萄糖利用效率下降,进一步加重高血糖。
3. Leptin与胰岛素抵抗的关键机制
3.1 炎症通路交叉是主线
Leptin和胰岛素信号并不是平行运行。它们在多个层面交叉。Leptin可激活炎症相关信号,如NF-κB和JNK,而这些通路本身又会抑制胰岛素受体底物IRS的正常磷酸化。
IRS蛋白功能受损,是胰岛素抵抗形成的核心节点之一。 当IRS-1/2的异常丝氨酸磷酸化增加时,PI3K/AKT通路下游响应下降,葡萄糖摄取减少,糖原合成受阻。
此外,Leptin还可通过促进巨噬细胞活化、增加TNF-α、IL-6等炎症因子,间接削弱胰岛素敏感性。这也是肥胖相关低度慢性炎症的重要组成部分。
3.2 ER应激、氧化应激与线粒体功能
肥胖状态下,Leptin信号异常常伴随内质网应激和氧化应激升高。二者会进一步损伤胰岛素信号转导,形成恶性循环。
线粒体功能障碍也不容忽视。当脂肪酸氧化不足、ROS积累和ATP生成效率下降时,胰岛素敏感组织更容易出现代谢失衡。 Leptin原本可促进能量消耗,但在Leptin抵抗背景下,这种保护作用被削弱。
这类机制在脂肪组织、肝脏和胰岛细胞中都可观察到。尤其在胰岛β细胞,长期高脂负荷和炎症环境会降低其分泌储备,最终促成2型糖尿病进展。
3.3 SOCS3和PTP1B是重要抑制因子
SOCS3和PTP1B是Leptin与胰岛素信号交叉抑制的关键分子。SOCS3可抑制JAK2活化,PTP1B则可去磷酸化受体及相关蛋白,削弱信号强度。
从研究设计角度看,这两个分子非常重要。它们既是Leptin抵抗的分子标志,也是干预靶点的候选对象。 在实验中,如果观察到Leptin刺激后STAT3磷酸化下降,SOCS3或PTP1B上升,往往提示通路反馈失衡。
4. 研究进展中的实验思路与证据链
4.1 机制研究常见的验证路径
围绕Leptin信号通路研究胰岛素抵抗,常见证据链包括:
- 检测血清Leptin水平和胰岛素敏感性指标。
- 分析组织中Ob-R、p-JAK2、p-STAT3、SOCS3、PTP1B表达。
- 结合细胞模型观察葡萄糖摄取、AKT磷酸化和炎症因子变化。
- 采用敲除、过表达或药理抑制验证因果关系。
高质量研究通常不会只停留在相关性,而是进一步证明“Leptin信号改变导致了胰岛素信号异常”。 这也是E-E-A-T要求下最需要强调的部分。
4.2 动物与临床研究的连接
动物研究常用ob/ob小鼠、db/db小鼠、高脂饮食模型和基因操作模型。临床研究则多关注肥胖、2型糖尿病、代谢综合征患者的Leptin水平、胰岛素抵抗指数和炎症谱。
需要注意的是,单纯Leptin升高不能等同于通路激活。 在肥胖人群中,血清Leptin常因脂肪量增加而上升,但受体后信号可能已经钝化。这正是Leptin抵抗的关键特征。
因此,真正有价值的研究应同时结合血液指标、组织信号和功能读出,而不是只看一个分子。
5. 未来方向与转化价值
5.1 从“补Leptin”转向“修复信号响应”
早期研究曾设想通过外源性Leptin纠正代谢紊乱,但在多数肥胖患者中,问题并不是Leptin不足,而是Leptin抵抗。所以未来重点更可能是恢复受体后信号,而不是简单提高Leptin水平。
潜在方向包括:
- 抑制SOCS3和PTP1B
- 改善下丘脑炎症
- 缓解ER应激和氧化应激
- 恢复线粒体代谢灵活性
- 联合干预Leptin与胰岛素通路交叉节点
5.2 对科研选题的启发
对于基础和转化研究者,Leptin信号通路是一个很好的切入点。它既能连接肥胖,又能连接胰岛素抵抗、炎症和器官间通讯。这使其非常适合构建“机制清晰、表型明确、可转化性强”的研究故事。
如果你正在做相关课题,建议优先关注:
- 受体后信号是否真的下降
- 哪个组织是主效应器官
- 炎症、代谢和神经调控谁是上游
- 干预是否能同时改善Leptin和胰岛素反应
总结Conclusion
Leptin信号通路介导胰岛素抵抗的核心,不在于Leptin是否存在,而在于其信号是否被“抵消、钝化或重编程”。炎症、SOCS3、PTP1B、ER应激和线粒体功能障碍共同构成了Leptin抵抗与胰岛素抵抗的交汇点。
对医学生和科研人员来说,理解这条通路的关键,是把“分子变化”放回到“组织-系统-疾病”的框架中去看。若你希望进一步系统梳理机制图、设计实验链路或快速提炼文献要点,建议结合解螺旋的文献精读与科研梳理工具,提升选题和写作效率。
- 引言Introduction
- 1. Leptin信号通路的基础框架
- 2. Leptin信号通路如何影响胰岛素敏感性
- 3. Leptin与胰岛素抵抗的关键机制
- 4. 研究进展中的实验思路与证据链
- 5. 未来方向与转化价值
- 总结Conclusion