57
 分享
引言Introduction
酮体不是“饥饿时的备用燃料”这么简单。对医学生、医生和科研人员来说,更关键的是弄清楚,酮体如何在肝脏生成,在外周组织被利用,以及这些过程受哪些酶和信号调控。理解酮体代谢通路,才能读懂禁食、糖尿病酮症和肿瘤代谢中的关键变化。
1. 酮体代谢通路的基本框架
1.1 酮体从哪里来
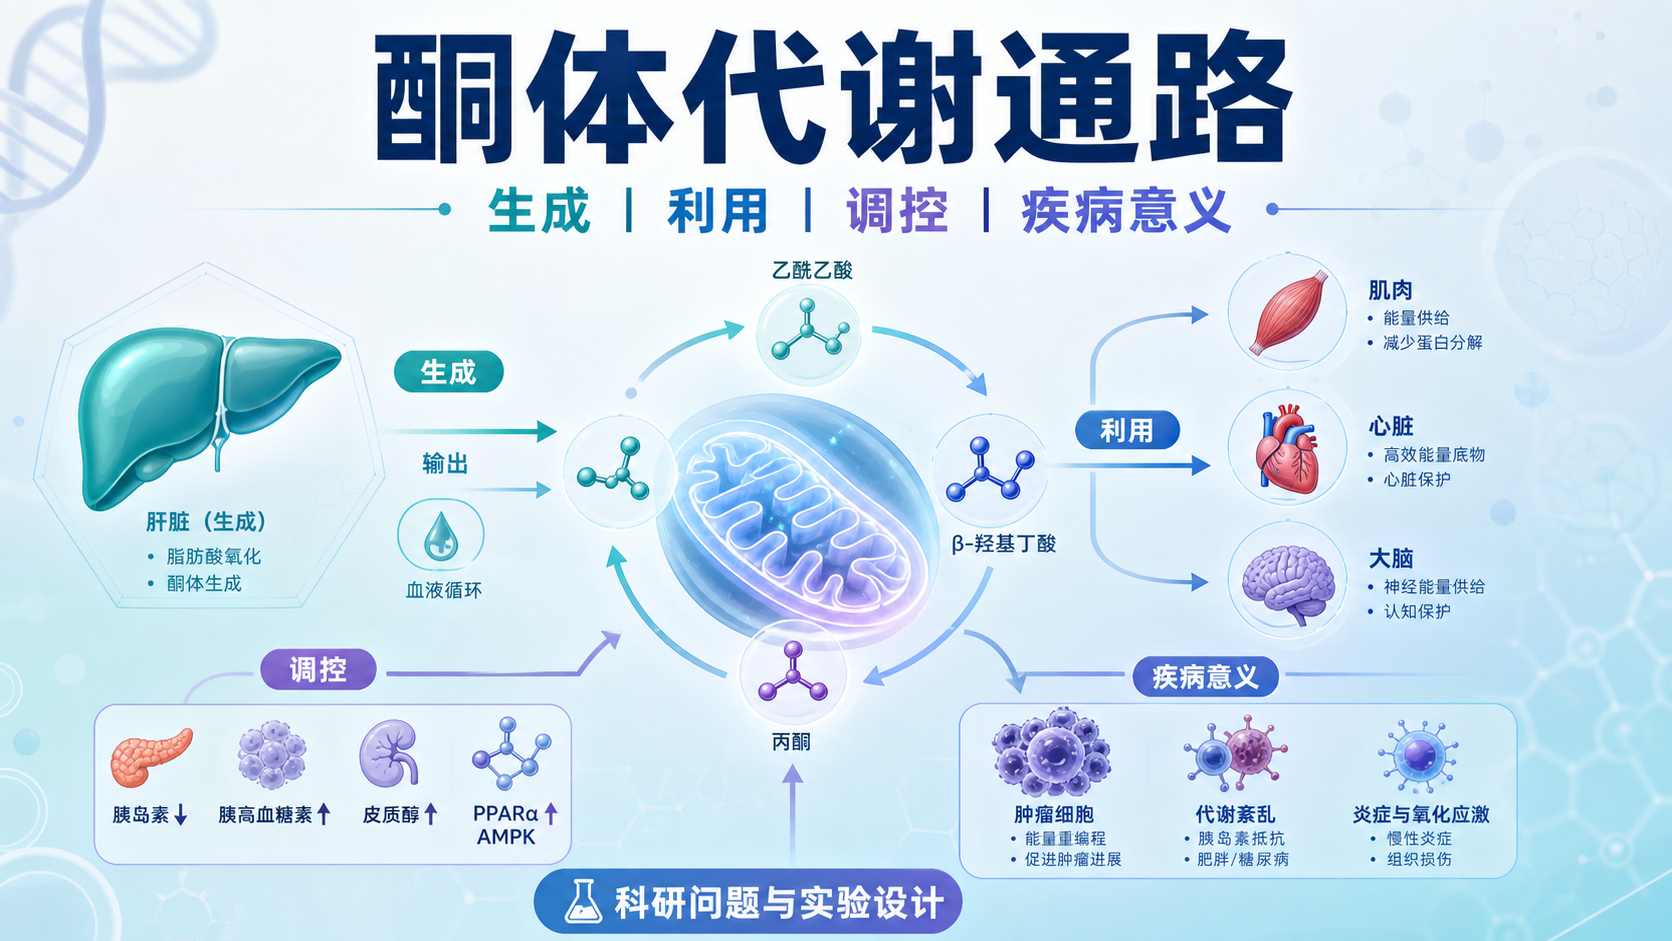
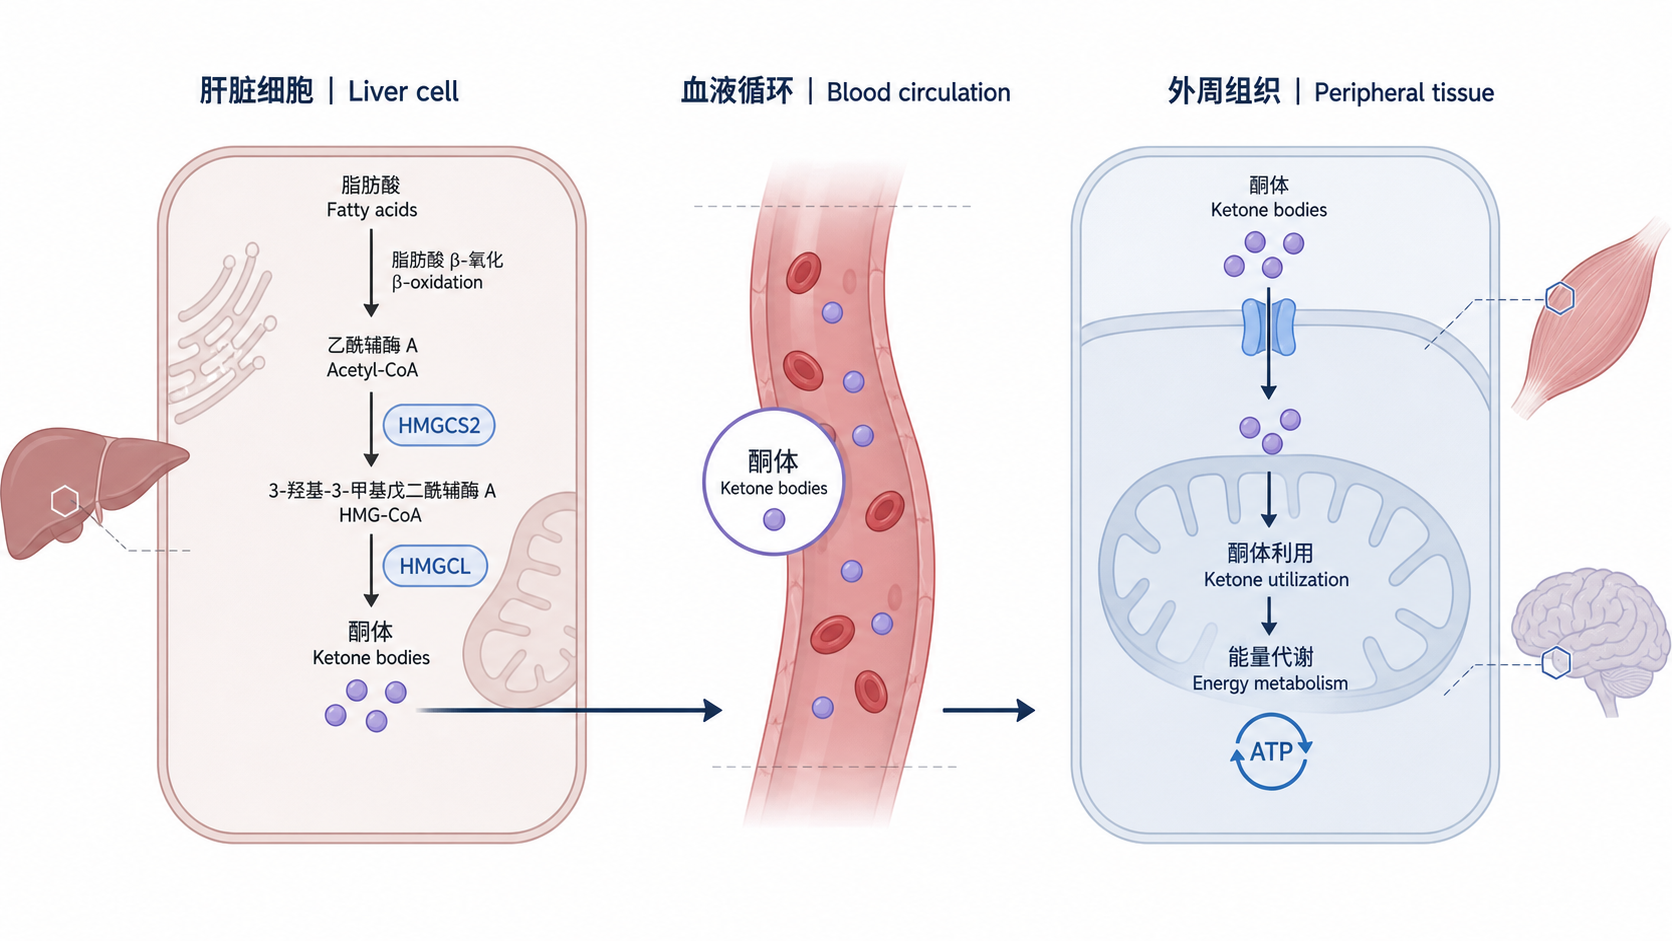
酮体主要包括乙酰乙酸、β-羟丁酸和丙酮。它们主要在肝脏线粒体内由脂肪酸氧化产生的乙酰辅酶A转化而来 。当葡萄糖供应不足、胰岛素下降、脂肪分解增强时,肝脏会把更多乙酰辅酶A导向酮体生成,而不是继续进入三羧酸循环。
这个过程常见于以下状态。
- 长期禁食。
- 生酮饮食。
- 1型糖尿病失控时。
- 新生儿早期适应阶段。
酮体的生理意义,是为脑、心肌、骨骼肌等组织提供替代能量。 在持续低糖环境下,它能减少对葡萄糖的依赖。
1.2 酮体的生成与输出
酮体生成主要发生在线粒体内,第一步由HMGCS2, 线粒体3-羟基-3-甲基戊二酰辅酶A合酶2 催化。它把乙酰乙酰辅酶A与乙酰辅酶A缩合,形成HMG-CoA。随后,HMGCL, HMG-CoA裂解酶 将其裂解为乙酰乙酸。
乙酰乙酸还可以在BDH1, β-羟丁酸脱氢酶1 作用下,与NADH/NAD+状态联动,互相转化为β-羟丁酸。β-羟丁酸通常是血中含量最高的酮体。 丙酮则多由乙酰乙酸自发脱羧生成。
肝脏本身通常不利用自己生成的酮体,因为它缺乏关键利用酶。这个特点决定了酮体具有典型的“肝生成、外周利用”模式。
2. 酮体利用的关键酶与组织分布
2.1 外周组织如何“吃掉”酮体
酮体进入外周组织后,先在细胞内被转回乙酰乙酸,再转化为乙酰辅酶A,最终进入TCA循环产能。这个过程主要在线粒体中完成。
关键步骤包括:
- β-羟丁酸被BDH1 氧化为乙酰乙酸。
- 乙酰乙酸在OXCT1, 琥珀酰辅酶A:乙酰乙酸CoA转移酶1 作用下生成乙酰乙酰辅酶A。
- 乙酰乙酰辅酶A由ACAT1 裂解为两分子乙酰辅酶A。
OXCT1是酮体利用的限速样关键节点之一。 它决定外周组织是否具备高效利用酮体的能力。
2.2 哪些组织最依赖酮体
在禁食或低糖状态下,以下组织对酮体利用更明显。
- 脑组织。
- 心肌。
- 骨骼肌。
- 肾脏皮质。
相比之下,肝脏主要负责生产而非消耗。红细胞因缺乏线粒体,不能利用酮体。因此,酮体代谢通路本质上是一个线粒体依赖的能量重分配系统。
3. 酮体生成的调控机制
3.1 激素与底物决定通路方向
酮体生成不是孤立事件,而是全身代谢状态的反映。其上游最重要的调控因素,是胰岛素和胰高血糖素的比例变化。
当胰岛素下降、胰高血糖素上升时,会出现以下变化。
- 脂肪组织脂解增强。
- 游离脂肪酸进入肝脏增加。
- β-氧化增强。
- 乙酰辅酶A堆积。
- 草酰乙酸更多用于糖异生。
这样一来,TCA循环相对受限,乙酰辅酶A更容易进入酮体生成通路。这也是为什么糖异生增强时,酮体合成往往同步上升。
3.2 转录水平调控
酮体生成相关基因并非恒定表达。禁食状态下,肝细胞会通过转录调控上调HMGCS2等酶的表达。已知与能量感知相关的通路,如PPARα、FGF21、AMPK 等,常参与这一适应过程。
其中,PPARα在脂肪酸氧化与酮体生成中具有核心地位。当脂肪酸氧化增强时,肝脏更容易启动酮体生成程序。 这不是单一酶的变化,而是整个代谢网络的重编程。
3.3 线粒体氧化还原状态的影响
酮体生成和β-羟丁酸/乙酰乙酸比值,和线粒体内NADH/NAD+状态密切相关。NADH升高时,更利于乙酰乙酸向β-羟丁酸转化。
这意味着,酮体并不只是“替代燃料”,它本身还是反映肝线粒体氧化还原状态的代谢读数 。在病理研究中,这一点很重要。它能帮助解释为什么同样是酮症,不同疾病背景下血β-羟丁酸水平和临床意义并不完全一致。
4. 酮体代谢的疾病相关意义
4.1 生理性酮症与病理性酮症
生理性酮症常见于禁食、运动或生酮饮食,通常是可逆的适应反应。此时酮体升高,但酸碱平衡多可维持稳定。
病理性酮症最典型的是糖尿病酮症酸中毒 。在胰岛素严重不足时,脂解失控,肝脏大量产酮,血酮体过高可导致代谢性酸中毒。这时问题不在“有酮体”,而在“生成过多且利用失衡”。
4.2 肿瘤和神经系统研究中的关注点
在肿瘤代谢研究中,酮体代谢通路常被视为适应性代谢重塑的一部分。一些肿瘤在特定微环境下可能改变对酮体的摄取和利用能力,但这种现象具有明显肿瘤类型和背景差异,不能一概而论。
在神经系统研究中,β-羟丁酸除了供能外,还常被讨论其信号分子属性。需要强调的是,代谢作用和信号作用应分开分析 ,否则容易混淆机制。
5. 做科研时,如何围绕酮体通路建立清晰问题
5.1 常见研究切入点
如果你在做基础或转化研究,酮体代谢通路可从三个层面切入。
- 上游,谁在驱动产酮。
- 中游,哪些关键酶决定生成效率。
- 下游,哪些组织在利用酮体,表型如何改变。
例如,你可以关注以下问题。
- HMGCS2为何在禁食时显著上调。
- OXCT1在不同组织中的表达差异。
- β-羟丁酸变化是否仅仅反映供能,还是参与信号调控。
真正有价值的问题,通常不是“酮体升高了没有”,而是“哪一步发生了限速变化”。
5.2 实验设计的基本原则
做通路研究时,建议把“代谢物变化”和“酶表达变化”分开验证。常见组合包括:
- 血酮体检测。
- 关键酶mRNA和蛋白检测。
- 线粒体功能评估。
- 同位素示踪分析。
如果研究目的在机制层面,最好进一步区分:
- 酮体生成改变。
- 酮体转运改变。
- 酮体氧化利用改变。
这样才能避免把“产得多”误判为“用得少”,或者把“用得快”误判为“生成不足”。
总结Conclusion
酮体代谢通路的核心逻辑很清楚。肝脏在低糖状态下通过HMGCS2、HMGCL、BDH1生成酮体,外周组织再通过BDH1、OXCT1、ACAT1将其转化为乙酰辅酶A供能。 这一过程受激素状态、脂肪酸氧化、线粒体氧化还原状态和转录调控共同控制。
对医学生、医生和科研人员来说,掌握这条通路,不仅有助于理解生理适应,也有助于分析糖尿病酮症、代谢病和肿瘤代谢重编程等问题。若你需要进一步梳理酮体代谢通路的实验设计、文献框架或课题切入点,可以借助解螺旋 获取更系统的研究支持。
- 引言Introduction
- 1. 酮体代谢通路的基本框架
- 2. 酮体利用的关键酶与组织分布
- 3. 酮体生成的调控机制
- 4. 酮体代谢的疾病相关意义
- 5. 做科研时,如何围绕酮体通路建立清晰问题
- 总结Conclusion