76
 分享

引言Introduction
RLR信号通路是细胞识别病毒RNA的重要先天免疫轴。对医学生、医生和科研人员来说,真正的难点不只是“识别受体”,而是理解它如何在线粒体膜上组装成抗病毒信号体 ,并快速放大干扰素反应。

1. RLR信号通路的核心识别事件
1.1 病毒RNA是如何被感知的
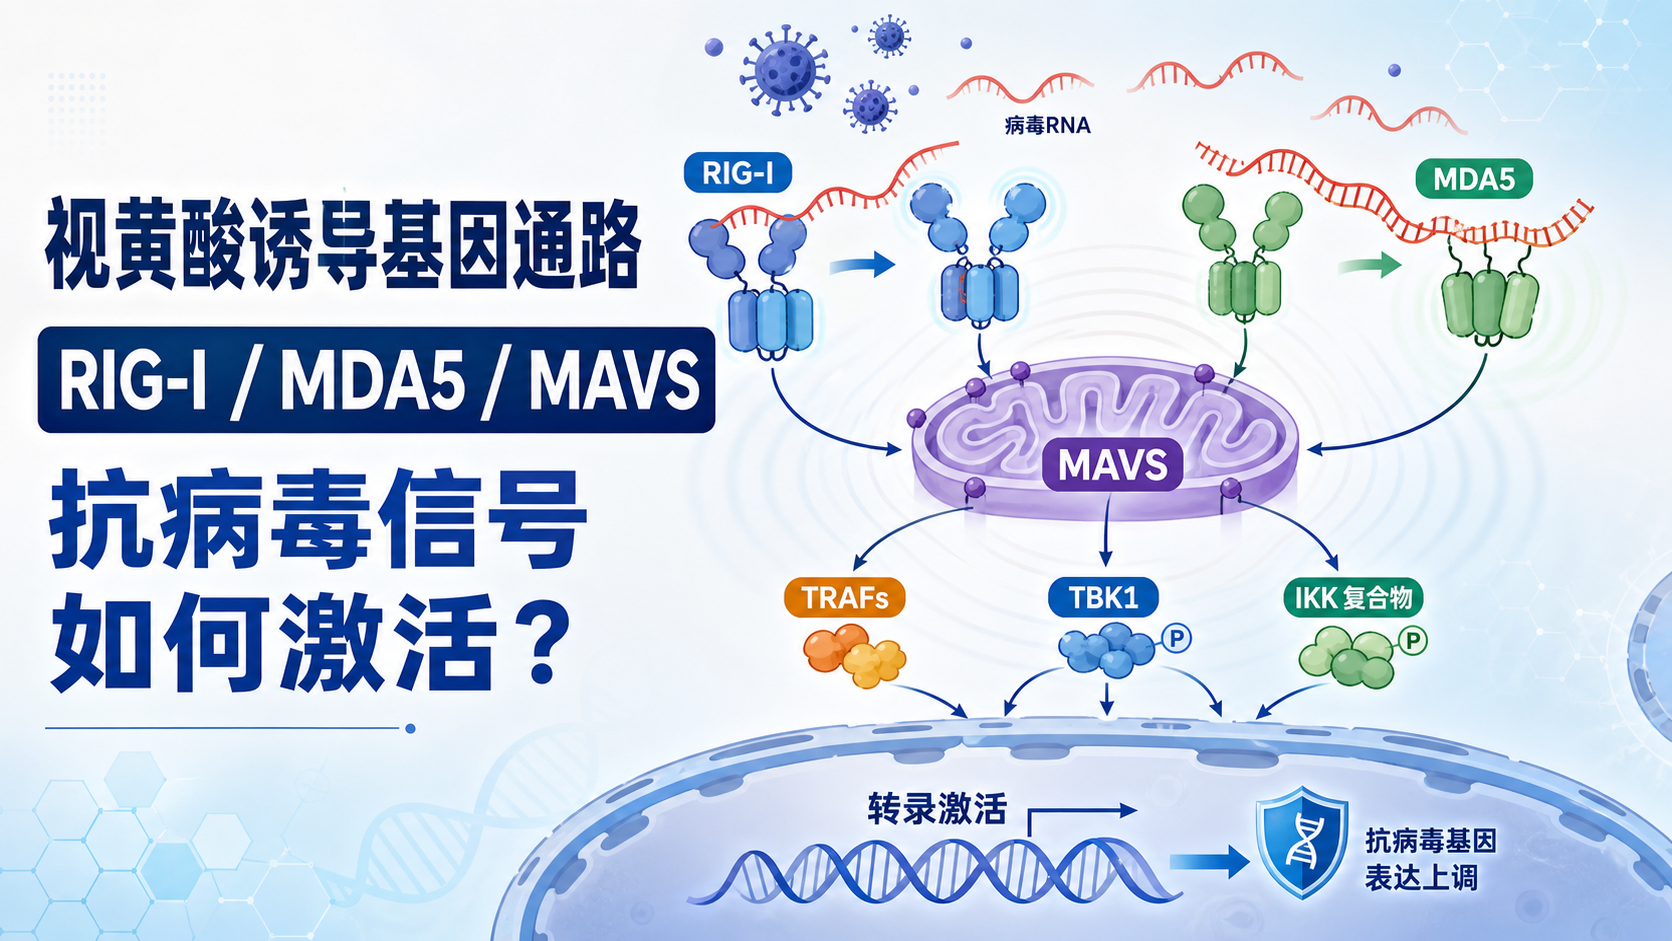
RLR家族主要包括RIG-I、MDA5和LGP2。它们位于细胞质内,负责识别病毒感染后出现的RNA异常结构。RIG-I更偏好识别5’端带三磷酸的短链RNA和短双链RNA,MDA5更偏好长链双链RNA。
这一步决定了后续免疫反应的起点。病毒复制过程中形成的RNA中间体,往往会暴露宿主细胞平时不接触的分子特征。RLR因此成为细胞内“早期预警系统”。
1.2 受体激活后的构象变化
RIG-I和MDA5在未激活状态下处于自抑制构象。与RNA结合后,其N端CARD结构域暴露,并伴随磷酸化、泛素化等修饰。CARD暴露是RLR信号通路启动的关键分子开关。
这一过程的意义在于,把“识别病毒”转化为“募集下游适配蛋白”的信号。没有CARD暴露,后续的MAVS聚合就无法高效发生。
2. 线粒体抗病毒信号体如何组装
2.1 MAVS是信号体的核心支架
RIG-I和MDA5通过暴露的CARD结构域与线粒体膜上的MAVS结合。MAVS也被称为VISA、IPS-1或Cardif。它定位于线粒体外膜,是RLR信号通路的关键适配子蛋白。
MAVS不是简单的桥接分子,而是线粒体抗病毒信号体的核心骨架。 一旦被激活,MAVS可形成聚集和高分子纤维样结构,增强信号放大效率。
2.2 组装过程的层级放大
线粒体抗病毒信号体的组装通常可理解为三步。
- 病毒RNA被RIG-I或MDA5识别。
- 受体CARD与MAVS CARD发生同源相互作用。
- MAVS招募TRAF3、TRAF6等分子,启动下游级联反应。
这个过程具有明显的“少量输入,强烈输出”特征。单个受体识别事件可以被转化为大量干扰素和炎症因子转录。 这也是线粒体作为免疫信号平台的重要原因。
2.3 为什么是线粒体,而不是其他细胞器
MAVS定位于线粒体外膜,使线粒体不仅是能量工厂,也是免疫信号整合平台。线粒体膜环境有利于信号复合物聚集,也便于与ROS、代谢状态和细胞死亡程序发生交叉调控。
从实验和生物学意义上看,这种定位让RLR信号通路具备空间优势。信号体不是随机漂浮在胞质中,而是锚定在膜上形成稳定平台。
3. 下游信号如何放大抗病毒反应
3.1 TBK1和IKK复合物的激活
MAVS激活后,TRAF3和TRAF6可进一步募集并激活TBK1/IKKε以及IKK复合物。这里最重要的结果是两个转录因子被激活,分别是IRF3和NF-κB。
TBK1/IKKε主要驱动IRF3磷酸化,IKK复合物主要释放NF-κB。 两条通路并行推进,构成抗病毒应答的核心框架。
3.2 IRF3和NF-κB分别负责什么
IRF3进入细胞核后,主要促进IFN-β等I型干扰素基因转录。NF-κB进入细胞核后,则驱动IL-6、TNF-α等炎症因子表达。
这意味着RLR信号通路并不只是“抗病毒”,它还同步塑造局部炎症微环境。干扰素负责建立抗病毒状态,炎症因子负责增强免疫细胞募集和效应反应。
3.3 抗病毒效应如何实现
I型干扰素分泌后,可通过自分泌和旁分泌方式激活JAK-STAT通路,上调多种干扰素刺激基因。最终效果包括:
- 抑制病毒复制和装配。
- 提高周围细胞抗病毒状态。
- 增强自然杀伤细胞和巨噬细胞活性。
- 限制感染扩散。
从临床和实验视角看,RLR信号通路的终点不是单一因子,而是一个抗病毒基因程序。
4. 线粒体抗病毒信号体的调控与交叉网络
4.1 负调控保证反应不过度
RLR通路必须被严格控制,否则会导致持续性炎症。RIG-I和MDA5的激活依赖适当的翻译后修饰,去磷酸化、去泛素化等过程也会影响其活性。MAVS本身的聚集状态同样会被调节。
这种精细调控的本质,是在抗病毒效率和炎症损伤之间寻找平衡。 免疫反应太弱,病毒可复制;过强,则可能造成组织损伤。
4.2 与NLR和TLR通路的协同
RLR信号通路并非孤立运行。它与TLR、NLR等通路存在广泛交叉。
- TLR3、TLR7/8、TLR9可在内体中识别核酸,并与RLR形成互补。
- RLR激活后的干扰素和炎症因子,能够影响NLRP3炎性小体活化。
- 反过来,炎症微环境也会改变RLR相关分子的表达和响应阈值。
这种协同机制提高了机体对病毒感染的识别覆盖率。一个通路负责胞质监测,另一个通路负责内体监测。
4.3 与线粒体状态的关联
由于MAVS位于线粒体外膜,线粒体损伤、膜电位变化和ROS生成都可能影响RLR信号输出。对于科研人员来说,这也是常见实验变量。若细胞处于应激状态,RLR激活强度和下游读数可能发生明显偏移。
因此,研究RLR信号通路时,不能只看RNA刺激本身,还要同时评估细胞状态、线粒体功能和代谢背景。这决定了结果是否可解释。
5. 研究RLR通路时常看的标志物与实验读出
5.1 常用标志物
RLR通路的核心检测对象包括:
- 受体:RIG-I、MDA5、LGP2。
- 适配蛋白:MAVS。
- 关键信号分子:TRAF3、TRAF6、TBK1、IKKε、IKK复合物。
- 转录因子:IRF3、IRF7、NF-κB。
- 效应分子:IFN-α、IFN-β、IL-6、TNF-α。
如果要判断通路是否被激活,最有价值的不是单看某一个蛋白总量,而是看磷酸化、核转位和下游因子表达。
5.2 常用检测思路
实验上通常会组合使用多种方法。
- Western blot,检测TBK1、IRF3等磷酸化水平。
- qPCR,检测IFN-β、IL-6、TNF-α等mRNA变化。
- ELISA,检测上清或血清中的细胞因子蛋白水平。
- 免疫荧光,观察IRF3核转位。
这些读出相互补充。单一指标容易偏差,组合证据更能反映RLR信号通路真实状态。
6. 从机制到研究设计的应用价值
6.1 为什么这条通路值得重点研究
RLR介导的线粒体抗病毒信号体,是理解宿主抗RNA病毒免疫的关键入口。它适用于解释多类场景,包括病毒感染、先天免疫缺陷、炎症异常以及免疫调控研究。
对基础研究而言,它连接了RNA识别、膜信号转导、转录激活和炎症输出。对转化研究而言,它也为抗病毒药物筛选、免疫佐剂设计和炎症干预提供了靶点思路。
6.2 如何提升实验与写作效率
在具体研究中,很多人会卡在文献整理、通路图绘制和实验结果串联。这正是解螺旋可以帮助解决的地方。 如果你需要更快梳理RLR信号通路、规范绘制机制图,或者把实验数据按通路逻辑组织成论文内容,解螺旋能提供更适合科研写作的支持,减少重复查找和低效修改。
总结Conclusion
RLR信号通路的核心,不只是“识别病毒RNA”,而是通过线粒体外膜上的MAVS组装抗病毒信号体,把识别事件放大为IFN和炎症因子的系统性应答。理解RLR介导的线粒体抗病毒信号体组装,有助于把通路机制、实验指标和疾病意义串联起来。
对于需要写作综述、整理课题思路或优化实验方案的医学生、医生和科研人员,借助解螺旋,可以更高效地完成通路梳理、机制表达和论文内容组织。
- 引言Introduction
- 1. RLR信号通路的核心识别事件
- 2. 线粒体抗病毒信号体如何组装
- 3. 下游信号如何放大抗病毒反应
- 4. 线粒体抗病毒信号体的调控与交叉网络
- 5. 研究RLR通路时常看的标志物与实验读出
- 6. 从机制到研究设计的应用价值
- 总结Conclusion