70
 分享
引言Introduction
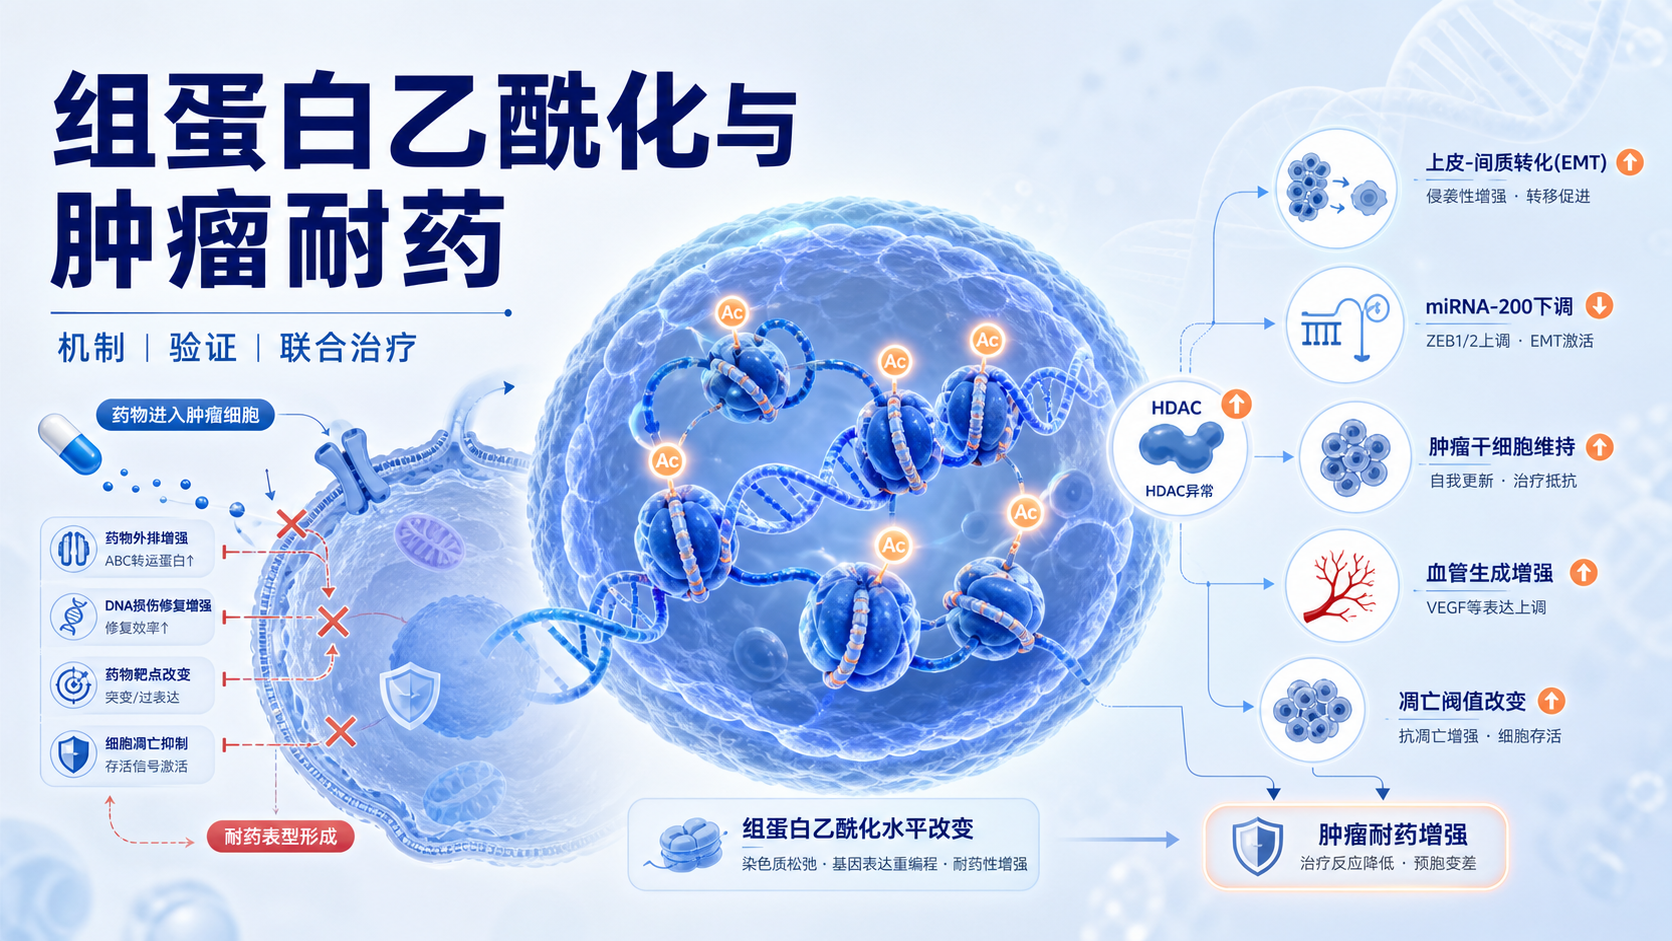
肿瘤耐药不是单一基因突变那么简单。组蛋白乙酰化作为关键表观遗传修饰,正在影响药物敏感性、EMT、肿瘤干细胞和复发风险。 对医学生和科研人员来说,难点在于,如何把分子机制和临床耐药现象真正连起来。
1. 组蛋白乙酰化为何会影响肿瘤耐药
1.1 乙酰化改变染色质可及性
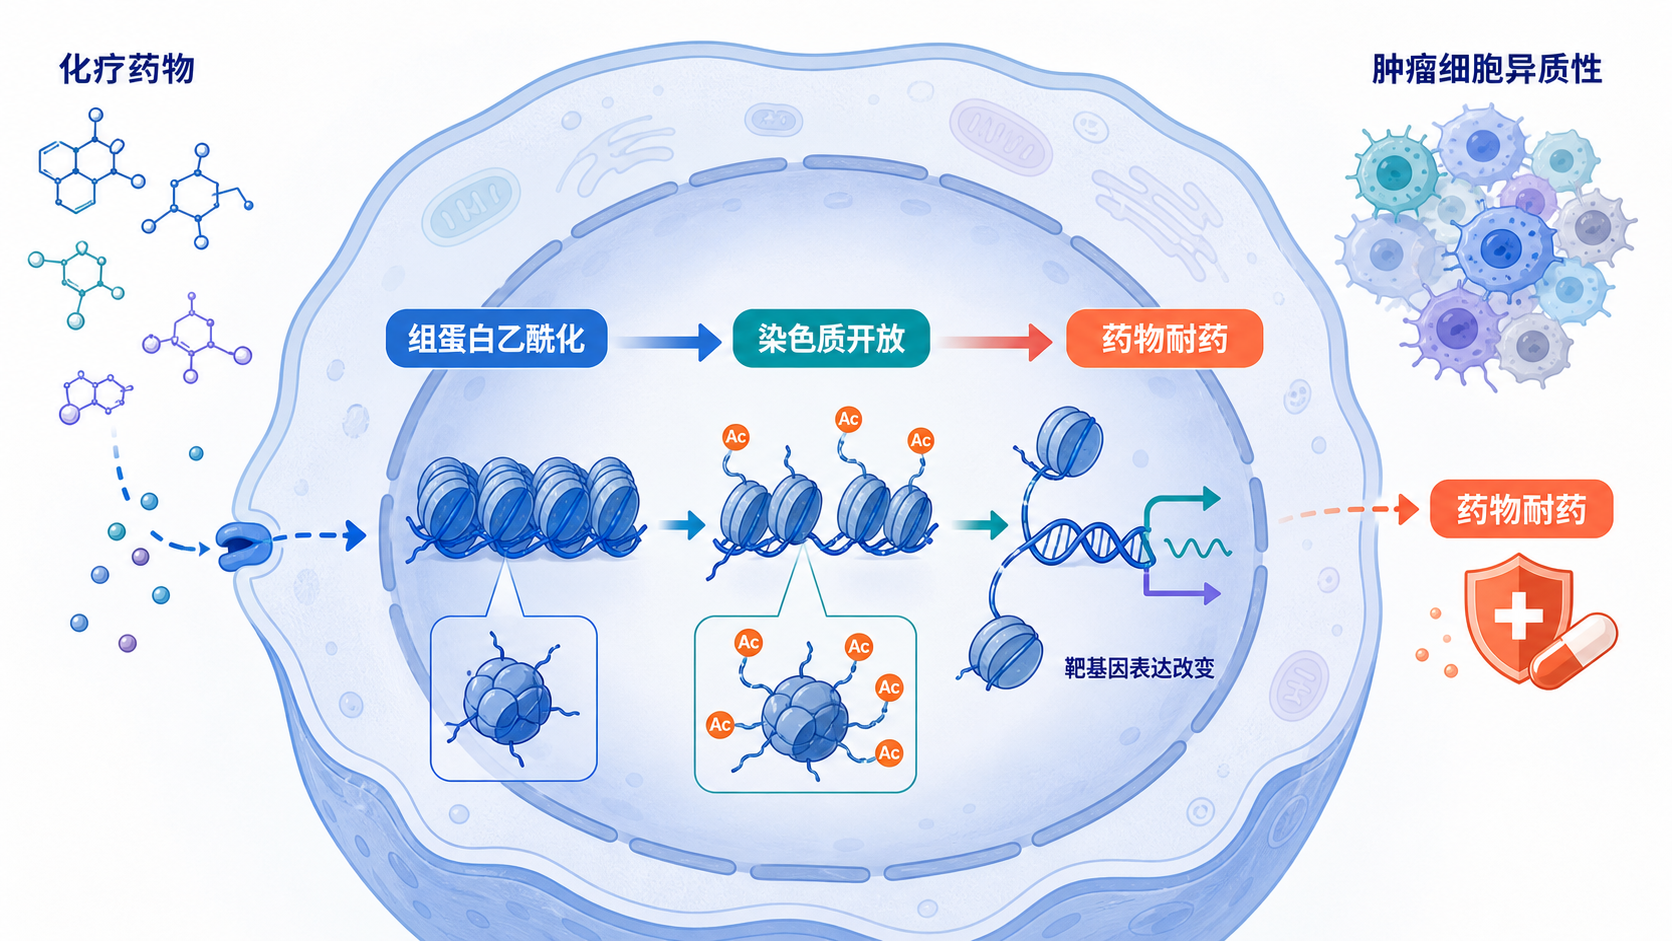
组蛋白乙酰化通常发生在H3、H4等组蛋白尾部赖氨酸残基上。它会中和正电荷,削弱组蛋白与DNA的结合。结果是染色质更开放,转录更容易发生。这意味着,药物应答相关基因、凋亡基因、干性相关基因都可能被重新编程。
在肿瘤中,这种调控并不是孤立事件。它常与DNA甲基化、转录因子结合、非编码RNA调控一起出现。耐药细胞之所以“更难杀”,往往不是单点变化,而是整套转录程序被重置。
1.2 HDAC异常常与耐药并行
已有研究显示,HDAC1/4可参与抑制miRNA-200b的表达,进而影响下游耐药相关通路。这类现象提示,组蛋白乙酰化水平下降,可能让抑癌网络整体失活。 在肺腺癌耐药模型中,HDAC1/4介导的低乙酰化状态,与miRNA-200b低表达、E2F3和SUZ12上调密切相关。
从研究设计角度看,这类数据的价值在于,它不只解释“一个分子变了”,而是解释“为什么一整条耐药轴会被激活”。这也是表观遗传机制比单基因机制更适合解释复杂耐药表型的原因。
1.3 乙酰化改变还能影响EMT和凋亡
组蛋白乙酰化不仅影响增殖,还会影响EMT和细胞死亡。在乳腺癌研究中,上调miRNA-200b和miRNA-200c可抑制ZEB1、ZEB2,并提高E-cadherin启动子区域H3乙酰化水平。 这一变化与EMT抑制、P53相关凋亡通路激活、以及多柔比星敏感性增加相关。
这说明,耐药并不只是“药物外排泵上调”。它还可能来自上皮表型丢失、间质表型增强,以及凋亡阈值升高。组蛋白乙酰化正好位于这些过程的上游。
2. 组蛋白乙酰化如何连接核心耐药通路
2.1 通过miRNA-200家族影响EMT
miRNA-200家族在肿瘤中常被视为EMT抑制轴的重要成员。其中miRNA-200b、200c和429具有相同种子序列AAUACUG,这提示其靶基因调控存在重叠性。 在多种肿瘤中,miRNA-200b表达失衡与侵袭、转移和耐药相关。
机制上,miRNA-200b可负向调控ZEB1和ZEB2,抑制EMT。反过来,ZEB1、ZEB2又能结合miRNA-200b启动子区域的E-box结构,抑制其转录,形成反馈环。这种环路一旦被低乙酰化状态强化,耐药表型就更容易稳定维持。
2.2 通过肿瘤干细胞维持复发能力
肿瘤干细胞是复发和难治的重要根源。研究显示,在乳腺癌肿瘤干细胞形成过程中,miRNA-200b缺失可增加SUZ12表达,增强PRC复合物活性,促进干性维持。而SUZ12上调本身又与耐药密切相关。
这类结果说明,组蛋白乙酰化的变化不只是短期转录波动,而可能推动长期稳定的细胞状态改变。对临床而言,这意味着即使影像学缓解,残存的干性细胞群仍可能在后续推动复发。
2.3 通过血管生成和凋亡阈值改变肿瘤反应
肿瘤血管新生和凋亡抵抗同样受表观遗传机制影响。VEGF及其受体VEGFR1、VEGFR2的3’UTR中存在miRNA-200b结合位点。miRNA-200b过表达可抑制VEGF诱导的ERK1/2磷酸化,并抑制内皮细胞成管能力。另一方面,BCL-2也是miRNA-200b的直接靶点之一。
当BCL-2被持续维持高表达时,细胞色素c释放受阻,Caspase级联难以启动,药物诱导凋亡自然下降。 这为“耐药细胞更抗死”的现象提供了分子解释,也提示表观遗传干预可能恢复凋亡敏感性。
3. 从实验设计看,如何证明组蛋白乙酰化参与耐药
3.1 先确认耐药模型,再看乙酰化状态
研究组蛋白乙酰化前,必须先建立可信的耐药模型。常用方法包括:
- 药物浓度递增法。
- 大剂量冲击法。
- 体内移植模型。
- 诱导型耐药模型。
只有模型稳定,后续的乙酰化变化才有解释力。 比如肺腺癌SPC-A1/DTX耐药模型中,miRNA-200b低表达、E2F3上调、SUZ12上调的结果,才能支持“表观遗传重编程参与耐药”的判断。
3.2 推荐的验证路径
如果要在课题中证明组蛋白乙酰化的作用,通常需要分层验证:
- 检测总乙酰化水平,如H3K9ac、H3K27ac、H3K27ac等标志。
- 做ChIP-qPCR,看关键启动子区域乙酰化是否变化。
- 联合HDAC抑制剂或HAT调节剂,观察药敏是否恢复。
- 再结合RT-qPCR、Western blot和功能实验,确认下游通路是否被逆转。
最关键的是把“修饰变化”与“功能变化”连起来。 否则只能证明相关,不能证明机制。
3.3 不要忽略miRNA与lncRNA的桥接作用
在耐药研究里,组蛋白乙酰化很少单独起作用。它常与lncRNA、miRNA形成联动网络。以MALAT1为例,研究者通过筛选发现其在耐药肺腺癌细胞中高表达,敲减后可影响miRNA-200b相关轴。虽然MALAT1并非直接等同于组蛋白乙酰化,但它提示我们,表观遗传层面的改变常常需要放在ceRNA和转录后调控背景中理解。
这也是现在高水平课题越来越强调“多层级证据链”的原因。
4. 临床转化价值:从耐药预测到联合治疗
4.1 组蛋白乙酰化有望成为耐药标志物
临床上,耐药预测最需要的是稳定、可重复、可解释的指标。组蛋白乙酰化和相关酶谱,具备一定潜力。原因很直接:
- 它反映的是转录状态,不只是瞬时表达。
- 它和药物敏感性、复发、转移具有生物学连接。
- 它可与分子分型、组织学特征联合分析。
对于科研人员来说,更重要的是,它能把基础研究中的“机制”转化为临床中的“分层工具”。
4.2 联合HDAC抑制剂可能提升药物反应
如果耐药与低乙酰化状态相关,那么恢复乙酰化可能帮助逆转耐药。理论上,HDAC抑制剂可提高染色质开放度,重新激活抑癌基因或凋亡通路。已有研究方向也支持这一思路。比如,当HDAC1/4抑制miRNA-200b表达时,干预该轴可能重新提升药物敏感性。
但需要强调,联合治疗不等于简单叠加。 不同肿瘤类型、不同驱动基因背景、不同治疗阶段,对HDAC抑制的反应并不一致。临床转化必须建立在分层验证之上。
4.3 未来研究重点在于患者分层
真正有价值的研究,不是泛泛讨论“乙酰化重要”,而是回答三个问题:
- 哪类肿瘤最依赖乙酰化异常维持耐药。
- 哪些乙酰化位点最能预测疗效。
- 哪些患者适合联合表观遗传治疗。
只有把分子机制和患者样本、治疗结局对应起来,组蛋白乙酰化研究才会真正走向临床。
总结Conclusion
组蛋白乙酰化是连接染色质状态、耐药通路和临床疗效的重要枢纽。它可通过miRNA-200家族、ZEB1/ZEB2、SUZ12、BCL-2、VEGF等轴,影响EMT、干性、凋亡和血管生成。对肿瘤耐药研究而言,最有价值的不是单看乙酰化变化,而是把它放进完整的调控网络中。
如果你正在做耐药机制、表观遗传修饰或ceRNA相关课题,建议优先从耐药模型、乙酰化标志物、ChIP验证和功能救援四个层面搭建证据链。想进一步提升课题设计、结果解读和标书逻辑,可结合解螺旋品牌的科研写作与选题支持工具,帮助你更快把分子机制转化为可发表、可申请、可落地的研究方案。
- 引言Introduction
- 1. 组蛋白乙酰化为何会影响肿瘤耐药
- 2. 组蛋白乙酰化如何连接核心耐药通路
- 3. 从实验设计看,如何证明组蛋白乙酰化参与耐药
- 4. 临床转化价值:从耐药预测到联合治疗
- 总结Conclusion