82
 分享
引言Introduction
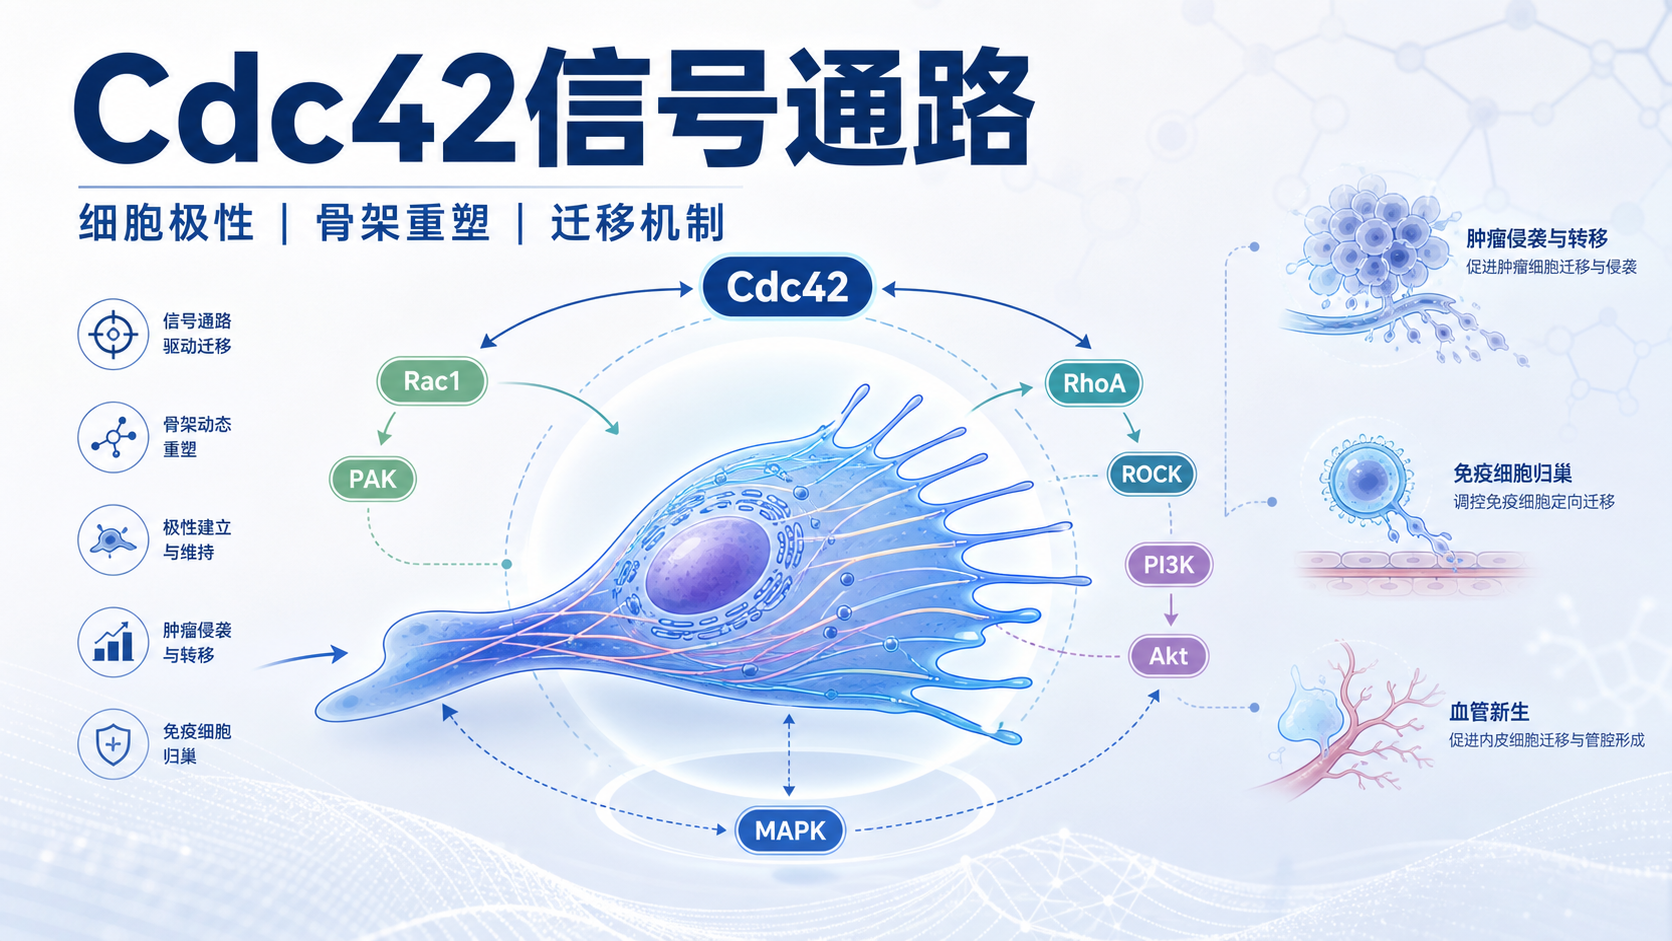
Cdc42信号通路 是细胞迁移研究中的核心主题。对医学生、医生和科研人员来说,真正的难点不在“知道它存在”,而在于理解它如何把外界趋化信号转化为骨架重排、伪足形成和定向移动。
1. Cdc42信号通路的基本框架
1.1 Cdc42是什么,为什么和迁移强相关
Cdc42属于Rho家族小GTP酶。它在两种状态间切换。GTP结合型是活化状态,GDP结合型是失活状态。 这一切换决定了细胞是否能快速建立前后极性。
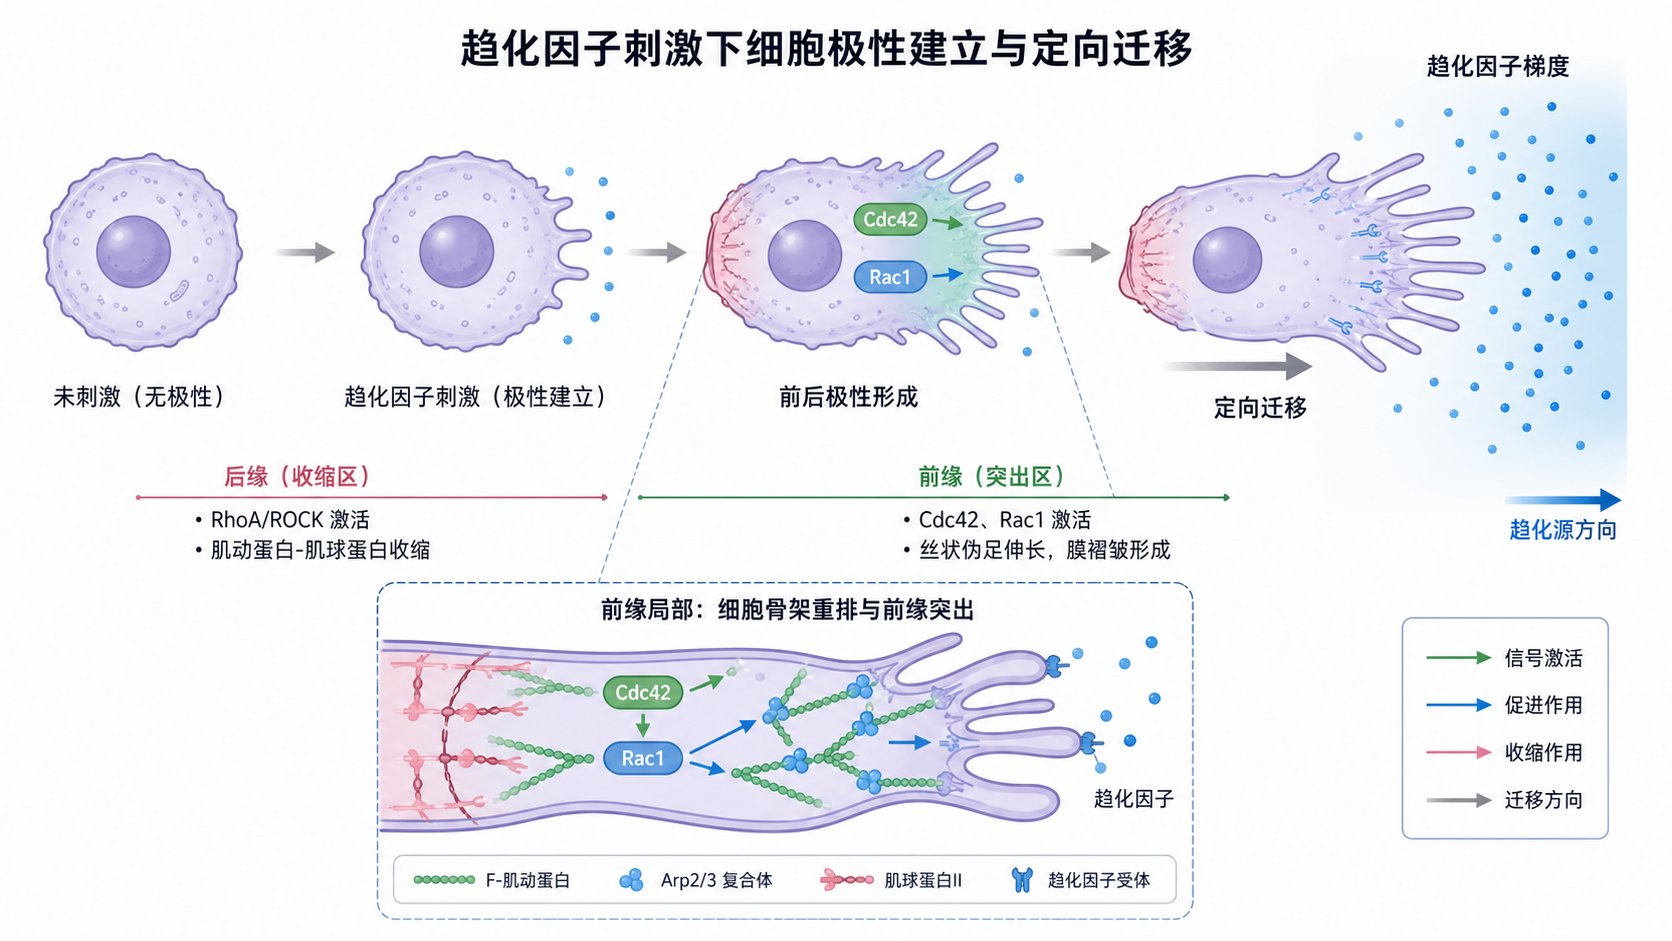
在迁移过程中,Cdc42最关键的作用是建立“方向感”。它常在细胞前缘被激活,帮助细胞决定前进方向,并启动丝状伪足形成。与Rac1偏向板状伪足不同,Cdc42更强调极性建立和前缘探测。
1.2 上游如何激活Cdc42
在已知通路中,趋化因子受体、整合素、受体酪氨酸激酶等都可通过上游调控蛋白影响Cdc42活性。CXCR4/CXCL12就是常见例子。配体结合后可激活异源三聚体G蛋白,并进一步影响PI3K、PLCβ、Rho GTP酶网络。
上游信号并不是单一路径。它们通常通过GEF和GAP调节Cdc42。GEF促进GDP换成GTP,从而激活Cdc42。GAP则加速GTP水解,关闭信号。 这种“开关式”调控是细胞迁移高时空精度的基础。
2. Cdc42如何驱动细胞极性建立
2.1 前后极性的形成
细胞迁移不是整体平移,而是先极化再移动。Cdc42在前缘富集后,可组织细胞内部结构重排,让前端更适合感知外界梯度,后端则收缩并跟进。
这一过程与微管、Golgi体和中心体重定位有关。极性建立后,细胞才具备持续、定向迁移能力。 如果极性失败,细胞即使能短暂移动,也容易出现方向混乱和迁移效率下降。
2.2 Cdc42与极性复合体
Cdc42常与Par3、Par6、aPKC等极性复合体协同。该复合体可帮助确定前缘区域,并将膜运输、骨架变化和局部信号放大连接起来。
从机制上看,这意味着Cdc42不只是“动骨架”,更是在组织整套迁移程序。它是迁移启动器,也是方向控制器。
3. Cdc42信号通路如何重塑细胞骨架
3.1 丝状伪足的形成
Cdc42最经典的下游表型就是丝状伪足形成。丝状伪足依赖F-actin线性聚合,细胞借此向外探测基质环境和趋化信号。
在迁移前缘,Cdc42可促进N-WASP、Arp2/3等分子参与肌动蛋白成核与分支调控,推动局部膜突起形成。
这一步非常关键。没有伪足,细胞就难以“探路”。 没有探路,定向迁移就会失去依据。对于肿瘤细胞、免疫细胞和内皮细胞,这一机制都很重要。
3.2 与Rac1、RhoA的协同和分工
细胞迁移通常不是单分子独立完成。Cdc42、Rac1、RhoA三者共同构成迁移骨架调控网络。
一般而言,Cdc42负责极性建立,Rac1偏向前缘扩展和板状伪足,RhoA更偏向应力纤维和后端收缩。
这种分工非常重要。迁移需要“前端推进”和“后端收缩”同时发生。 如果只有推进,没有收缩,细胞难以完成整体位移;如果只有收缩,没有前缘探测,细胞又难以定向。
4. Cdc42信号通路与经典下游效应分子
4.1 PAK、MAPK和细胞迁移
Cdc42可通过激活PAK等效应分子,进一步影响MAPK相关网络。MAPK信号并不只是促进增殖,也参与迁移相关基因表达和骨架调节。
在某些细胞类型中,ERK、JNK、p38等分支会参与迁移适应过程。
需要注意的是,迁移和增殖是不同生物学过程,但在肿瘤和血管新生中常常同时出现。 因此,研究Cdc42时要区分表型来源,避免把增殖增强误判为迁移增强。
4.2 PI3K/Akt与迁移信号放大
Cdc42相关网络常与PI3K/Akt通路交叉。PI3K产生的膜脂信号可在前缘形成局部富集,进一步促进极性维持和迁移持续性。
在CXCR4/CXCL12等趋化体系中,这种信号放大尤其明显。
局部信号梯度越清晰,迁移方向越稳定。 这也是为什么趋化实验中,细胞常表现出明显的单侧前缘结构和定向运动。
5. Cdc42信号通路在迁移相关疾病中的意义
5.1 肿瘤侵袭和转移
在肿瘤微环境中,Cdc42相关迁移机制常被激活。它可帮助肿瘤细胞形成侵袭前缘,增强穿越基底膜和间质迁移的能力。
当CXCR4/CXCL12、EGFR、TGF-β等上游信号增强时,Cdc42网络往往被进一步放大,从而促进侵袭和远处转移。
这也是Cdc42备受关注的原因。它不仅参与“移动”,还参与“转移能力”的建立。 对转移机制研究来说,它具有明确的生物学价值。
5.2 免疫细胞归巢与炎症迁移
Cdc42同样参与免疫细胞迁移。白细胞需要沿趋化梯度快速定向移动,Cdc42就是这一过程中的关键极性调节因子。
在炎症、感染和组织修复中,免疫细胞是否能准确到达靶组织,和Cdc42介导的极性建立密切相关。
5.3 血管新生中的内皮迁移
血管新生依赖内皮细胞增殖和迁移。已有研究总结显示,Rho家族成员中的Cdc42和Rac1可调控丝状伪足形成,促进内皮细胞迁移。 这意味着Cdc42也是血管新生研究中的重要节点。
在HUVEC等模型中,如果Cdc42活性异常,细胞爬行、管网形成和前缘动态都会受到影响。
6. 研究Cdc42信号通路时,常用哪些实验
6.1 迁移实验
研究Cdc42最直接的表型是迁移能力变化。常用方法包括:
- 划痕愈合实验。
- Transwell迁移实验。
- 结合趋化因子的定向迁移模型。
这些方法可以从不同角度反映迁移能力。划痕实验更适合观察群体移动,Transwell更适合定量比较迁移穿膜能力。
6.2 形态学和骨架观察
如果要回答“Cdc42是否真的改变了迁移机制”,仅看细胞数不够。还应结合:
- F-actin染色。
- 丝状伪足观察。
- 极性标志物定位。
- GTP-Cdc42活化检测。
这样才能把“表型改变”与“分子机制”对应起来。对于科研论文,这一点尤其重要。
结语Conclusion
Cdc42信号通路调控细胞迁移的核心逻辑,是上游趋化信号先激活Cdc42,再由Cdc42协调极性建立、丝状伪足形成和骨架重排,最终实现定向迁移。 它与Rac1、RhoA、PI3K/Akt、MAPK等网络交叉,构成细胞迁移的关键调控轴。
如果你正在整理课题思路、绘制机制图,或需要把复杂通路写成适合论文和课件的高质量内容,可以借助解螺旋品牌的专业科研写作与知识整理支持。用更清晰的逻辑呈现Cdc42信号通路,能让机制更好理解,也更利于后续实验设计与成果转化。
- 引言Introduction
- 1. Cdc42信号通路的基本框架
- 2. Cdc42如何驱动细胞极性建立
- 3. Cdc42信号通路如何重塑细胞骨架
- 4. Cdc42信号通路与经典下游效应分子
- 5. Cdc42信号通路在迁移相关疾病中的意义
- 6. 研究Cdc42信号通路时,常用哪些实验
- 结语Conclusion