

 12
 分享
引言Introduction
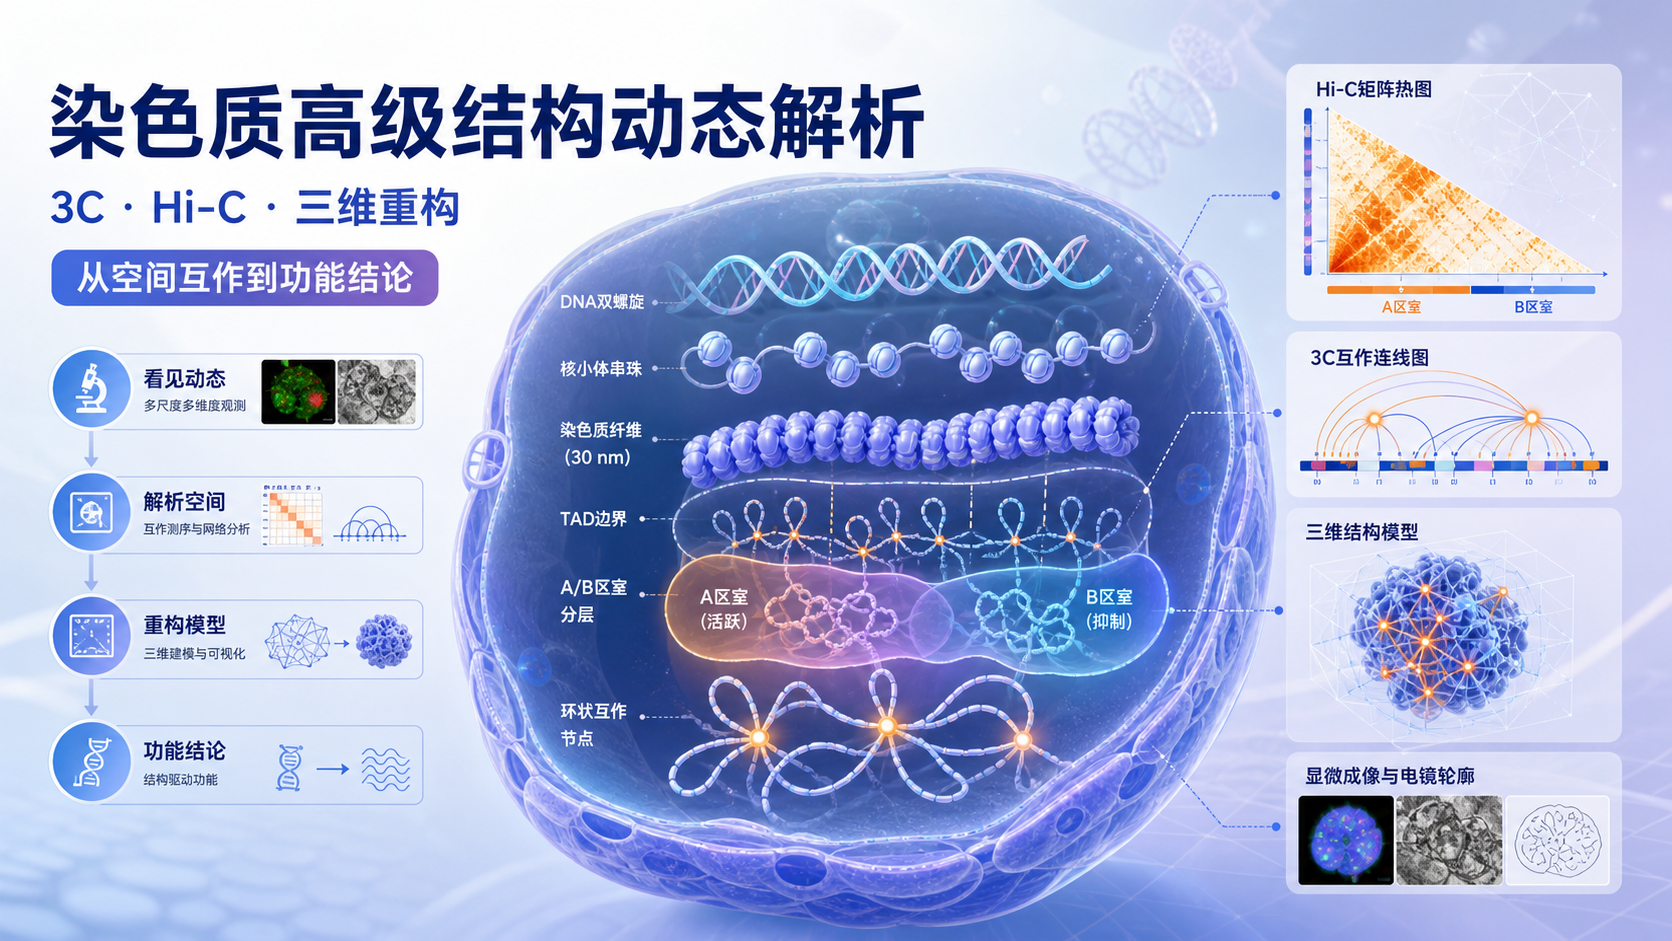
染色质不是静态线团,而是不断重塑的三维网络。一旦高级结构发生变化,基因调控、细胞命运和疾病表型都可能随之改变。 对医学生、医生和科研人员来说,难点不在于“知道它重要”,而在于“如何精准看见它、量化它、解释它”。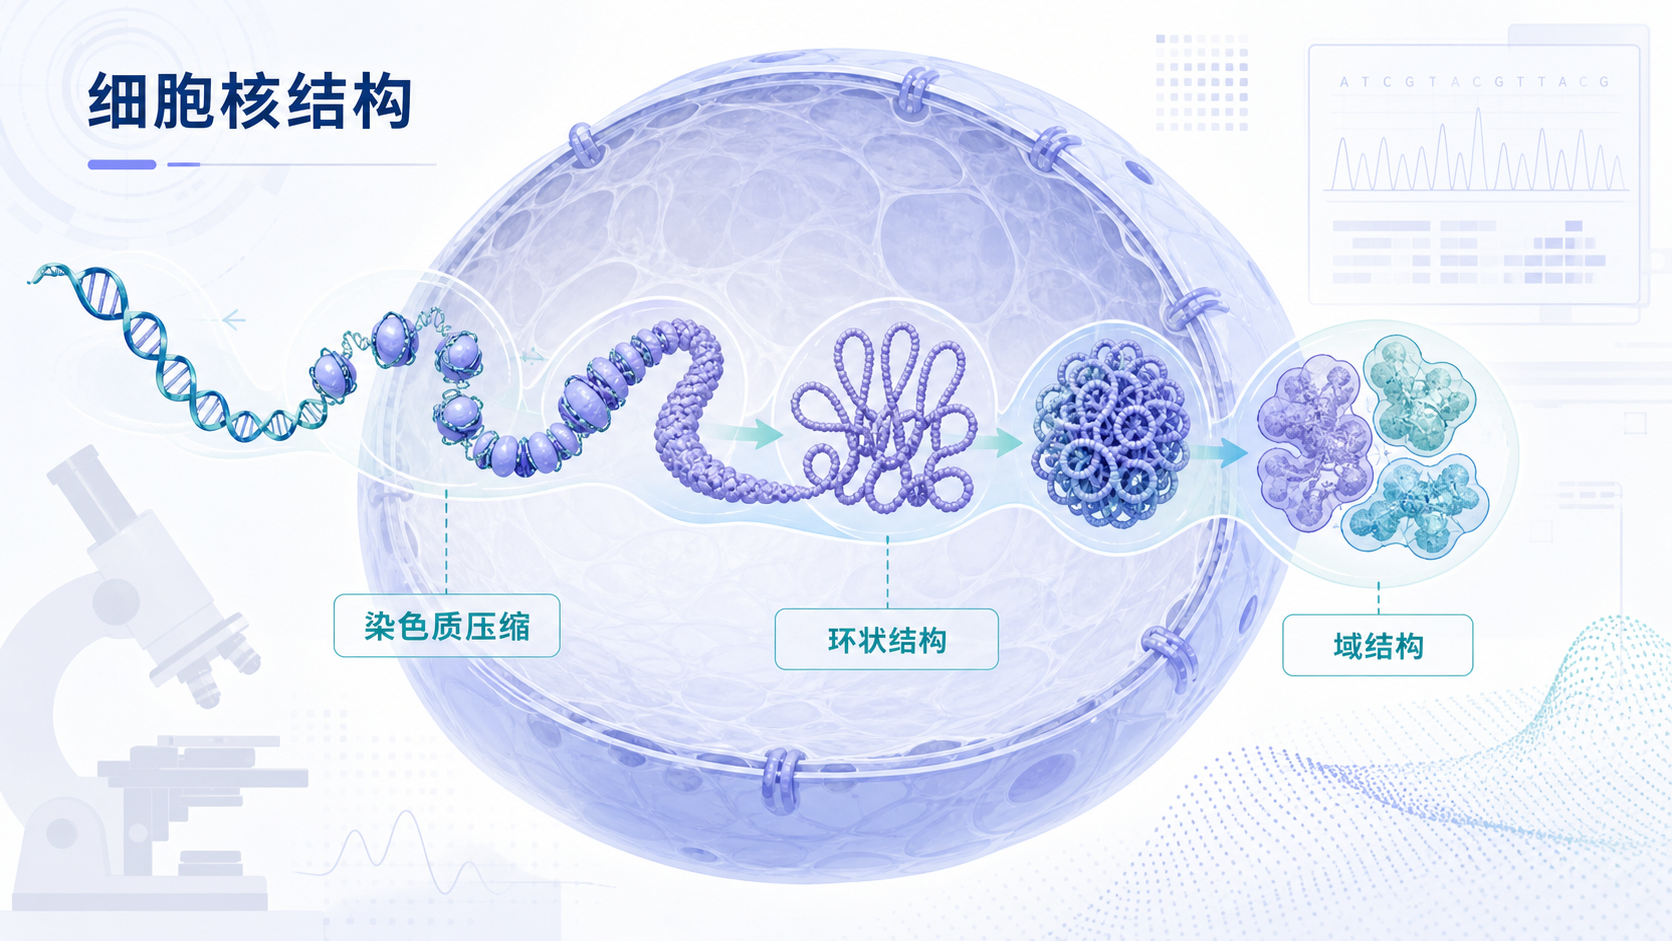
1. 染色质高级结构为什么值得关注
1.1 从核小体到三维折叠,决定了基因是否容易被读取
染色质的基础单位是核小体。DNA缠绕在组蛋白八聚体上,形成“珠串样”结构。进一步压缩后,它不再只是线性排列,而会形成更复杂的三维折叠。
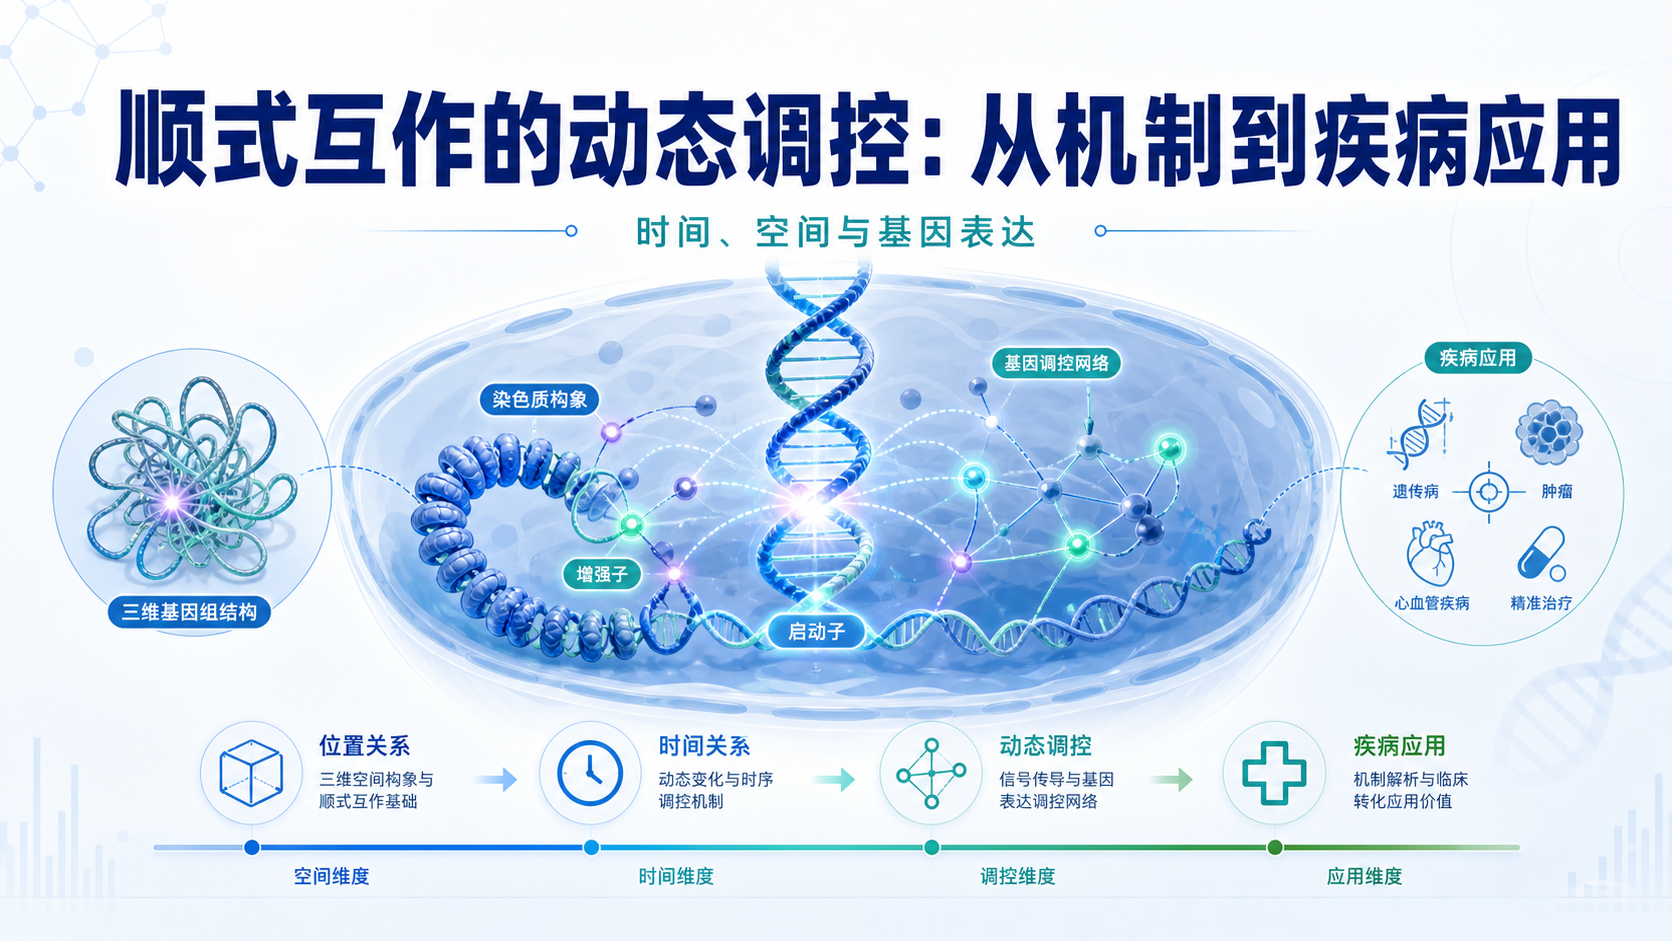
这种高级结构不是装饰,而是调控层。 相距很远的启动子和增强子,可能因为空间折叠而靠近。原本难以接触的调控元件,突然变成邻居,转录活性就可能被重新定义。
从功能上看,染色质高级结构影响至少三件事。
- 调控元件是否能接触靶基因。
- 转录因子和辅因子是否容易富集。
- 染色质是否处于开放或压缩状态。
1.2 结构变化不是“有或无”,而是连续动态过程
很多初学者容易把染色质理解成“开”或“关”。实际上,染色质高级结构动态是连续变化的。 它会在不同细胞周期、不同分化阶段、不同刺激条件下重排。
例如,间期染色质通常更利于转录调控,而分裂期染色质则高度凝缩。两者之间不是简单切换,而是经历逐步压缩、解压、局部重塑和域间重连。
这也是为什么研究者越来越关注动态,而不只看某一个时间点。
1.3 结构异质性本身就是生物学信息
同一批细胞里,不同细胞的染色质构象并不完全一致。即便是同一细胞,在不同染色体区域、不同微环境下,也会呈现结构差异。
真正有价值的不是“平均结构”,而是结构异质性背后的调控逻辑。
在肿瘤、发育异常和炎症状态中,这种异质性往往更明显,也更接近临床问题。
2. 染色质高级结构动态如何被“看见”
2.1 3C及其衍生技术,回答“谁和谁靠近”
3C技术的核心思路很清晰。先用甲醛交联蛋白和DNA,再用限制性内切酶切割,最后通过连接和检测,判断两个位点是否在三维空间中接近。
3C适合验证已知假设。
如果你已经怀疑某个启动子与增强子存在相互作用,就可以用3C配合qPCR检测。连接片段越多,说明两位点在空间上越可能接近。
在此基础上,还发展出多种衍生方法。
- 4C,适合看单个位点与全基因组的互作。
- 5C,适合更大范围的互作分析。
- Hi-C,适合全基因组范围扫描。
- Capture-C,适合靶向富集特定区域。
其中,Hi-C是解析染色质高级结构动态最常被讨论的全基因组方法之一。
2.2 Hi-C能够揭示TAD、A/B区室和环结构
Hi-C的数据通常可以用于识别三个层次的结构信息。
-
A/B区室。
A区室通常与开放、转录活跃相关,B区室则更偏压缩和抑制。 -
TAD,拓扑相关结构域。
它像一个相对封闭的调控单元,内部互作更强。 -
染色质环。
如启动子-增强子环、绝缘子相关环等。
这些结构不是孤立存在的,它们会随发育、刺激和疾病状态发生重排。
如果研究对象是肿瘤、干细胞分化或免疫激活,Hi-C尤其有价值。
2.3 电镜、超分辨成像与染色质铺展,补足“看得见”的证据
分子互作数据很强,但它本质上还是间接证据。要更直观地观察染色质状态,显微成像很重要。
- 电镜适合观察高密度染色质的超微结构。
- 超分辨显微镜可提高空间分辨率,适合观察更细微的核内分布。
- 染色质铺展实验可观察染色质纤维的延展和相互关系。
成像方法的优势在于直观,但需要和分子数据联合解释。
单独看图像,通常不足以证明具体互作。联合3C或Hi-C,结论会更稳。
3. 三维重构技术如何提升解析精度
3.1 三维重构的目标不是“画好看”,而是恢复空间关系
三维重构技术的核心,不是把图像做得更立体,而是把二维信号还原为可分析的空间结构。
它通常依赖以下数据来源。
- 显微图像序列。
- 互作频率矩阵。
- 多角度成像结果。
- 局部标记信号。
重构的重点是把“空间邻近”转化成“可量化模型”。
只有进入模型层面,才能计算距离、角度、接触概率和结构域边界。
3.2 数据质量决定重构上限
三维重构不是后期软件一键完成。前端数据质量直接决定结果可信度。
关键环节包括:
- 交联是否充分但不过度。
- 酶切是否均一。
- 连接是否偏向某些片段。
- 文库复杂度是否足够。
- 测序深度是否满足分析目标。
如果前处理有偏差,后续重构会把误差放大。
例如,酶切不均一会导致某些区域信号偏低,容易误判为空间分离。
3.3 从矩阵到模型,常见分析思路有三步
对于Hi-C或类似数据,常见解析流程可概括为三步。
-
构建接触矩阵。
统计不同基因组区段的互作频率。 -
识别结构单元。
判断A/B区室、TAD和loop。 -
建立三维模型。
将接触频率转化为空间约束,重建更接近真实的核内布局。
模型并不等于真相,但它能把复杂互作变成可比较的空间框架。
这对比较不同处理组、不同病理状态尤其重要。
4. 精准解析染色质高级结构动态,需要哪些关键判断
4.1 先明确问题,再选技术
不同问题,对应不同技术。不能用一把尺子量所有结构。
如果你的问题是“某两个位点是否互作”,优先考虑3C。
如果你想知道“全基因组结构怎么变”,Hi-C更合适。
如果你需要“局部高分辨率观察”,成像技术更直接。
先定义生物学问题,再选检测平台,这是最重要的原则。
4.2 动态研究必须看时间维度
只看一个时间点,往往只能得到静态图景。染色质高级结构动态真正有价值的地方,在于时间变化。
常见设计包括:
- 刺激前后比较。
- 分化不同时间点采样。
- 药物处理梯度分析。
- 疾病进展分阶段观察。
这样才能判断结构变化是短暂反应,还是稳定重编程。
4.3 结果解释要回到功能层面
结构变化本身不是终点。最终还是要回答,它是否影响了转录、复制、修复或细胞命运。
可联合检测的指标包括:
- RNA表达水平。
- 组蛋白修饰状态。
- DNA甲基化变化。
- 蛋白表达和定位变化。
只有把结构、转录和表型连起来,三维重构才真正有意义。
5. 在科研与转化中,如何把结构动态变成可用结论
5.1 典型应用场景
染色质高级结构动态的研究,已经进入多个方向。
- 发育生物学。看分化过程中结构如何重编程。
- 肿瘤研究。看致癌调控网络如何重排。
- 免疫研究。看刺激后增强子和启动子如何重新配对。
- 药物研究。看表观调控药物是否改变三维结构。
这些场景的共同点是,结构变化往往比表达变化更早出现。
因此,三维信息具有前瞻性。
5.2 常见误区需要避免
科研中有几个常见误区。
- 把接触频率直接等同于物理距离。
- 把平均信号误认为单细胞真实状态。
- 只看结构,不看功能验证。
- 忽略样本异质性和技术偏差。
染色质高级结构动态的解析,最怕“过度解读单一信号”。
稳妥的做法是,多方法交叉验证。
5.3 让复杂数据更好落地
如果你希望把三维重构、互作分析和机制研究真正串起来,数据整理和流程设计非常关键。建议在项目早期就规划好样本分组、检测平台、验证实验和统计策略。
对于需要更高效整合文献、方法和实验设计的研究者,解螺旋 可以帮助你更快梳理研究思路,减少重复试错,把染色质高级结构动态的解析做得更清晰、更可发表。
总结Conclusion
染色质高级结构动态不是抽象概念,而是基因调控的空间基础。要精准解析它,不能只依赖单一方法,而要结合3C、Hi-C、显微成像和三维重构,从互作、结构到功能逐层验证。真正高质量的研究,关键在于把“看见结构”升级为“解释机制”。 如果你正在推进相关课题,欢迎借助** 解螺旋**,让复杂的染色质三维问题更快落到可验证、可发表的研究路径上。
- 引言Introduction
- 1. 染色质高级结构为什么值得关注
- 2. 染色质高级结构动态如何被“看见”
- 3. 三维重构技术如何提升解析精度
- 4. 精准解析染色质高级结构动态,需要哪些关键判断
- 5. 在科研与转化中,如何把结构动态变成可用结论
- 总结Conclusion