

 13
 分享
引言Introduction
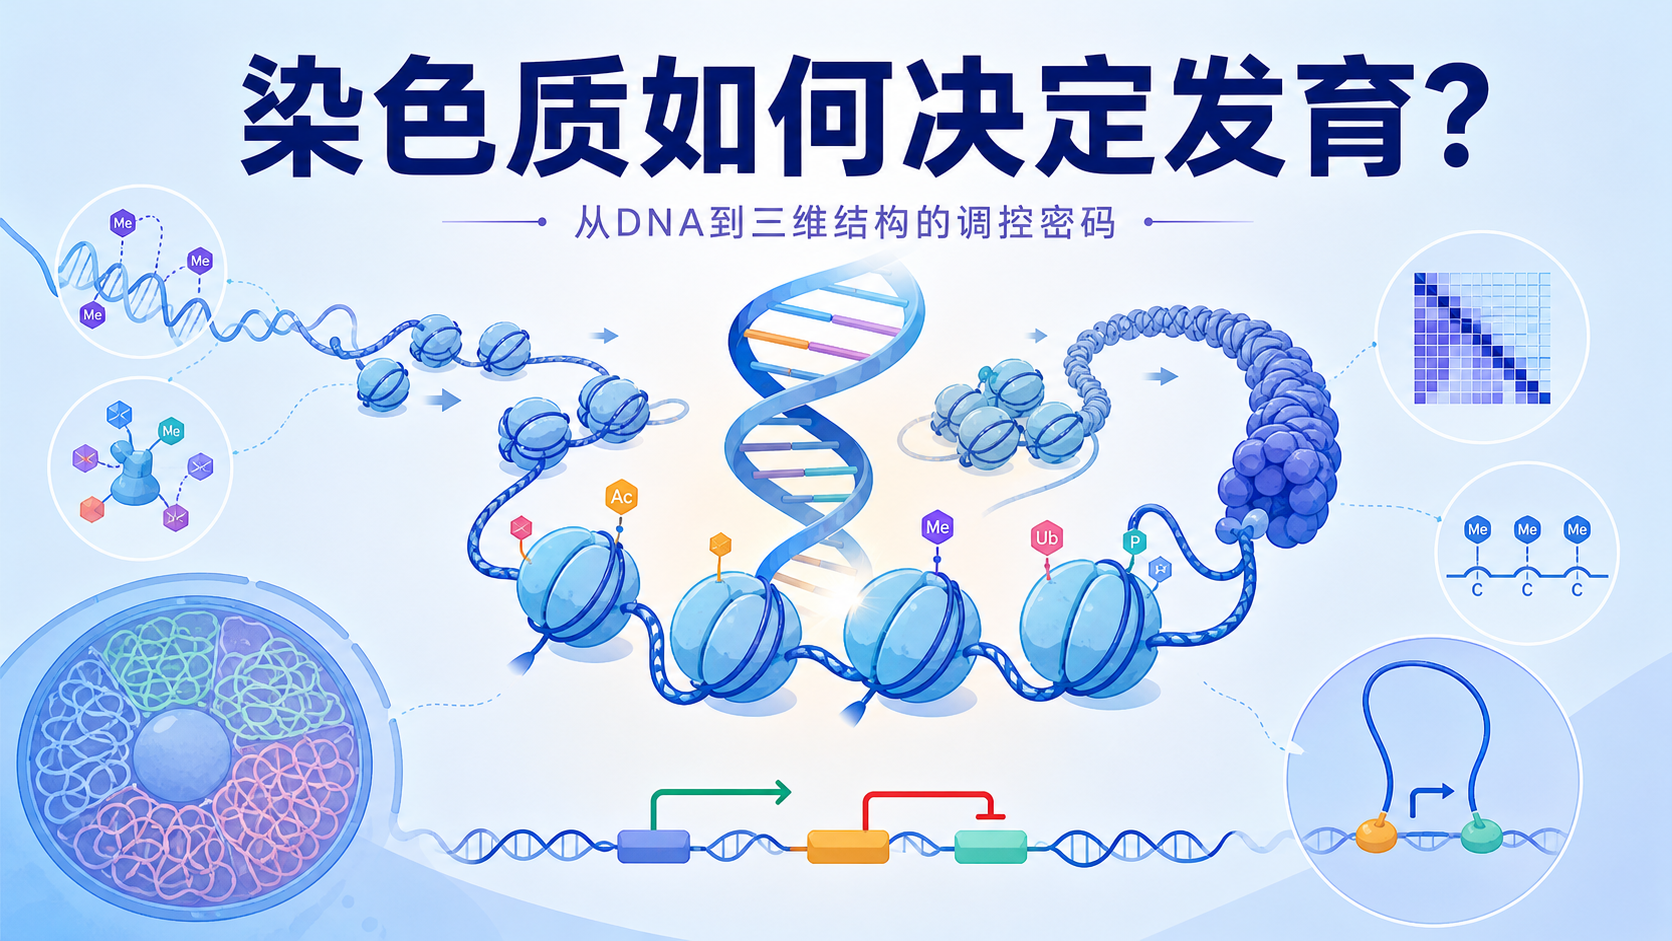
发育不是只看基因“写了什么”,更关键的是“什么时候、在哪里被打开”。染色质结构变化决定了基因能否被转录,也决定了细胞命运如何分化。 对医学生、医生和科研人员来说,理解这一过程,是读懂发育异常、肿瘤异质性和表观遗传调控的基础。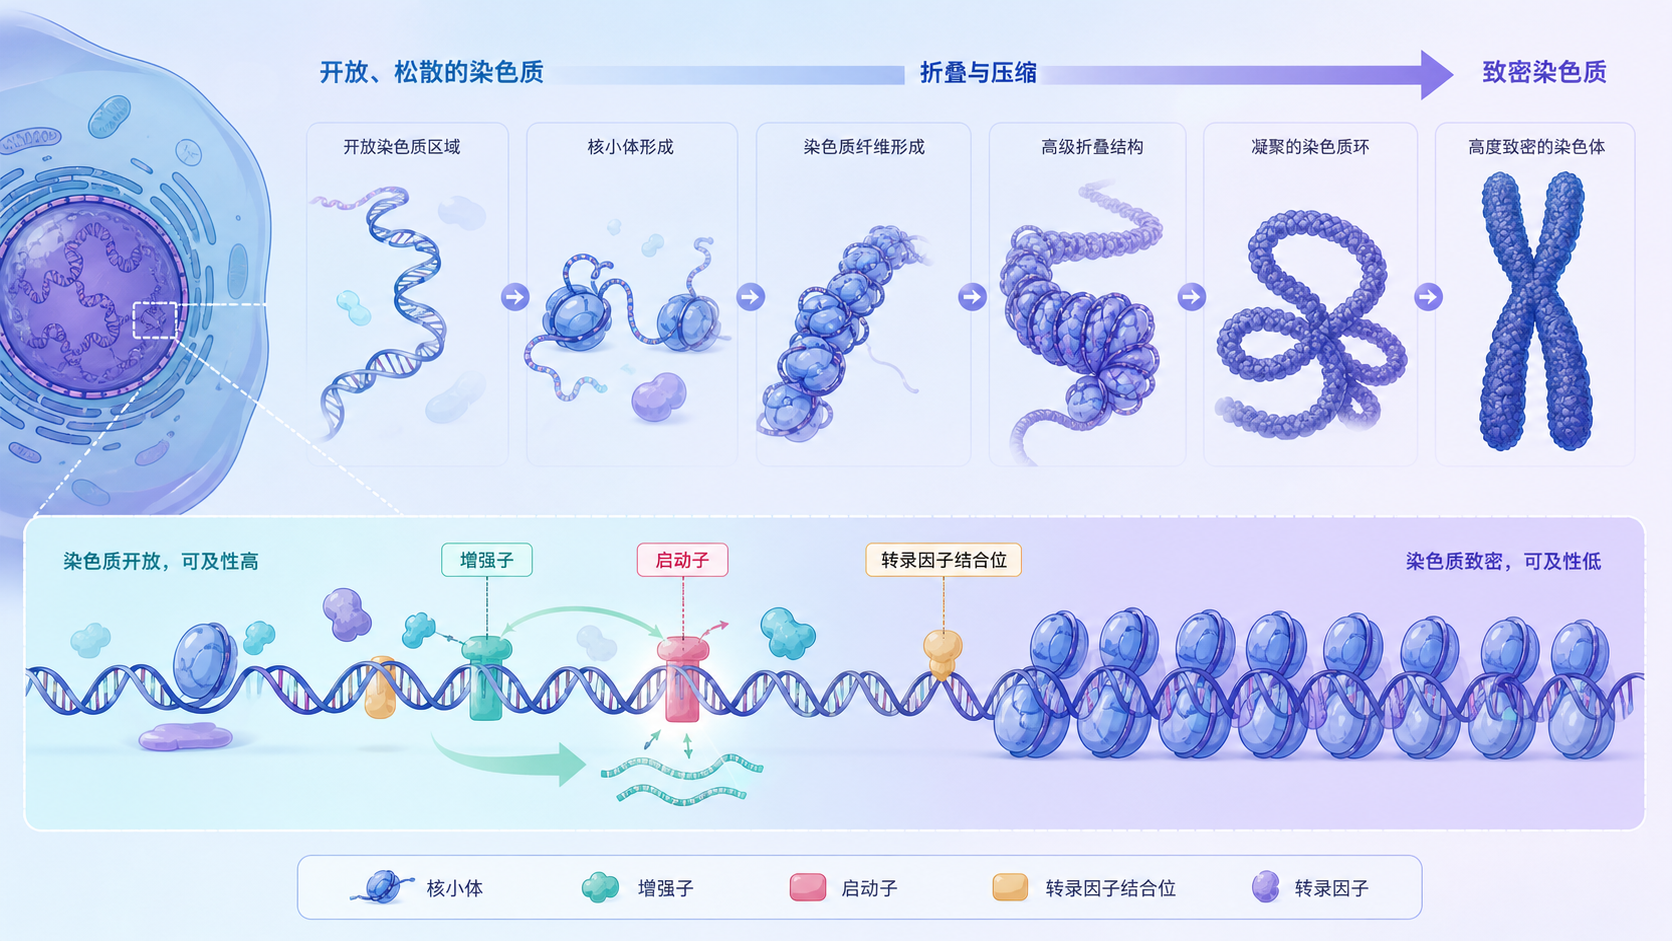
1. 染色质为什么是发育调控的“开关”
1.1 从DNA序列到三维结构,决定的是表达可达性
真核细胞中,DNA并不是裸露存在,而是与组蛋白和非组蛋白结合,形成核小体,再进一步盘绕成染色质。染色质不是静态包装,而是动态调控平台。 当结构松散时,转录因子更容易接触启动子和增强子,基因更容易被激活。结构致密时,相关位点更难被读取,转录通常被抑制。
发育过程中,这种“可达性”尤其重要。胚胎早期细胞具有较高可塑性,许多发育相关基因处于相对开放状态。随后随着谱系分化,部分位点逐渐关闭,另一些位点被稳定打开。这个过程本质上就是发育染色质结构变化驱动的基因表达重编程。
1.2 常染色质与异染色质,反映的是功能状态
电镜下,常染色质通常染色较浅,结构相对疏松,常与活跃转录相关。异染色质染色较深,结构更致密,多与转录沉默有关。需要强调的是,常染色质并不等于“所有基因都在表达”,异染色质也不等于“完全无功能”。 它们更准确地反映的是染色质开放程度和调控潜能。
从功能上看,结构异染色质常富集于着丝粒、端粒及重复序列区域,具有稳定基因组结构的作用。间性异染色质则可由常染色质转换而来,常参与发育阶段性的基因沉默。对发育研究而言,这种可逆与不可逆之间的边界,是理解细胞命运锁定的重要切入点。
2. 发育过程中,染色质结构如何被重塑
2.1 核小体排列改变,是最基础的层级
染色质结构变化最直接的形式,是核小体间距和排列方式的改变。核小体越紧密,DNA越不容易暴露,转录抑制越明显。核小体越疏松,调控元件越容易被识别,基因表达越活跃。文献和实验教学中常用micrococcal nuclease相关实验来评估核小体排列状态,因为其对核小体敏感,能反映染色质可及性差异。
在发育调控中,很多关键事件不是“是否有基因”,而是“这个位点是否被打开”。例如干细胞向特定谱系分化时,启动该谱系程序的位点逐渐开放,而不相关谱系基因的位点逐渐关闭。这不是简单的开或关,而是一个分层、渐进、可逆或半可逆的结构重塑过程。
2.2 非组蛋白和ATP依赖性重塑复合物,决定结构可变性
除组蛋白外,非组蛋白也会影响染色质构象。它们可以像“结构支架”一样,改变DNA远端位点之间的空间关系,促进或阻断增强子与启动子的接触。与此同时,真核细胞中还存在ATP依赖性染色质重塑复合物,它们通过消耗能量推动核小体滑动、移位或解聚,从而改变DNA暴露程度。
这类机制在发育中非常关键。细胞命运决定往往依赖少数关键转录因子先进入染色质,再逐步建立新的转录网络。 如果染色质不开放,很多发育主调控因子即便存在,也难以发挥作用。因此,染色质重塑不是结果,而是发育程序启动的前提之一。
3. 三维基因组结构,是发育信息整合的空间基础
3.1 远距离调控不是例外,而是常态
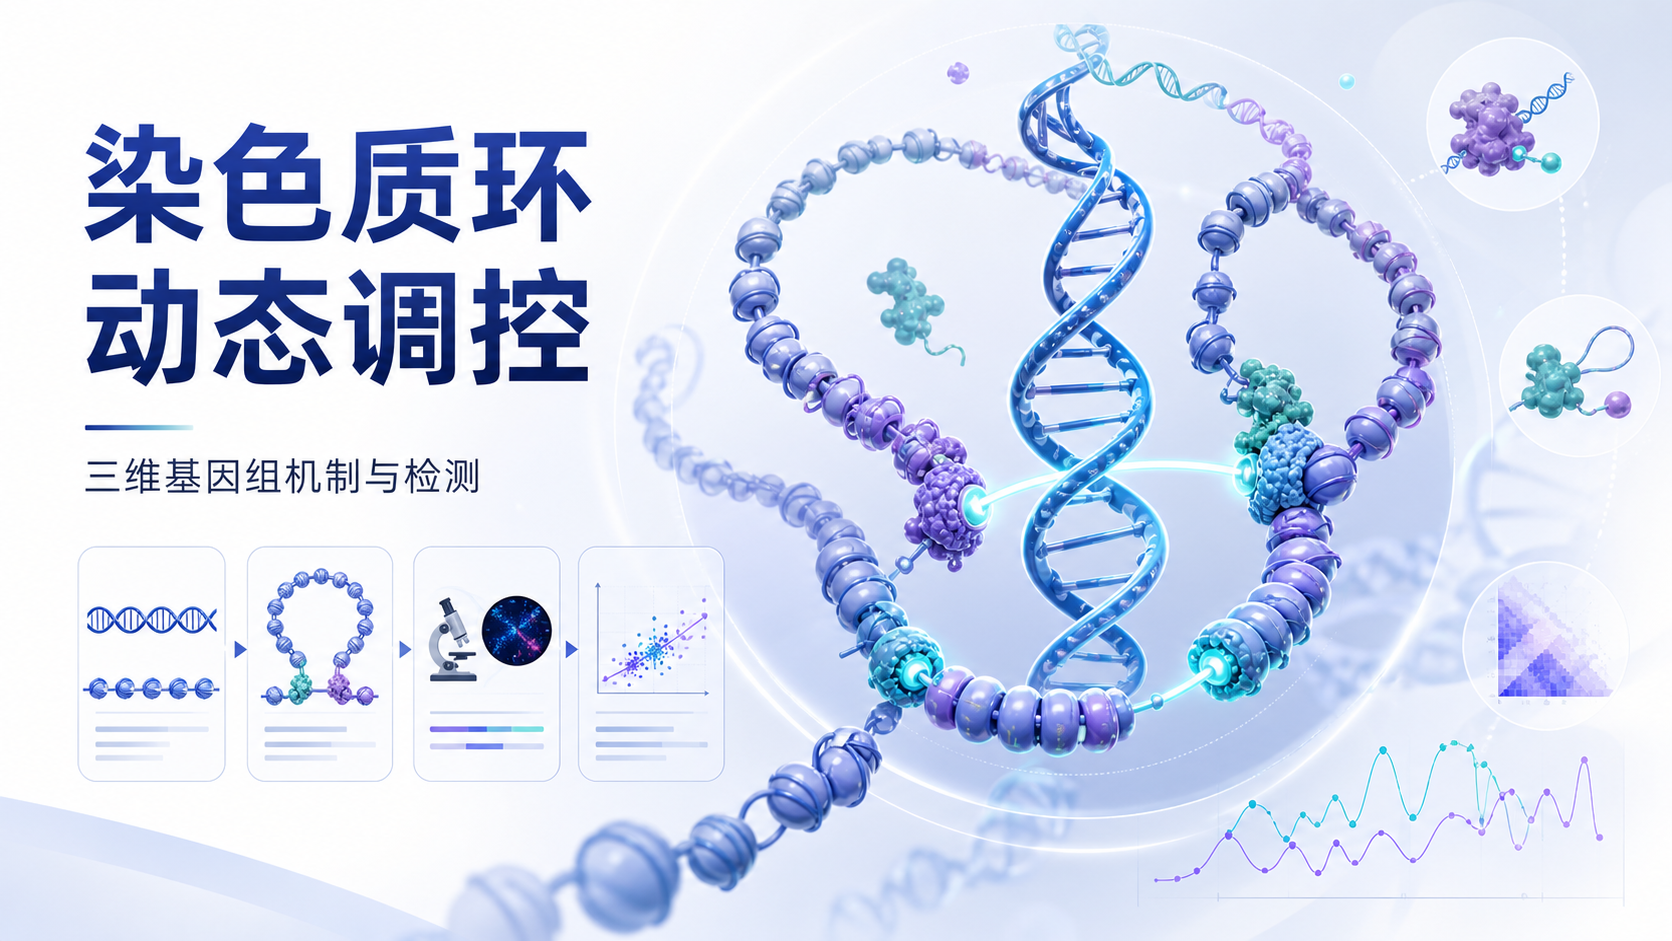
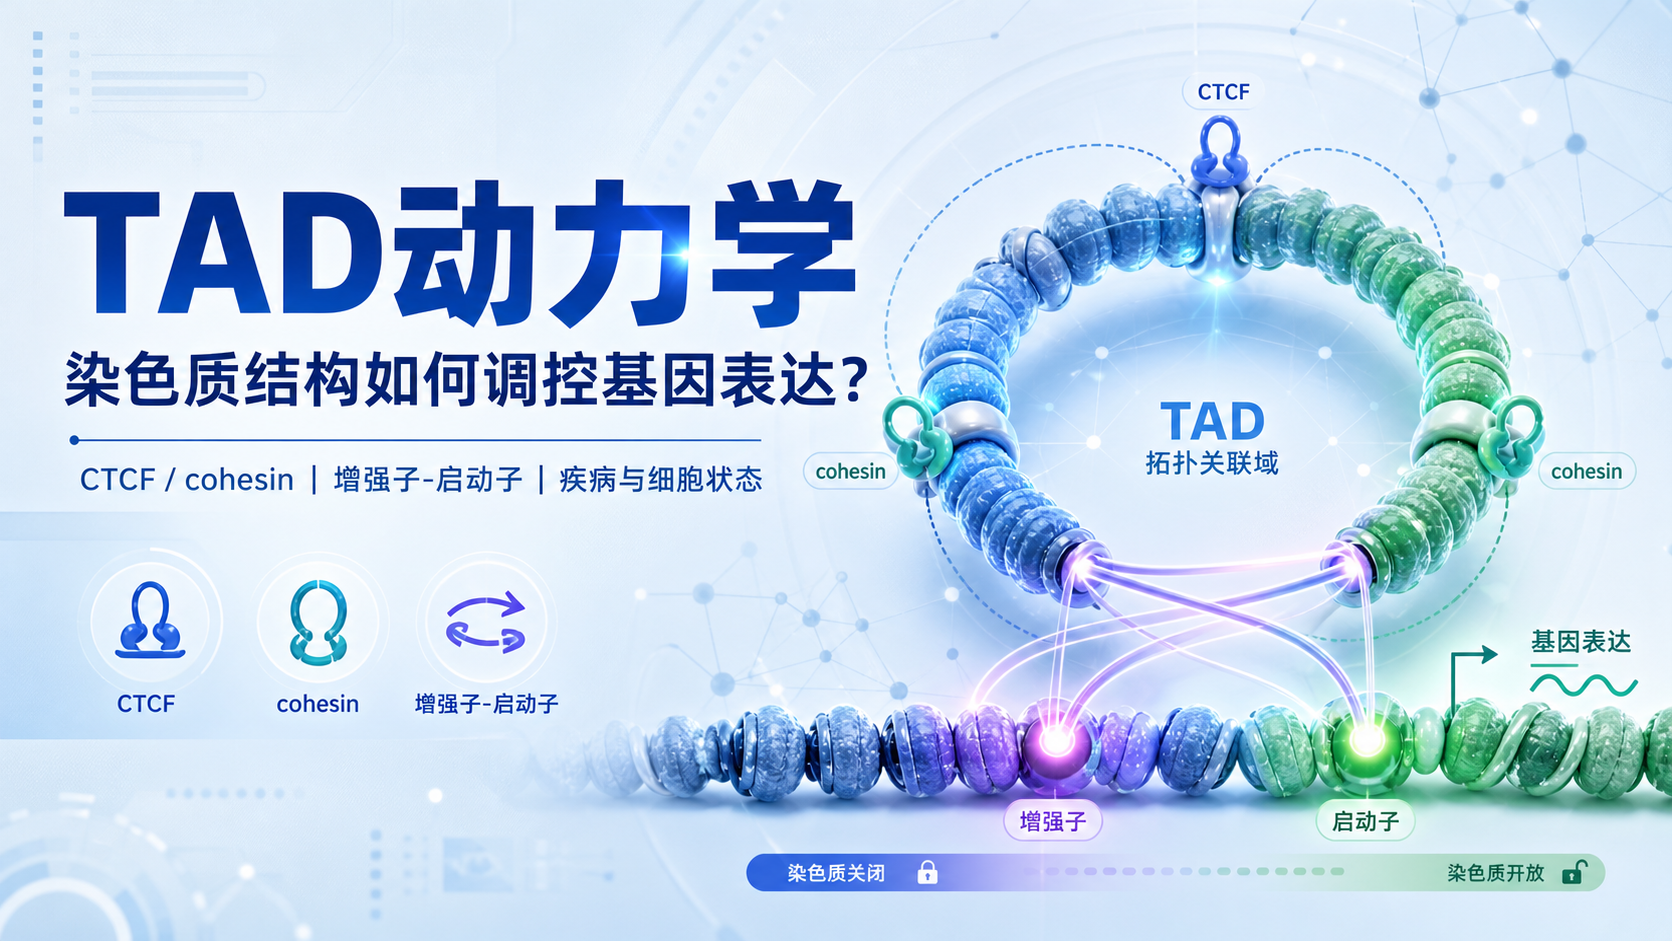
基因组上,增强子可能距离靶基因很远,但在三维空间中,二者可以被拉近并发生功能性接触。这就是染色质拓扑结构对发育调控的核心意义。 原本在一维线性序列中相隔很远的位点,经过折叠后可以成为“邻居”,从而共同决定某个基因是否表达。
这一点对于发育尤为重要,因为许多组织特异性基因并不是靠单一启动子决定,而是靠多个远端元件共同整合输入。发育期一旦三维结构发生偏移,就可能导致增强子误配、启动子失活或异常激活,进而出现发育障碍。
3.2 3C和Hi-C帮助我们看见空间接触
如果研究某两个特定位点之间是否存在相互作用,可用3C实验。如果想做全基因组范围的接触图谱,则可用Hi-C或其衍生技术。这类技术把“染色质结构变化”从形态学观察推进到了可定量、可比较、可整合分析的层面。
对发育生物学而言,Hi-C等方法的价值不只是描述结构,而是帮助识别“结构域边界”“增强子-启动子环化”“发育阶段特异接触”等现象。很多发育异常研究,最终会回到一个问题:某个关键基因不是编码序列坏了,而是它的空间调控架构坏了。
4. 染色质修饰如何参与发育程序
4.1 组蛋白修饰改变开放程度
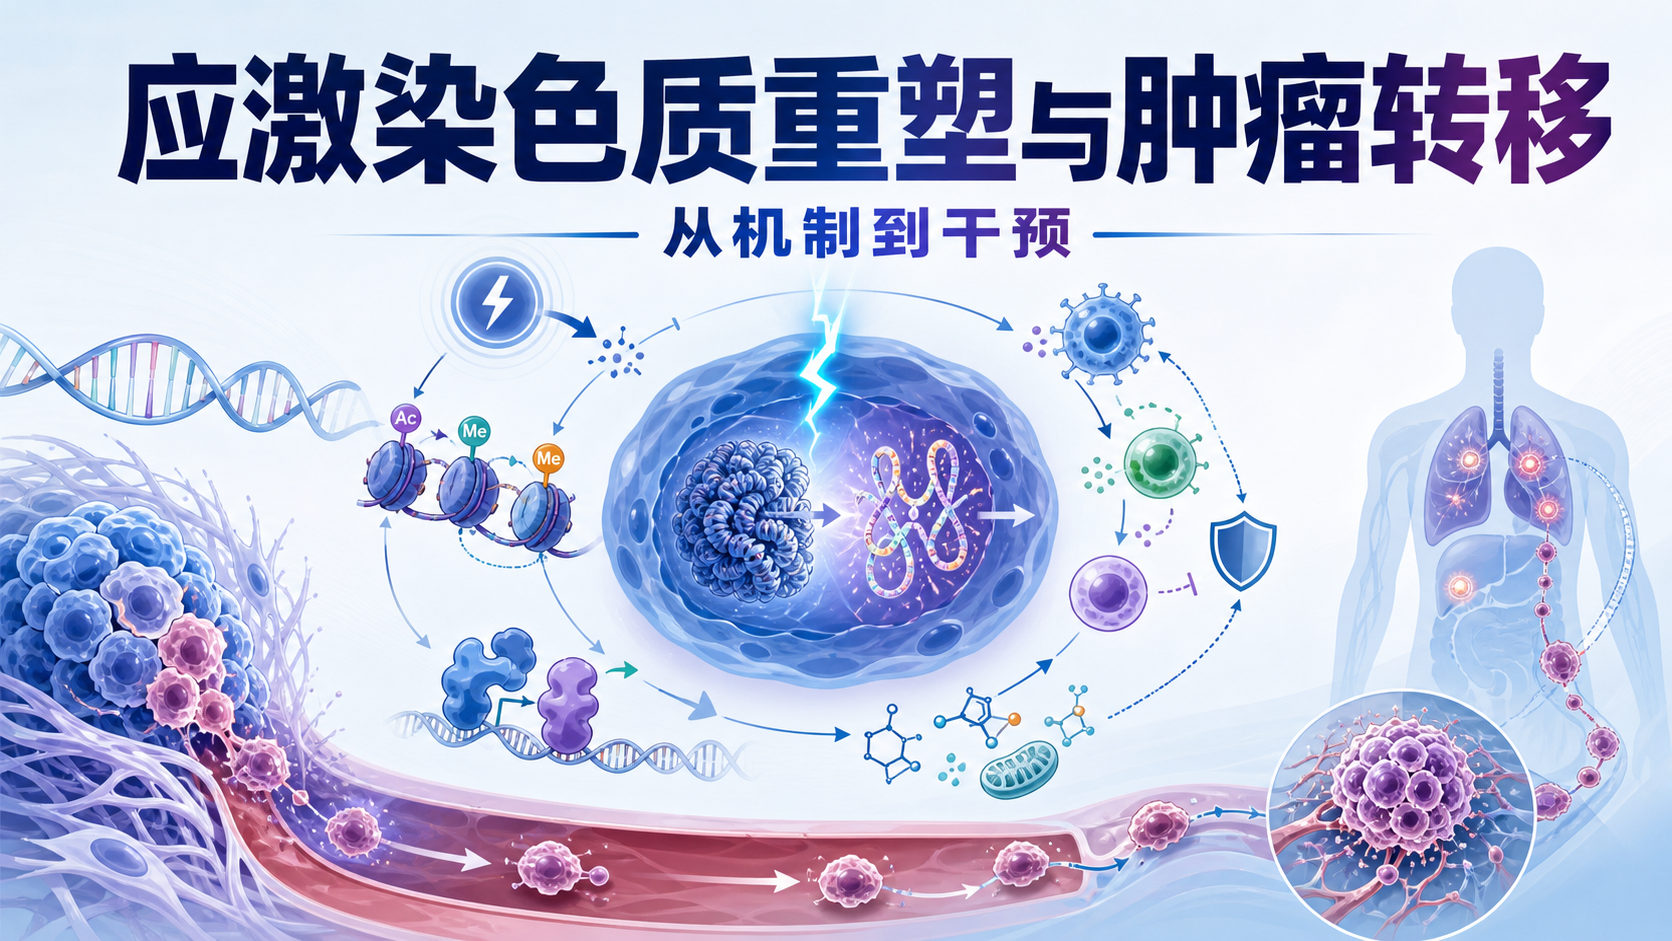
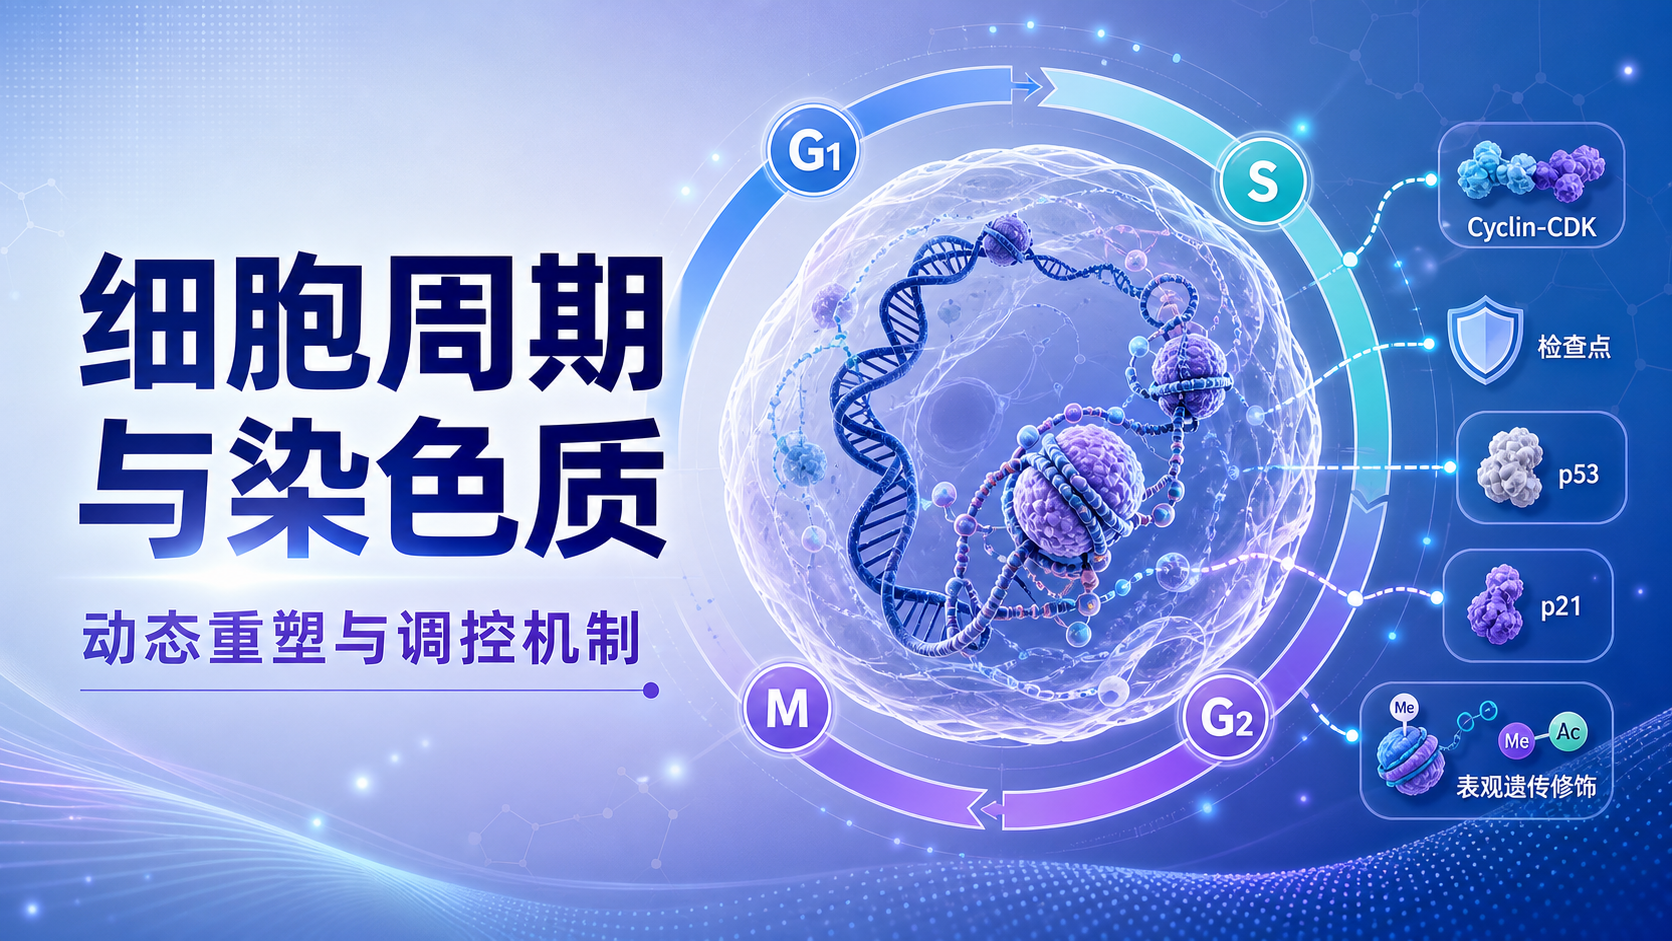
组蛋白乙酰化、甲基化、磷酸化等修饰,会影响DNA与组蛋白的亲和力,也会影响招募哪些转录相关蛋白。一般而言,乙酰化常与染色质开放相关,而某些甲基化标记则与激活或抑制都可能相关,取决于位点和背景。同一种修饰不能脱离具体位点和细胞状态单独解释。
在发育中,组蛋白修饰常先于转录变化出现,起到“预标记”作用。也就是说,细胞先建立允许表达的染色质环境,再在合适时机启动转录。这种时序性很重要,因为发育不是随机表达,而是严格按时间和空间顺序推进。
4.2 DNA甲基化提供更稳定的沉默框架
DNA甲基化是另一类关键表观层机制。它常与基因沉默和细胞命运稳定相关。与短期可逆的染色质开放关闭相比,DNA甲基化更像“长期锁定”。在细胞分化完成后,某些不再需要的发育程序会通过甲基化等机制被持续压制。
这也是为什么发育缺陷、印记异常、肿瘤发生常常伴随甲基化异常。对于临床和科研来说,理解这类稳定性改变,有助于解释为什么同样的基因突变,在不同发育阶段或不同细胞类型中,后果可以完全不同。
5. 发育染色质结构变化,如何转化为疾病线索
5.1 结构异常会导致基因表达“错时、错位、错量”
发育相关疾病中,问题往往不是单一基因是否缺失,而是调控网络是否被打乱。若染色质结构无法正常重塑,就可能出现:
- 该打开的发育基因没有打开。
- 该关闭的谱系基因没有关闭。
- 远端增强子错误激活非靶基因。
- 同一细胞群出现异常异质性。
因此,发育异常常常是结构层、调控层和表达层共同失衡的结果。
5.2 研究策略要从“序列”走向“结构”
当前发育生物学和转化研究中,单纯看基因突变已经不够。还需要结合:
- 染色质可及性分析。
- 组蛋白修饰检测。
- DNA甲基化分析。
- 3C、Hi-C等三维基因组技术。
- 单细胞多组学整合。
这样才能回答一个更接近真实生物学的问题:这个细胞为什么在这个时间点选择了这条发育路径。
总结Conclusion
染色质结构变化不是发育的附属现象,而是发育调控的核心机制。它通过核小体重排、三维空间折叠、组蛋白修饰和DNA甲基化,控制基因在何时、何地、以何种强度表达。发育染色质结构变化本质上是在重写细胞命运。
对医学生、医生和科研人员来说,理解这一机制,有助于把发育异常、遗传病和肿瘤表观遗传改变联系起来。若你希望把这些机制进一步转化为可检索、可发表、可传播的专业内容,可以借助解螺旋 的专业支持,系统梳理染色质、发育和表观遗传相关内容,提升研究与表达效率。
- 引言Introduction
- 1. 染色质为什么是发育调控的“开关”
- 2. 发育过程中,染色质结构如何被重塑
- 3. 三维基因组结构,是发育信息整合的空间基础
- 4. 染色质修饰如何参与发育程序
- 5. 发育染色质结构变化,如何转化为疾病线索
- 总结Conclusion